Imunometabolismo e Reprogramação Celular de Macrófagos (M1 vs. M2): Glicólise Aeróbia, Efeito Warburg Imunológico e Quebras do Ciclo de Krebs
Neste artigo
- 1. O Efeito Warburg Imunológico e o Perfil Bioenergético M1 vs. M2
- 2. As Duas Quebras do Ciclo de Krebs: O Papel do Citrato e do Succinato
- 3. O Poder Pró-Resolutivo do Itaconato: O Termostato Anti-Inflamatório Celular
- 4. Implicações Clínicas: Do Tecido Adiposo Inflamado à Esteatose Hepática
- Perguntas Frequentes (FAQ)
- Referências Bibliográficas
Durante mais de um século, a imunologia e a bioquímica metabólica trilharam caminhos acadêmicos quase inteiramente paralelos. Enquanto os imunologistas dedicavam-se a catalogar marcadores de superfície, citocinas inflamatórias e diferenciação de linhagens linfocitárias, os bioquímicos concentravam-se na cinética enzimática, nas rotas energéticas mitocondriais e no transporte transmembrana de substratos carbonados.
Nas últimas duas décadas, contudo, a convergência dessas duas disciplinas forjou uma das fronteiras científicas mais férteis e revolucionárias da biologia contemporânea: o Imunometabolismo. Longe de atuar como um mero suporte passivo que fornece ATP para a sobrevivência celular, o perfil bioenergético de uma célula imune é o condutor ativo primário que determina a sua função efetora, seu tempo de vida e seu padrão de secreção de mediadores.
No epicentro desse maquinário regulatório estão os macrófagos, células da imunidade inata essenciais para a vigilância tecidual, defesa contra patógenos e cicatrização de feridas. A transição entre o fenótipo classicamente ativado pró-inflamatório (M1) e o fenótipo alternativamente ativado pró-resolutivo (M2) não decorre unicamente de estímulos exógenos de citocinas, mas de uma reconfiguração metabólica profunda e orquestrada.
Neste ensaio abrangente do MetaboLeve, desvendamos as engrenagens intracelulares da glicólise aeróbia (Efeito Warburg imunológico), as duas quebras fundamentais do Ciclo de Krebs em macrófagos M1, o papel do succinato como hormônio inflamatório, o potencial terapêutico do itaconato como regulador metabólico e as implicações práticas dessa bioquímica na resistência à insulina, na esteatose hepática e no envelhecimento inflamatório (inflammaging).
1. O Efeito Warburg Imunológico e o Perfil Bioenergético M1 vs. M2
Identificado originalmente pelo fisiologista alemão Otto Warburg na década de 1920 em células neoplásicas, o Efeito Warburg descreve a conversão acelerada de glicose em lactato mesmo na presença abundante de oxigênio molecular. Durante décadas encarado como uma exclusividade tumoral, os estudos seminais de Luke O'Neill e colaboradores demonstraram que a estimulação de macrófagos por lipopolissacarídeos bacterianos (LPS) ou interferon-gama (IFN-$γ$) induz exatamente a mesma reprogramação glicolítica maciça.
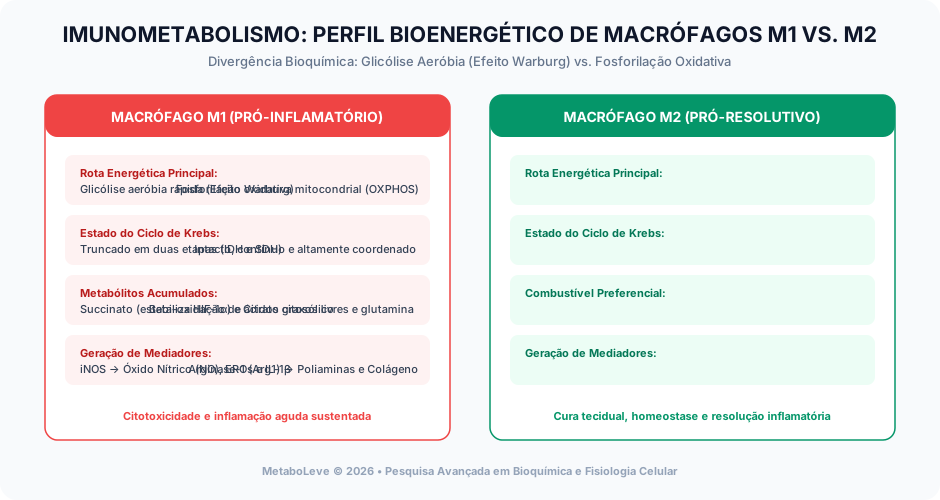
A tabela abaixo sintetiza os eixos de divergência bioenergética e funcional entre macrófagos M1 e M2:
| Parâmetro Bioquímico e Celular | Macrófago M1 (Classicamente Ativado) | Macrófago M2 (Alternativamente Ativado) |
|---|---|---|
| Via Energética Primária | Glicólise aeróbia acelerada e via das pentoses fosfato | Fosforilação oxidativa mitocondrial e beta-oxidação |
| Integridade do Ciclo de Krebs | Truncado (duas quebras enzimáticas severas) | Contínuo e funcionalmente intacto |
| Morfologia Mitocondrial | Cristas mitocondriais desorganizadas e fissão celular | Redes mitocondriais alongadas com cristas densas |
| Destino do Piruvato | Redução citoplasmática massiva a lactato via LDH-A | Descarboxilação oxidativa a acetil-CoA via PDH |
| Metabolismo da Arginina | Óxido nítrico sintase induzível (iNOS) → NO | Arginase-1 (Arg1) → Ornitina e Poliaminas |
| Produção de Espécies Reativas | Elevada geração de EROs via complexos mitocondriais | Baixa geração de EROs; perfil antioxidante alto |
| Função Fisiológica Central | Citotoxicidade, combate a infecções e inflamação aguda | Reparação tecidual, resolução e síntese de matriz |
Em macrófagos M1, a transição rápida para a glicólise aeróbia permite a produção imediata de ATP sem a dependência da taxa de difusão de oxigênio em tecidos hipóxicos infectados. Além disso, a via das pentoses fosfato gera NADPH em abundância, substrato mandatório para a enzima NADPH oxidase (NOX2) gerar a explosão oxidativa (respiratory burst) necessária para eliminar patógenos fagocitados.
Em contrapartida, os macrófagos M2 estimulados por interleucina-4 (IL-4) ou interleucina-13 (IL-13) dependem da oxidação mitocondrial sustentada de ácidos graxos livres, coordenada pela ativação do coativador transcricional PGC-1$β$ e do receptor nuclear PPAR-$γ$, garantindo a bioenergética de longo prazo exigida pela reconstrução tecidual.
2. As Duas Quebras do Ciclo de Krebs: O Papel do Citrato e do Succinato
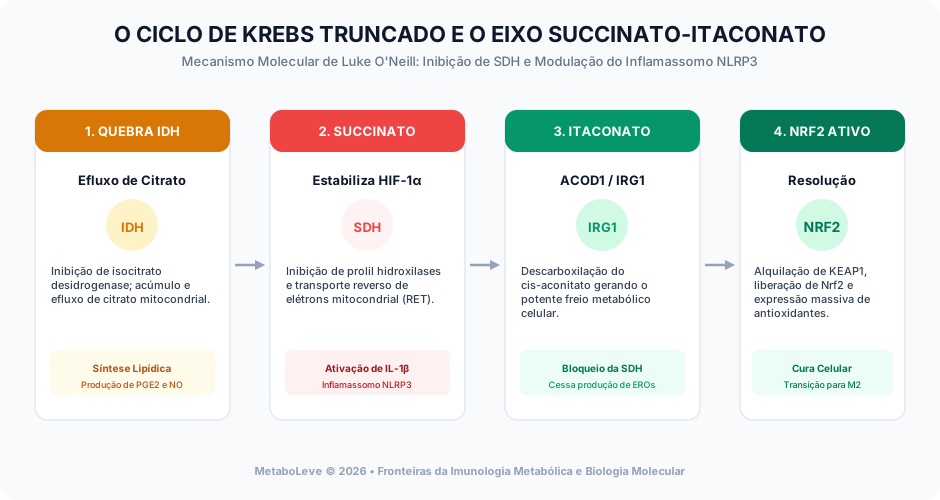
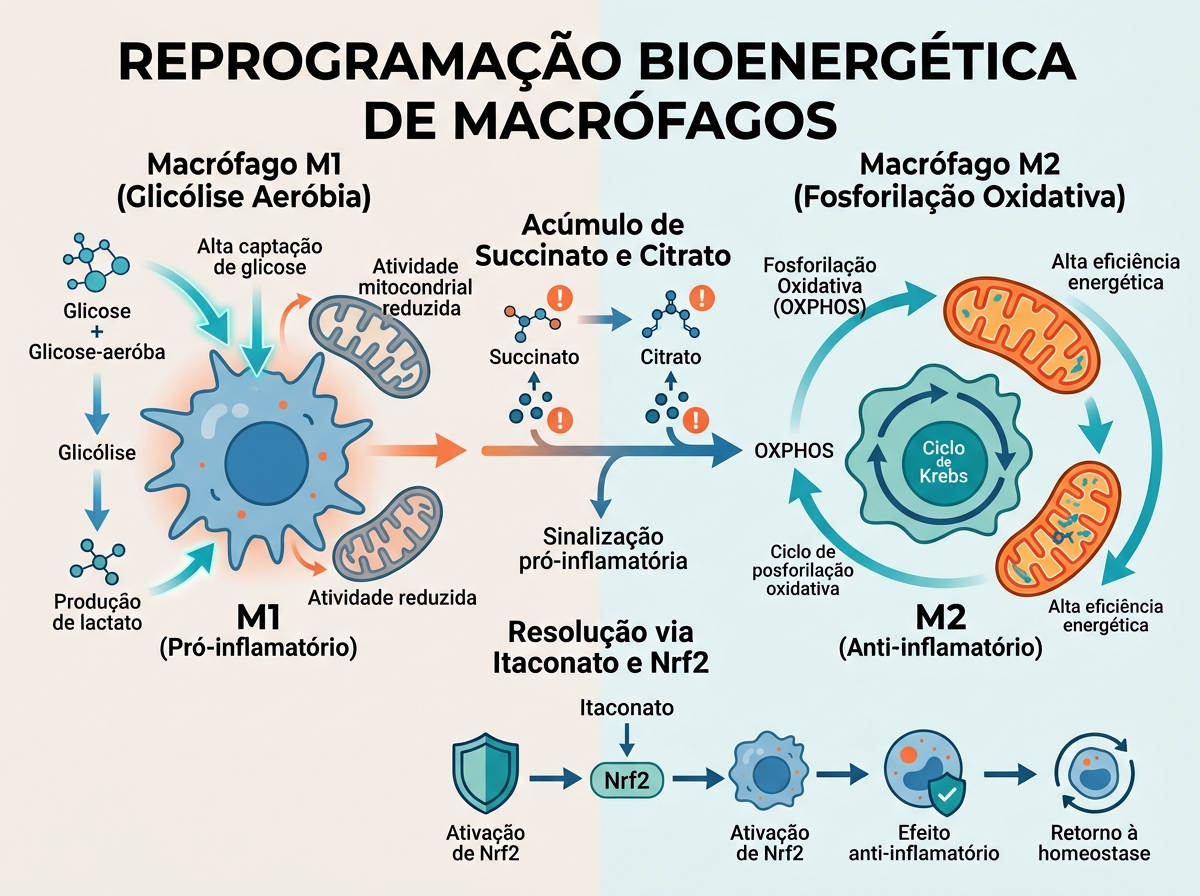
A descoberta mais contundente do imunometabolismo revelou que o Ciclo dos Ácidos Tricarboxílicos (TCA / Ciclo de Krebs) em macrófagos pró-inflamatórios M1 deixa de operar como um circuito fechado contínuo. Ele sofre duas interrupções metabólicas drásticas:
Primeira Quebra: O Bloqueio da Isocitrato Desidrogenase (IDH) e o Efluxo de Citrato
A expressão de iNOS e a consequente síntese de óxido nítrico inibem a enzima isocitrato desidrogenase mitocondrial (IDH1/IDH2). Essa supressão enzimática provoca o represamento e o acúmulo de citrato e cis-aconitato na matriz mitocondrial.
Para aliviar essa sobrecarga, o carreador mitocondrial de citrato (CIC / SLC25A1) exporta ativamente o citrato para o citoplasma celular. No citosol, a enzima ATP-citrato liase (ACLY) cliva o citrato em oxaloacetato e acetil-CoA:
- Acetil-CoA: Fornece os blocos de construção para a síntese de novos ácidos graxos de membrana e serve como doador para a acetilação de histonas epigenéticas.
- Síntese de Prostaglandinas e NO: O efluxo de citrato sustenta a biossíntese continuada de eicosanoides inflamatórios (PGE2) e a sinalização pró-inflamatória crônica.
Segunda Quebra: A Inibição da Succinato Desidrogenase (Complexo II)
A segunda quebra metabólica ocorre no nível da succinato desidrogenase (SDH). Essa alteração impede a conversão de succinato em fumarato, fazendo com que os níveis intracelulares de succinato aumentem exponencialmente.
O succinato acumulado não atua como mero resíduo inerte:
- Estabilização de HIF-1$α$ por Inibição de Prolil Hidroxilases: O succinato vaza para o citosol e inibe competitivamente as enzimas prolil hidroxilases (PHDs). Como as PHDs são responsáveis por marcar o fator induzido por hipóxia 1-alfa (HIF-1$α$) para degradação proteossômica, o acúmulo de succinato estabiliza o HIF-1$α$ mesmo sob condições normais de oxigênio (pseudohipóxia).
- Ativação Transcricional da Interleucina-1$β$ (IL-1$β$): O HIF-1$α$ estabilizado migra para o núcleo celular e acopla-se diretamente ao promotor do gene da pro-IL-1$β$, potencializando a montagem do inflamassomo NLRP3 e desencadeando a secreção de IL-1$β$ ativa na circulação.
- Produção Reversa de Elétrons (RET): Quando os macrófagos oxidam o excesso de succinato residual via SDH, o alto gradiente eletroquímico força elétrons a retrocederem para o Complexo I da cadeia respiratória (Reverse Electron Transport), gerando quantidades colossais de radicais livres de oxigênio que amplificam a toxicidade celular.
3. O Poder Pró-Resolutivo do Itaconato: O Termostato Anti-Inflamatório Celular
Para evitar que a tempestade inflamatória destrua o tecido sadio do hospedeiro, os macrófagos desenvolveram um mecanismo celular de freio metabólico: a síntese de itaconato.
A enzima aconitato descarboxilase 1 (ACOD1, historicamente codificada pelo gene IRG1) localiza-se na matriz mitocondrial. Durante a ativação de macrófagos M1, a expressão de ACOD1 é induzida em ordens de magnitude. A enzima capta o cis-aconitato acumulado pela primeira quebra do ciclo e descarboxila-o, gerando itaconato.
O itaconato exerce propriedades anti-inflamatórias multifacetadas:
- Inibição Competitiva da Succinato Desidrogenase: O itaconato compete diretamente com o succinato pelo sítio ativo da SDH, bloqueando o transporte reverso de elétrons e cessando a produção descontrolada de EROs mitocondriais.
- Alquilação de Cisteínas da Proteína KEAP1 e Ativação de Nrf2: O itaconato liga-se covalentemente aos resíduos de cisteína da proteína adaptadora KEAP1 por reação de Michael. Isso liberta o fator de transcrição Nrf2 (Nuclear Factor Erythroid 2-Related Factor 2), que migra para o núcleo e ativa uma robusta rede de genes antioxidantes e citoprotetores (como heme oxigenase-1, HO-1, e glutationa sintase).
- Inibição Direta do Inflamassomo NLRP3: Ao modificar pós-traducionalmente resíduos de cisteína específicos na proteína NLRP3, o itaconato impede o oligômero do inflamassomo e a subsequente clivagem de caspases pró-inflamatórias.
4. Implicações Clínicas: Do Tecido Adiposo Inflamado à Esteatose Hepática
A compreensão do imunometabolismo lança luz sobre a fisiopatologia de diversas enfermidades metabólicas modernas:
A Polarização de Macrófagos no Tecido Adiposo Visceral
No indivíduo metabolicamente saudável, o tecido adiposo subcutâneo é habitado predominantemente por macrófagos residentes do tipo M2, que secretam interleucina-10 (IL-10) e asseguram a homeostase vascular e a sensibilidade à insulina dos adipócitos.
Com o consumo crônico de dietas hipercalóricas e o transbordamento lipídico, os adipócitos hipertrofiados entram em hipóxia e morrem, recrutando monócitos circulantes que se diferenciam em macrófagos M1 pró-inflamatórios. Esses macrófagos cercam os adipócitos necróticos formando as chamadas estruturas em coroa (crown-like structures), ativando glicólise aeróbia, liberando succinato e TNF-$α$, e bloqueando permanentemente a fosforilação do receptor de insulina em tecidos periféricos.
Células de Kupffer e a Progressão de MASLD para MASH
No parênquima hepático, os macrófagos residentes (células de Kupffer) expostos a níveis crônicos elevados de frutose e lipopolissacarídeos bacterianos (LPS) sofrem reprogramação imunoenergética para o fenótipo M1. A perda de integridade mitocondrial e o acúmulo de citrato citosólico alimentam a lipogênese de novo hepática, enquanto a secreção continuada de IL-1$β$ ativa as células estreladas hepáticas, transformando a esteatose simples em esteato-hepatite fibrosante grave (MASH).
Perguntas Frequentes (FAQ)
O que diferencia a glicólise aeróbia de macrófagos da respiração celular comum?
Na respiração celular fisiológica, o piruvato gerado pela glicólise entra na mitocôndria para ser convertido em acetil-CoA e oxidado no Ciclo de Krebs e na cadeia transportadora de elétrons. Na glicólise aeróbia (Efeito Warburg imunológico), o piruvato é preferencialmente reduzido a lactato no citosol pela enzima lactato desidrogenase (LDH-A), mesmo com oxigênio disponível, permitindo a produção rápida de energia e intermediários biossintéticos necessários para a resposta imune imediata.
O acúmulo de succinato é sempre prejudicial ao organismo?
Não. Em condições fisiológicas e no exercício físico agudo, o succinato atua como um metabólito intermediário saudável do Ciclo de Krebs. O seu potencial inflamatório emerge quando ele se acumula cronicamente em concentrações não fisiológicas no citoplasma de células imunes, inibindo as enzimas prolil hidroxilases e estabilizando patologicamente o fator transcricional HIF-1$α$.
Como intervenções nutricionais podem modular a polarização M1/M2?
A restrição de carboidratos refinados, o jejum intermitente e o aporte adequado de ácidos graxos poli-insaturados ômega-3 promovem a ativação da proteína quinase AMPK e dos receptores nucleares PPAR-$γ$. Essa sinalização estimula a biogênese mitocondrial e a beta-oxidação, induzindo a reprogramação de macrófagos M1 para o fenótipo resolutivo M2.
O itaconato pode ser utilizado como suplemento nutricional?
Atualmente, o itaconato e seus derivados sintéticos mais permeáveis (como o 4-octil itaconato e o dimetil itaconato) são ferramentas de investigação laboratorial e alvos para o desenvolvimento de novos fármacos biotecnológicos. Eles não estão disponíveis para consumo alimentar direto em razão de desafios farmacocinéticos de estabilidade e biodisponibilidade tecidual.
Referências Bibliográficas
- O'NEILL, Luke A. J.; KISHTON, Rigel J.; RATHMELL, Jeff. A guide to immunometabolism for immunologists. Nature Reviews Immunology, v. 16, n. 9, p. 553-565, 2016.
- MILLS, Evanna L.; KELLY, Brenda; O'NEILL, Luke A. J. Mitochondria are the powerhouses of immunity. Nature Immunology, v. 18, n. 5, p. 488-498, 2017.
- TANNAHILL, Gillian M.; CURTIS, Aedín M.; ADAMCZYK, Marcin; et al. Succinate is an inflammatory signal that induces IL-1β through HIF-1α. Nature, v. 496, n. 7444, p. 238-242, 2013.
- BAMPOKIDOU, Maria; O'NEILL, Luke A. J. Itaconate: a metabolic regulator of inflammation and beyond. Trends in Biochemical Sciences, v. 48, n. 1, p. 82-94, 2023.
- PEARCE, Edward L.; PEARCE, Erika J. Metabolic pathways in immune cell activation and quiescence. Immunity, v. 38, n. 4, p. 633-643, 2013.
Carregando comentários…