Cronobiologia Metabólica em 2026: Genes Clock, Receptores de Melatonina MT1/MT2 e Early-TRE contra a Resistência à Insulina
Neste artigo
- 1. A Arquitetura Molecular dos Relógios Circadianos: NSQ Central vs. Relógios Periféricos
- 2. A Cascata de Inibição Noturna da Insulina: Receptores MT1, MT2 e Proteínas Gi
- 3. O Confronto Clínico: Early-TRE vs. Late-TRE
- 4. Cinética Circadiana: Termogênese Alimentar e Captação Muscular de Glicose
- 5. Diretrizes Práticas de Crononutrição Clínica em 2026
- Perguntas Frequentes (FAQ)
- Referências e Fontes Oficiais
Durante décadas, as diretrizes nutricionais e os modelos clássicos de balanço energético basearam-se no paradigma termodinâmico simplista de que "uma caloria é sempre uma caloria", independentemente do momento biológico em que é consumida. No entanto, a consolidação da cronobiologia metabólica em 2026 revolucionou a endocrinologia clínica ao demonstrar que a tolerância à glicose, a sensibilidade periférica à insulina e a oxidação de substratos energéticos oscilam de forma dramática ao longo das 24 horas do dia, sob o comando estrito de uma intrincada rede de relógios moleculares celulares.
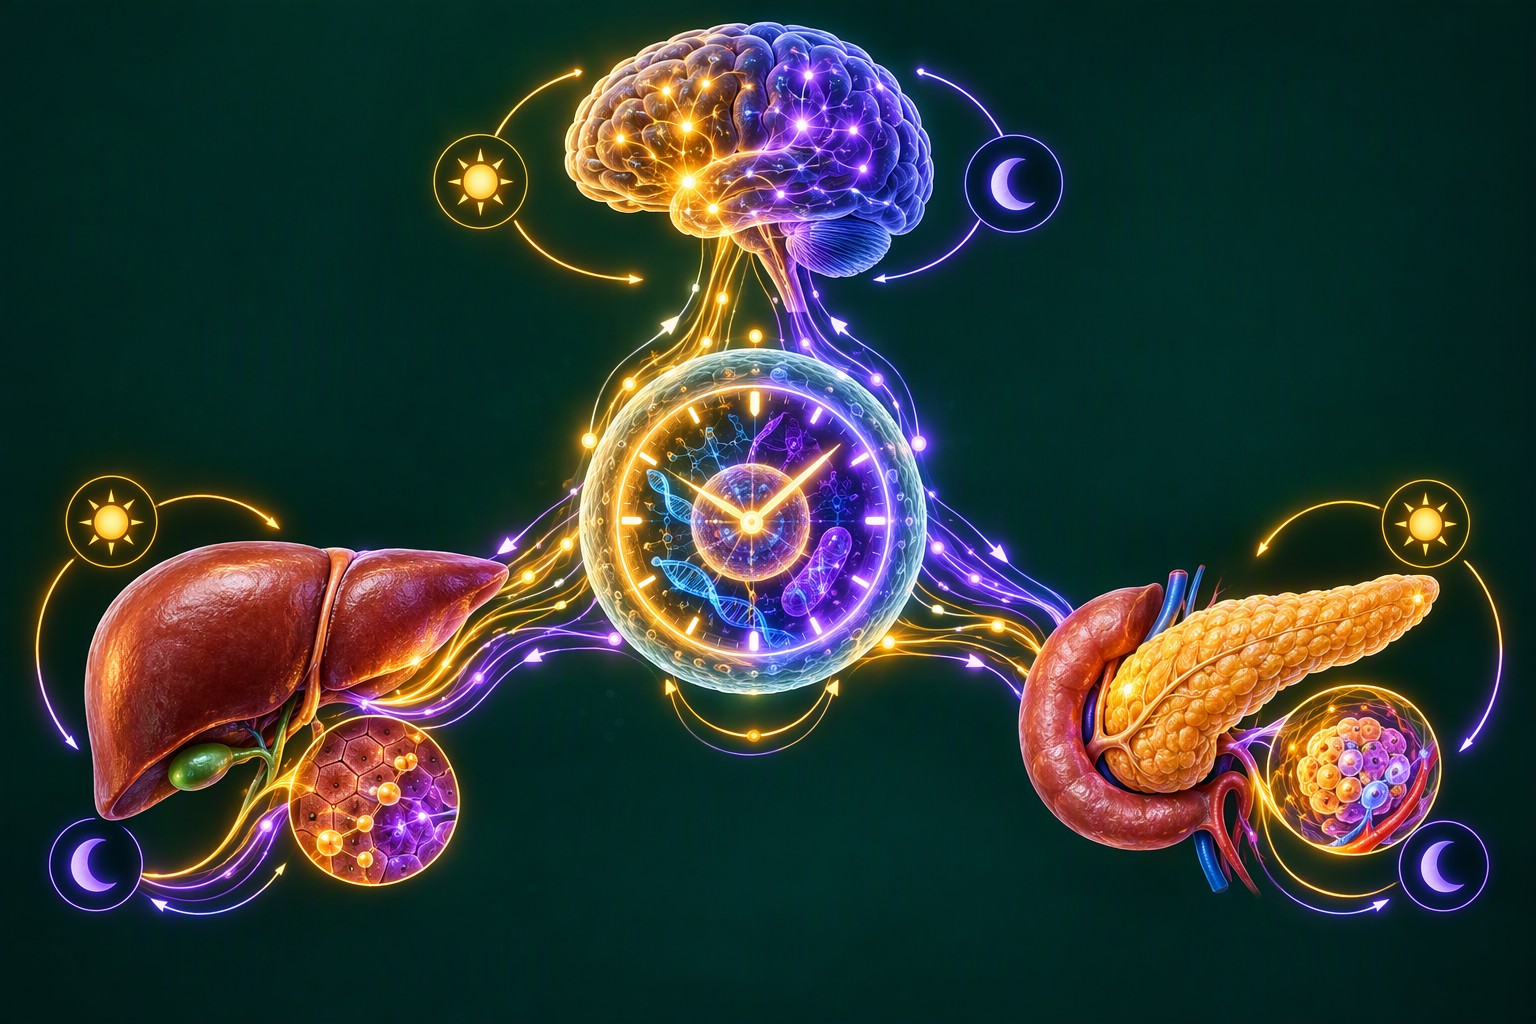
Compreender o papel dos genes de relógio central e periférico (como BMAL1, CLOCK, PER e CRY) e a interação neuroendócrina entre o pico noturno de melatonina e os receptores MT1 e MT2 das células beta pancreáticas tornou-se indispensável para decifrar a patogênese do diabetes tipo 2, da obesidade visceral e da síndrome metabólica. Ensaios clínicos demonstraram que o desalinhamento circadiano crônico — caracterizado pelo hábito de postergar refeições para o período noturno — induz um estado agudo de intolerância glicêmica comparável ao de indivíduos pré-diabéticos. Paralelamente, protocolos terapêuticos de Alimentação com Restrição de Tempo Precoce (Early Time-Restricted Eating - Early-TRE) emergem como intervenções não farmacológicas de alta precisão biológica, capazes de restaurar a sensibilidade insulínica e a função cardiovascular.
1. A Arquitetura Molecular dos Relógios Circadianos: NSQ Central vs. Relógios Periféricos
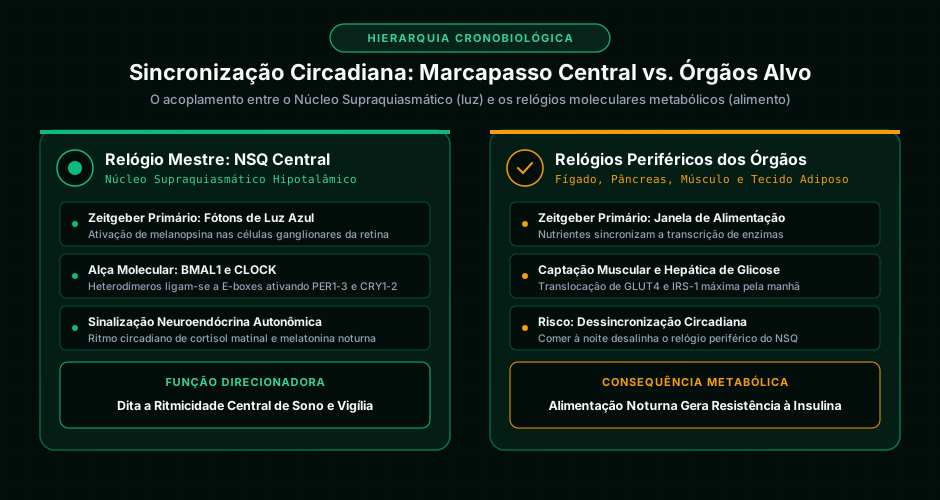
O organismo dos mamíferos possui uma hierarquia temporal altamente orquestrada. No topo dessa cadeia está o marcapasso central, localizado no Núcleo Supraquiasmático (NSQ) do hipotálamo anterior, composto por aproximadamente 20.000 neurônios que geram ritmos autônomos próximos a 24 horas. Contudo, praticamente todas as células dos tecidos metabolicamente ativos — incluindo hepatócitos, miócitos esqueléticos, adipócitos e ilhotas pancreáticas — possuem sua própria maquinaria intrínseca de relógio molecular.
1.1 A Alça de Feedback Transcricional-Translacional (TTFL)
No nível intracelular, o relógio é mantido por uma alça primária de transcrição e tradução com oscilação periódica:
- Braço Positivo (BMAL1 / CLOCK): Os fatores de transcrição com domínio bHLH-PAS, denominados BMAL1 (codificado pelo gene ARNTL) e CLOCK (ou seu parálogo NPAS2), heterodimerizam no citoplasma e translocam para o núcleo. Eles se ligam a sequências específicas de DNA chamadas E-boxes (elementos 5'-CACGTG-3') presentes nos promotores de centenas de genes controlados pelo relógio (Clock-Controlled Genes - CCGs), ativando sua transcrição durante o início da fase de atividade (período diurno em humanos).
- Braço Negativo (PER / CRY): Entre os genes ativados por BMAL1/CLOCK estão as famílias Period (PER1, PER2, PER3) e Cryptochrome (CRY1, CRY2). As proteínas PER e CRY acumulam-se gradativamente no citosol, onde são fosforiladas por quinases como a caseína quinase 1 (CK1ε/δ). Ao atingirem um limiar crítico no final da tarde e início da noite, formam complexos macromoleculares que entram no núcleo e inibem diretamente o complexo BMAL1/CLOCK, desligando a sua própria transcrição.
- Alça Acessória de Refinamento (REV-ERB / ROR): Para garantir robustez e precisão ao ciclo de 24 horas, BMAL1/CLOCK também induz a transcrição dos receptores nucleares órfãos REV-ERBα/β e RORα/γ. Enquanto as proteínas REV-ERB reprimem a transcrição de BMAL1 ao se ligarem a elementos RORE no seu promotor, as proteínas ROR competem pelos mesmos sítios e ativam sua expressão, criando uma oscilação antifásica rigorosa.
Conforme evidenciado em pesquisas fundamentais indexadas pelo PubMed sobre a regulação hepática de insulina por CLOCK/BMAL1, a expressão de SIRT1 (sirtuína 1) é diretamente modulada pelo complexo BMAL1/CLOCK, sendo determinante para coordenar o ciclo diário de sensibilidade à insulina no parênquima hepático.
1.2 Dessincronização entre Zeitgebers Centrais e Periféricos
O termo alemão Zeitgeber ("doador de tempo") define os estímulos ambientais externos que ajustam a fase dos relógios biológicos:
- O NSQ responde à Luz: O marcapasso central é sincronizado quase exclusivamente pelo ciclo de claro/escuro. A luz solar (em especial os comprimentos de onda de luz azul entre 460 e 480 nm) estimula células ganglionares intrinsecamente fotossensíveis da retina (ipRGCs) que expressam melanopsina, enviando sinais monossinápticos via trato retinohipotalâmico para reiniciar diariamente o NSQ.
- Os Relógios Periféricos respondem ao Alimento: Por outro lado, os relógios moleculares do fígado, do trato gastrointestinal e do pâncreas são fortemente dominados pelos horários de ingestão calórica. A entrada periódica de glicose, aminoácidos e ácidos graxos induz ativação de vias intracelulares como mTORC1, AMPK e FoxO1, que reajustam a fase dos genes de relógio nesses tecidos.
Quando um indivíduo consome grandes volumes de carboidratos e gorduras tarde da noite, sob escuridão ambiental ou sob luz artificial fraca, ocorre uma colisão temporal catastrófica: enquanto o cérebro (NSQ) sinaliza estado biológico de repouso noturno, os órgãos periféricos são forçados a operar em modo de processamento pós-prandial intenso. Essa dissociação de fase entre o relógio mestre e os órgãos metabólicos é o principal gatilho celular para esteatose hepática, dislipidemia aterogênica e falência de células beta.
2. A Cascata de Inibição Noturna da Insulina: Receptores MT1, MT2 e Proteínas Gi
Um dos elos bioquímicos mais elegantes e clinicamente relevantes entre o sistema circadiano e a homeostase glicêmica reside no papel da melatonina (N-acetil-5-metoxitriptamina), secretada pela glândula pineal sob comando neural do NSQ durante a escuridão.
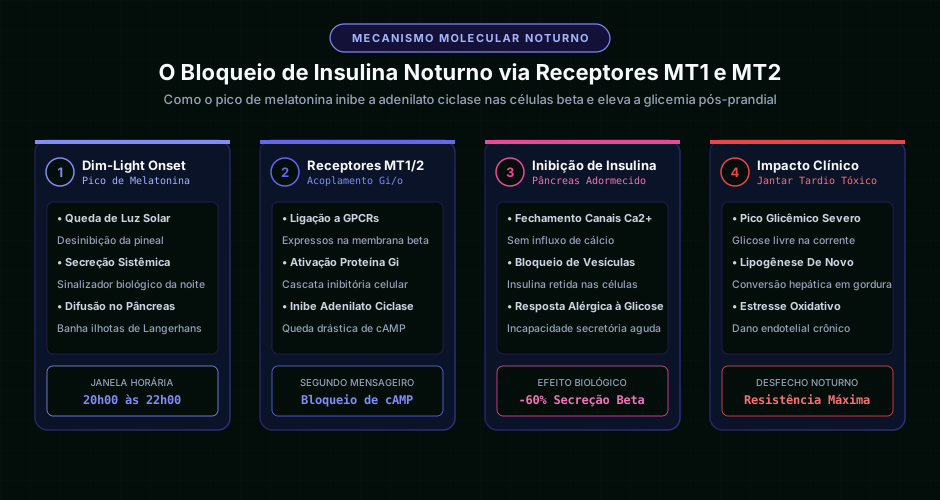
2.1 A Expressão de Receptores MT1 e MT2 nas Ilhotas Pancreáticas
Diferente da crença popular de que a melatonina atua meramente como indutor passivo do sono, estudos farmacológicos confirmaram que as células beta pancreáticas expressam densamente dois subtipos de receptores de membrana acoplados à proteína G (GPCRs): o receptor de melatonina 1 (MT1, codificado por MTNR1A) e o receptor de melatonina 2 (MT2, codificado por MTNR1B). Conforme documentado no PubMed sobre a expressão e função de receptores de melatonina em ilhotas humanas, a ativação desses sítios exerce um papel fisiológico central na contenção da hipoglicemia de jejum durante o sono prolongado.
2.2 O Mecanismo Inibitório Intracelular via AMP Cíclico
Durante o dia, quando a luz solar suprime a secreção pineal de melatonina, as células beta respondem com máxima potência à elevação da glicemia: a glicose entra via transportadores GLUT, é fosforilada pela glicoquinase e gera ATP mitocondrial, fechando canais de K+ sensíveis ao ATP, despolarizando a membrana e abrindo canais de cálcio dependentes de voltagem (VDCC), o que culmina na exocitose imediata de grânulos de insulina.
Contudo, durante o início da noite (janela biológica conhecida como Dim-Light Melatonin Onset - DLMO, tipicamente entre 20h00 e 22h00 em cronotipos intermediários):
- Acoplamento à Proteína Gi/o: A melatonina circulante liga-se com alta afinidade aos receptores MT1 e MT2 na membrana das células beta.
- Inibição da Adenilato Ciclase: Os receptores ativados interagem com subunidades alfa de proteínas G inibitórias (Gαi), bloqueando a enzima adenilato ciclase e provocando uma queda vertiginosa nos níveis intracelulares de monofosfato cíclico de adenosina (cAMP).
- Bloqueio da Proteína Quinase A (PKA) e Epac2: Sem cAMP suficiente, as vias mediadas por PKA e Epac2 (essenciais para sensibilizar a maquinaria exocítica de SNARE e amplificar a liberação de insulina) tornam-se inoperantes.
- Fechamento de Canais de Cálcio: Ocorre redução do influxo de cálcio intracelular e hiperpolarização transitória, bloqueando em até 60% a secreção de insulina induzida por glicose (Glucose-Stimulated Insulin Secretion - GSIS).
Esse mecanismo tem valor adaptativo evolutivo: impedir que o cérebro fique sem glicose durante o jejum noturno de 8 a 10 horas de sono. No entanto, se o ser humano contemporâneo decide jantar às 21h30 ou 22h00, ingerindo 80 gramas de carboidratos refinados em pleno pico de melatonina, a glicose é absorvida pelo intestino, mas o pâncreas encontra-se farmacologicamente "adormecido" pela melatonina. O resultado clínico é uma excursão hiperglicêmica pronunciada, que permanece descontrolada por horas na circulação, lesionando o endotélio vascular e induzindo lipogênese hepática acelerada. Estudos publicados sobre as inter-relações entre melatonina, insulina e glucagon indexados no PubMed reforçam que polimorfismos de risco no gene MTNR1B (como o alelo rs10830963) aumentam a densidade de receptores MT2, elevando exponencialmente o risco de diabetes em indivíduos com hábitos alimentares noturnos.
3. O Confronto Clínico: Early-TRE vs. Late-TRE
Diante da evidência de que a biologia humana não é equipada para processar macronutrientes na escuridão, a crononutrição desenvolveu o protocolo de Alimentação com Restrição de Tempo (Time-Restricted Eating - TRE). A modalidade divide-se em duas abordagens cronobiológicas distintas: o Early-TRE (janela alimentar no início do dia) e o Late-TRE (janela tardia, empurrada para a tarde e noite).
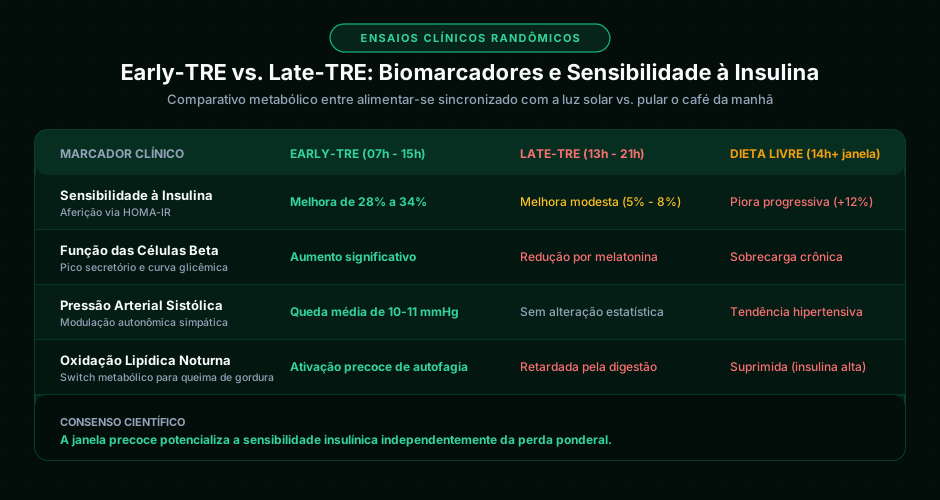
3.1 A Evidência Seminal de Sutton et al. (Cell Metabolism)
O divisor de águas na validação científica do Early-TRE ocorreu com o primeiro ensaio clínico randomizado e controlado em humanos publicado por Sutton e colaboradores, amplamente revisado no PubMed / Cell Metabolism sobre os benefícios metabólicos do Early-TRE independente de perda de peso.
No estudo, homens pré-diabéticos foram submetidos a uma janela alimentar precoce de 6 horas (refeições realizadas rigorosamente entre 07h00 e 15h00) em regime isocalórico e isonutricional — isto é, os participantes consumiram exatamente as mesmas calorias e proporções de carboidratos, proteínas e gorduras do grupo controle com janela de 12 horas, garantindo que o peso corporal não sofresse oscilações.
Os resultados foram expressivos:
- Redução Dramática do HOMA-IR: A sensibilidade periférica à insulina aumentou consideravelmente, com redução acentuada da insulinemia de jejum e pós-prandial.
- Melhora da Capacidade das Células Beta: A capacidade secretória do pâncreas em resposta à sobrecarga glicêmica matinal aumentou de forma substancial.
- Queda da Pressão Arterial Sistólica: Redução clinicamente relevante de 10 a 11 mmHg na pressão sistólica, efeito comparável ou superior ao de monoterapia anti-hipertensiva padrão.
- Queda dos Marcadores de Estresse Oxidativo: Diminuição dos níveis de 8-isoprostano e marcadores de peroxidação lipídica.
3.2 O Fracasso Metabólico do Late-TRE (Pular o Café da Manhã)
Em contraste, a prática comum de praticantes desavisados de jejum intermitente — que pulam o café da manhã e concentram sua janela alimentar entre 13h00 e 21h00 (Late-TRE) — produz benefícios metabólicos marcadamente inferiores, e em muitos casos desfavoráveis.
Conforme demonstrado em meta-análises e estudos de coorte sobre o alinhamento circadiano da ingestão alimentar no PubMed Central:
- Sensibilidade à Insulina Matinal Desperdiçada: Pular o café da manhã ignora o momento biológico de maior expressão de transportadores GLUT4 no músculo esquelético e de maior termogênese alimentar.
- Glicemia Noturna Agravada: Ao encerrar a última refeição às 21h00 ou 22h00, o indivíduo sobrepõe a digestão ao início da produção de melatonina, perpetuando níveis séricos elevados de glicose durante a noite.
- Interrupção da Autofagia Noturna: A presença de nutrientes circulantes na madrugada mantém a via mTOR ativada, bloqueando a transcrição de fatores como TFEB e impedindo a autofagia celular, a mitofagia e a biogênese mitocondrial reparadora que deveriam ocorrer durante o descanso.
4. Cinética Circadiana: Termogênese Alimentar e Captação Muscular de Glicose
A variação circadiana da tolerância aos nutrientes não se restringe à secreção de insulina: ela envolve o gasto energético total e a mecânica transcricional do músculo esquelético.
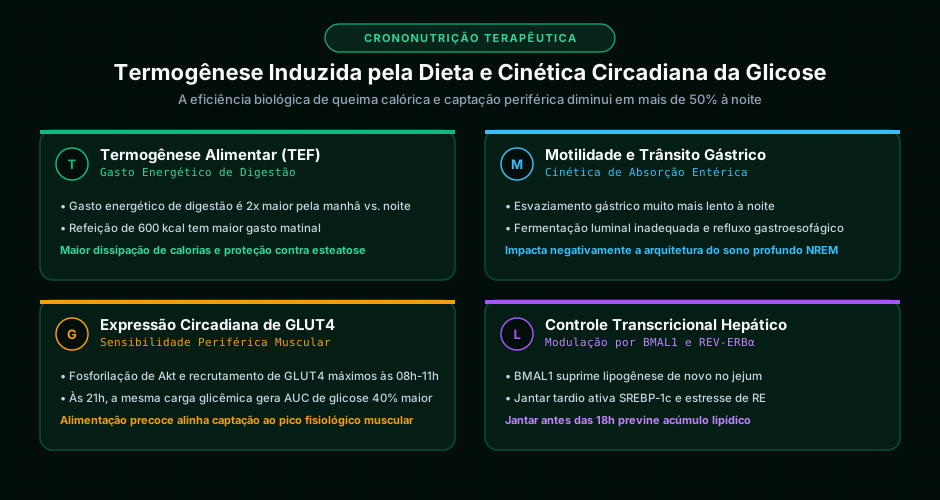
4.1 Termogênese Induzida pela Dieta (TEF - Thermic Effect of Food)
A termogênese induzida pela dieta representa a energia despendida pelo organismo para mastigar, digerir, absorver, transportar e metabolizar os nutrientes ingeridos. Ensaios de calorimetria indireta comprovaram que a termogênese alimentar exibe um ritmo circadiano acentuado:
- A mesma refeição idêntica de 600 kcal consumida às 08h00 da manhã induz um aumento no gasto calórico pós-prandial que é mais de duas vezes superior ao gasto gerado pela mesmíssima refeição consumida às 20h00.
- Esse fenômeno ocorre porque as bombas iônicas entéricas, os transportadores de membrana e as vias de glicogenogênese hepática possuem expressão dependente dos genes BMAL1 e CLOCK, estando otimizados para operar em alta velocidade metabólica durante as primeiras horas da fase de vigília.
- Consequentemente, calorias consumidas no final da noite apresentam maior probabilidade estequiométrica de serem canalizadas para armazenamento em forma de triacilglicerol no tecido adiposo branco e no fígado.
4.2 GLUT4 e Sinalização Muscular via SIRT1
O músculo esquelético é responsável por cerca de 70% a 80% de toda a captação de glicose mediada por insulina após uma refeição. Conforme demonstrado por pesquisas detalhadas no PubMed sobre a regulação da sensibilidade muscular por CLOCK e BMAL1 via SIRT1:
- Ativação Transcricional via E-Boxes: O promotor do gene Sirt1 em miócitos esqueléticos possui dois elementos E-box funcionais regulados diretamente pelos fatores BMAL1 e CLOCK.
- Desacetilação de IRS-1 e Akt: A SIRT1 desacetila e potencializa os substratos do receptor de insulina (IRS-1), promovendo a fosforilação robusta da proteína quinase Akt (Ser473 e Thr308).
- Translocação de GLUT4: Essa cascata culmina no recrutamento das vesículas intracelulares contendo o transportador GLUT4 para a membrana plasmática das fibras musculares tipo I e IIa.
- Cinética do Eixo: Devido a essa regulação circadiana intrínseca, a eficiência de translocação do GLUT4 atinge o seu ápice biológico entre 08h00 e 11h00 da manhã, entrando em declínio progressivo a partir do meio da tarde. Uma carga de carboidratos consumida à noite depara-se com um músculo relativamente refratário à captação, desviando o excesso calórico para a lipogênese de novo hepática mediada por SREBP-1c.
5. Diretrizes Práticas de Crononutrição Clínica em 2026
Para traduzir a ciência da cronobiologia metabólica em estratégias terapêuticas factíveis para o tratamento do sobrepeso, esteatose hepática e resistência à insulina, endocrinologistas e nutricionistas utilizam protocolos baseados em três parâmetros centrais:
5.1 Otimização da Janela Alimentar (A Regra 10:14 ou 8:16 Precoce)
- Horário de Abertura: A primeira refeição do dia deve ocorrer entre 30 e 90 minutos após o despertar e a exposição à luz solar matinal, idealmente entre 07h00 e 08h30. Esse desjejum sinaliza aos relógios periféricos que o período de atividade iniciou-se em harmonia com o marcapasso central.
- Horário de Encerramento (Toque de Recolher Metabólico): A última refeição calórica do dia deve ser finalizada, no máximo, entre 16h00 e 18h00 (para janelas de 8 a 10 horas). Em nenhuma hipótese a ingestão de calorias deve ultrapassar as 19h00, garantindo um intervalo de segurança de pelo menos 3 horas antes da elevação sérica fisiológica da melatonina.
5.2 Distribuição de Macronutrientes ("Pirâmide Invertida de Carboidratos")
- Desjejum e Almoço Hiperenergéticos: Cerca de 70% a 80% do total calórico diário e a quase totalidade dos carboidratos complexos de carga glicêmica moderada a alta devem ser alocados nas duas primeiras refeições do dia, aproveitando a máxima sensibilidade de GLUT4 e a alta termogênese alimentar.
- Refeição Final Leve e Predominantemente Proteica/Lipídica Fibrosa: A última refeição do final de tarde deve ser moderada em calorias e composta prioritariamente por proteínas de alto valor biológico e vegetais folhosos ricos em fibras prebióticas, minimizando estímulos glicêmicos acentuados no momento em que a sensibilidade periférica à insulina começa a atenuar.
5.3 Higiene da Luz e Sincronização Circadiana Integrada
A crononutrição só atinge seu potencial metabólico pleno se acompanhada da gestão dos estímulos luminosos:
- Exposição Solar ao Despertar: Tomar de 10 a 20 minutos de luz natural logo após acordar fixa a fase do NSQ e inibe imediatamente a melatonina residual da noite anterior.
- Bloqueio de Luz Azul Noturna: Após as 19h30, reduzir drasticamente a iluminação de teto branca e o uso de telas sem filtros, prevenindo a supressão artificial de melatonina que desregularia a arquitetura do sono profundo e a regulação autonômica do metabolismo da glicose.
Perguntas Frequentes (FAQ)
1. Se eu não sinto fome ao acordar, sou obrigado a tomar café da manhã para fazer Early-TRE?
A falta de apetite matinal crônica é frequentemente um sintoma do próprio desalinhamento circadiano provocado por jantares tardios volumosos e ricos em gordura, que retardam o esvaziamento gástrico e mantêm a grelina suprimida pela manhã. A transição não precisa ser abrupta: recomenda-se antecipar o jantar gradativamente (em 30 minutos a cada dois dias) e encerrá-lo antes das 18h30. Em poucos dias, os circuitos orexígenos hipotalâmicos e a motilidade gastrointestinal realinham-se ao ritmo natural de vigília, restabelecendo o apetite biológico matinal.
2. O Early-TRE é superior ao jejum intermitente tradicional de pular o café da manhã mesmo com calorias iguais?
Sim. Ensaios clínicos randomizados em condições isocalóricas (como o estudo de Sutton et al.) demonstraram de forma categórica que, mesmo sem nenhuma alteração no peso na balança e comendo exatamente o mesmo número de calorias diárias, o grupo submetido ao Early-TRE apresentou redução de cerca de 30% nos níveis de insulina pós-prandial, aumento expressivo da sensibilidade insulínica e queda de mais de 10 mmHg na pressão arterial sistólica. Esses benefícios metabólicos e vasculares superiores não são observados no Late-TRE.
3. Como os suplementos de melatonina afetam a glicose se tomados antes do jantar?
A administração exógena de melatonina imediatamente antes ou durante uma refeição rica em carboidratos agrava severamente a resposta glicêmica. Ao ligar-se aos receptores MT1 e MT2 das células beta pancreáticas, a melatonina suprime a secreção de insulina exatamente no instante em que a glicose atinge a corrente sanguínea, elevando os picos glicêmicos em mais de 50%. Caso a suplementação de melatonina seja prescrita por razões de distúrbios do sono, ela deve ser ingerida de 30 a 60 minutos antes de deitar e estritamente com o indivíduo em estado de jejum completo há pelo menos 2 a 3 horas.
4. O exercício físico pode compensar o efeito prejudicial de comer tarde da noite?
Embora o exercício físico contrátil aumente a captação muscular de glicose por via independente de insulina (via ativação de AMPK e translocação mecânica de GLUT4), ele não consegue anular a dissociação de fase nos relógios moleculares dos órgãos internos. Ingerir refeições calóricas pesadas após as 21h00 continua gerando conflito de sincronização entre o NSQ hipotalâmico e os relógios hepático e pancreático, perpetuando o estresse celular e a lipogênese noturna. O exercício deve ser utilizado como potencializador do alinhamento circadiano, idealmente realizado na primeira metade do dia ou final de tarde.
Referências e Fontes Oficiais
- ZHOU, B. et al. CLOCK/BMAL1 regulates circadian change of mouse hepatic insulin sensitivity via CLOCK/BMAL1-dependent SIRT1 expression. Hepatology, v. 59, n. 6, p. 2196-2206, 2014.
- ZHANG, Y. et al. CLOCK and BMAL1 Regulate Muscle Insulin Sensitivity via SIRT1 in C2C12 Myotubes and Mouse Skeletal Muscle. Cellular Physiology and Biochemistry, v. 38, n. 4, p. 1533-1544, 2016.
- RAMRATHEN, P. et al. Function and expression of melatonin receptors on human pancreatic islets. Journal of Pineal Research, v. 44, n. 3, p. 273-281, 2008.
- POUCHEUX, C. et al. Interrelationships between melatonin, insulin and glucagon: diurnal impact on the islet of Langerhans. International Journal of Molecular Sciences, v. 14, n. 4, p. 6981-7004, 2013.
- SUTTON, E. F. et al. Early Time-Restricted Feeding Improves Insulin Sensitivity, Blood Pressure, and Oxidative Stress Even without Weight Loss in Men with Prediabetes. Cell Metabolism, v. 27, n. 6, p. 1212-1221, 2018.
- MANOOGIAN, E. N. C. et al. Circadian alignment of food intake and glycaemic control by time-restricted eating. Nature Reviews Endocrinology, v. 18, n. 8, p. 493-506, 2023.
Carregando comentários…