Butirato (AGCC) e Zonulina: como a Barreira Intestinal se Rompe
Neste artigo
- 1. A Anatomia da Barreira Epitelial: Como o Intestino Separa o Mundo Externo do Sangue
- 2. A Fisiopatologia da Endotoxemia Metabólica e o Receptor TLR4
- 3. Os Protetores Metabólicos: Ácidos Graxos de Cadeia Curta (AGCC)
- 4. O Exército Especializado: O Papel de Akkermansia muciniphila e Faecalibacterium prausnitzii
- 5. Protocolo Clínico de Restauração da Barreira e Supressão da Endotoxemia
- Perguntas Frequentes (FAQ Clínico)
- Referências Bibliográficas e Clínicas Oficiais
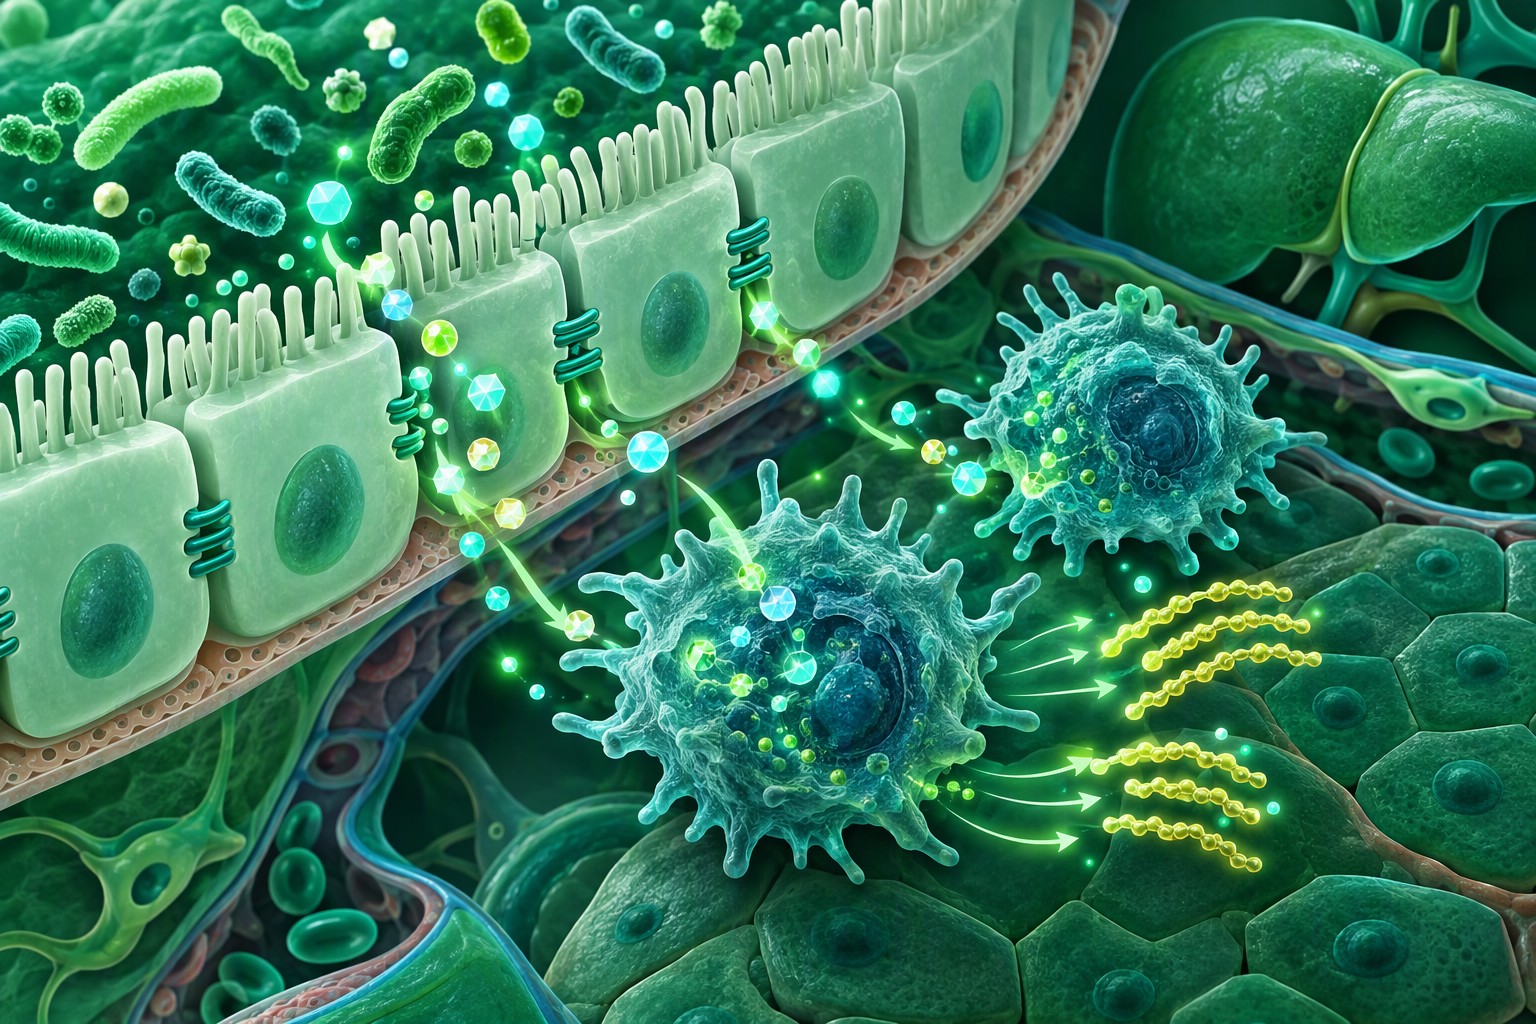
Durante décadas, o dogma dominante na endocrinologia e na nutrologia tratou a obesidade, o diabetes mellitus tipo 2 e a esteatose hepática como consequências matemáticas lineares de um desequilíbrio termodinâmico simples: excesso de calorias ingeridas contra escassez de calorias gastas. Contudo, a medicina molecular contemporânea demonstrou que essa visão é grosseiramente reducionista. Por trás da incapacidade celular de responder à insulina e da inflamação crônica silenciosa que corrói o metabolismo moderno, opera um gatilho biológico oculto: a quebra da barreira epitelial intestinal (hiperpermeabilidade intestinal ou leaky gut) e a consequente Endotoxemia Metabólica.
O trato gastrointestinal humano abriga mais de 100 trilhões de microrganismos que coevoluíram com o hospedeiro para desempenhar funções digestivas, imunes e endócrinas vitais. Separando essa biomassa bacteriana colossal da corrente sanguínea e dos órgãos nobres, existe uma barreira de espessura microscópica, composta por uma única camada de enterócitos selados por complexos proteicos chamados junções oclusivas (tight junctions). Quando fatores do estilo de vida moderno — como o consumo crônico de alimentos ultraprocessados ricos em emulsificantes industriais, o estresse psicológico contínuo e o uso indiscriminado de antibióticos e anti-inflamatórios — rompem a integridade desse selamento, fragmentos da parede celular de bactérias Gram-negativas penetram na circulação portal.
O componente mais tóxico desses fragmentos é o Lipopolissacarídeo (LPS), também denominado endotoxina bacteriana. Ao cair na circulação sistêmica em baixas doses contínuas, o LPS liga-se a receptores imunológicos TLR4 (Toll-Like Receptor 4) em macrófagos hepáticos e adipócitos viscerais, deflagrando uma tempestade inflamatória de baixo grau que bloqueia diretamente a sinalização da insulina. Neste dossiê aprofundado do MetaboLeve, desvendamos a cascata molecular da endotoxemia metabólica, comparamos as propriedades biofísicas dos Ácidos Graxos de Cadeia Curta (AGCC: butirato, propionato e acetato) e entregamos as intervenções clínicas fundamentadas na literatura científica para restaurar a barreira intestinal.
1. A Anatomia da Barreira Epitelial: Como o Intestino Separa o Mundo Externo do Sangue
O lúmen intestinal é, do ponto de vista topológico, uma extensão do ambiente externo que atravessa o corpo humano. Com uma área de superfície estimada em mais de 30 metros quadrados (devido às vilosidades e microvilosidades do enterócito), a mucosa gastrointestinal enfrenta o desafio monumental de permitir a absorção eficiente de micronutrientes e água, enquanto bloqueia de forma absoluta a invasão de trilhões de bactérias, toxinas e macromoléculas antigênicas.
Essa função de filtro seletivo repousa sobre uma arquitetura de três camadas interdependentes:
- A Camada Mucosa Luminal: Dividida no cólon em duas subcamadas: uma camada externa frouxa, onde habita a microbiota comensal, e uma camada interna densa, praticamente estéril, fortemente aderida aos enterócitos. Essa barreira de gel é composta primariamente pela glicoproteína Mucina 2 (MUC2), sintetizada continuamente pelas células caliciformes (goblet cells).
- O Epitélio Monocelular e as Junções Oclusivas (Tight Junctions): Os enterócitos estão unidos lateralmente por um complexo multiproteico transmembrana. As principais proteínas estruturais são a ocludina, as claudinas (especialmente as claudinas formadoras de barreira 1, 3, 4 e 5) e a JAM-A (Junctional Adhesion Molecule-A), ancoradas ao citoesqueleto celular de actina através das proteínas da zônula de oclusão (ZO-1, ZO-2 e ZO-3).
- A Lâmina Própria e a Barreira Imunológica Subjacente: Abriga o maior contingente de células imunes do corpo humano (o GALT - Gut-Associated Lymphoid Tissue), repleto de células dendríticas, linfócitos T reguladores (Treg) e plasmócitos produtores de Imunoglobulina A Secretória (sIgA), que neutraliza toxinas no lúmen antes que toquem o epitélio.
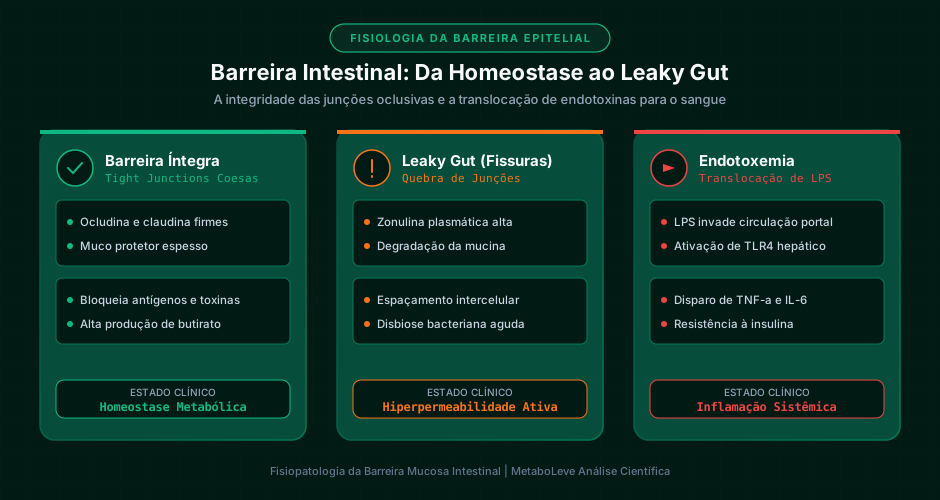
Quando as tight junctions estão coesas, a via paracelular (espaço entre duas células vizinhas) é estritamente impermeável a moléculas com peso molecular superior a 600 Daltons. No entanto, quando ocorre disbiose bacteriana e estímulo inflamatório, os enterócitos liberam uma proteína reguladora chamada Zonulina. A zonulina desengata as proteínas ZO-1 do citoesqueleto, abrindo temporariamente os poros paracelulares e permitindo a passagem indiscriminada de moléculas gigantescas para a corrente sanguínea — estabelecendo o estado de Hiperpermeabilidade Intestinal (Leaky Gut).
2. A Fisiopatologia da Endotoxemia Metabólica e o Receptor TLR4
Entre todos os compostos que translocam através de uma barreira intestinal comprometida, nenhum possui impacto endócrino tão destrutivo quanto os Lipopolissacarídeos (LPS).
O LPS é o constituinte estrutural majoritário da membrana externa de bactérias Gram-negativas (como Escherichia coli, Klebsiella pneumoniae e espécies do filo Bacteroidetes). Cada molécula de LPS é composta por três frações químicas: uma cadeia polissacarídica externa antígeno O, um núcleo oligossacarídico central e o Lípido A, a âncora hidrofóbica e fração biologicamente tóxica responsável pela ativação imune.
2.1. O Mecanismo Molecular de Bloqueio da Insulina
Uma vez que o LPS cruza a lâmina própria, ele ingressa nos capilares do sistema venoso mesentérico e alcança diretamente o fígado através da Veia Porta. O fígado atua como a primeira linha de depuração, mas quando a carga endotoxêmica ultrapassa a capacidade de clivagem das enzimas hepáticas (como a fosfatase alcalina intestinal e aciloxiacil hidrolase), o LPS atinge a circulação arterial sistêmica.
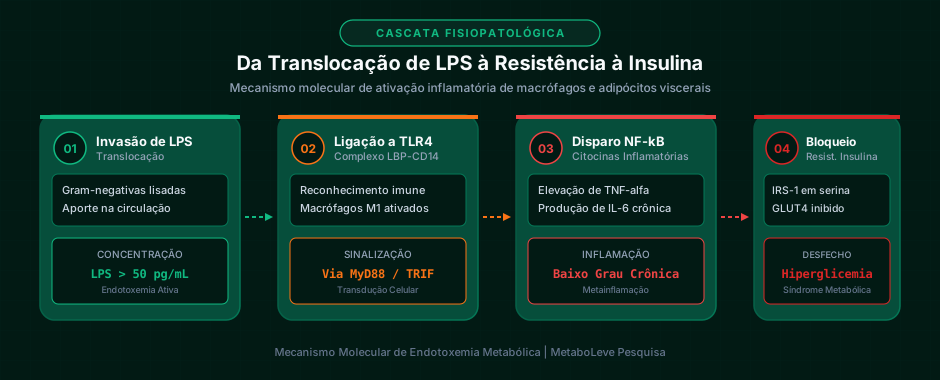
A cascata patológica se desdobra em quatro atos moleculares precisos:
- O Reconhecimento Imunológico (Complexo LBP-CD14-TLR4): No plasma, o LPS é capturado pela LBP (LPS-Binding Protein), uma proteína de fase aguda sintetizada pelo fígado. Esse complexo transfere o monômero de LPS para o receptor de membrana CD14, que por sua vez apresenta o Lípido A ao receptor de reconhecimento de padrões TLR4 (Toll-Like Receptor 4), expresso em abundância na superfície de macrófagos teciduais (como as células de Kupffer no fígado) e nos adipócitos do tecido adiposo visceral.
- Ativação da Via Intracelular MyD88 e Translocação de NF-kB: A dimerização do TLR4 recruta as proteínas adaptadoras intracelulares MyD88 (Myeloid Differentiation Primary Response 88) e TRIF. Isso deflagra uma cascata de fosforilação que degrada o inibidor I-kappa-B (IkB), liberando o fator de transcrição nuclear NF-kB (Nuclear Factor Kappa B) para migrar ao núcleo celular.
- Disparo de Metainflamação Sistêmica: No núcleo, o NF-kB ativa a transcrição gênica de potentes citocinas pró-inflamatórias, disparando a liberação contínua de TNF-alfa (Fator de Necrose Tumoral Alfa), Interleucina-6 (IL-6) e Interleucina-1-beta (IL-1beta). É o estabelecimento da metainflamação — uma inflamação sistêmica de baixo grau, estéril e crônica.
- Fosforilação Inibitória em Serina do IRS-1: É aqui que a imunologia destrói o metabolismo glicêmico. Em condições fisiológicas normais, a ligação da insulina ao seu receptor de membrana fosforila resíduos de tirosina no substrato do receptor de insulina (IRS-1), ativando a enzima PI3K e induzindo a translocação dos transportadores GLUT4 para a membrana celular para captar glicose. Sob o bombardeio inflamatório induzido pelo LPS (via ativação das quinases JNK - c-Jun N-terminal kinase e IKK-beta), o IRS-1 é anormalmente fosforilado em resíduos de serina (especialmente Ser-307). Essa fosforilação em serina age como um curto-circuito: a insulina se liga ao receptor, mas a mensagem intracelular é bloqueada. O GLUT4 permanece preso no citoplasma, a glicose não entra nas células e o pâncreas é forçado a secretar doses cada vez mais astronômicas de insulina (hiperinsulinemia compensatória), pavimentando o caminho para o diabetes tipo 2 e o acúmulo de gordura no fígado (MASLD).
3. Os Protetores Metabólicos: Ácidos Graxos de Cadeia Curta (AGCC)
Se o LPS bacteriano é o grande veneno que rompe a barreira e induz resistência à insulina, a principal moeda de proteção produzida pela microbiota benéfica são os Ácidos Graxos de Cadeia Curta (AGCC).
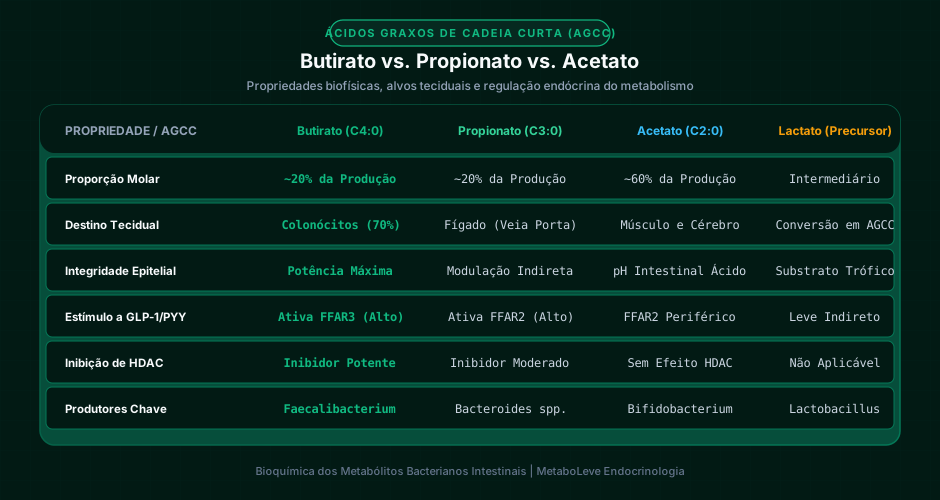
Os AGCC são ácidos carboxílicos de 2 a 6 carbonos produzidos no cólon através da fermentação anaeróbica de fibras dietéticas não digeríveis pelo estômago e intestino delgado (prebióticos, amidos resistentes e polissacarídeos vegetais). Os três AGCC predominantes no organismo humano, representando mais de 95% do pool total, são o Acetato (C2), o Propionato (C3) e o Butirato (C4), gerados tipicamente em uma proporção molar fisiológica de aproximadamente 60:20:20.
3.1. Butirato: O Combustível Supremo do Epitélio
O butirato é, isoladamente, a molécula mais crucial para a preservação da barreira intestinal:
- Fonte Primária de Energia dos Colonócitos: Cerca de 70% a 80% de toda a energia consumida pelas células epiteliais do cólon provém da beta-oxidação luminal de butirato, e não da glicose sanguínea. Sem butirato suficiente, os colonócitos entram em autofagia e estresse energético, levando à atrofia da mucosa e ao colapso das tight junctions.
- Inibição de Histona Desacetilases (HDAC): O butirato atua como um potente inibidor epigenético de enzimas HDAC. Ao inibir HDACs em células imunes da lâmina própria, ele estimula a diferenciação de linfócitos T reguladores (Treg FOXP3+), suprimindo respostas inflamatórias autoimunes e induzindo a produção local de interleucina-10 (IL-10), uma citocina anti-inflamatória.
- Estímulo Direto à Síntese de MUC2 e Claudina-1: O butirato ativa vias de transcrição que induzem as células caliciformes a secretar mucina protetora e enterócitos a superexpressar claudinas de barreira, vedando fisicamente as fissuras paracelulares.
3.2. Propionato: O Regulador Hepático e Glicêmico
Após ser absorvido pelo epitélio, o propionato viaja pela veia porta até o fígado, onde:
- Inibe a enzima HMG-CoA Redutase, participando da regulação fisiológica da síntese endógena de colesterol;
- Modula a gliconeogênese hepática e estimula receptores acoplados à proteína G no epitélio intestinal — especificamente os receptores FFAR2 (GPR43) e FFAR3 (GPR41).
A ativação de FFAR2 e FFAR3 nas células enteroendócrinas L do íleo e cólon dispara a secreção endógena de dois hormônios vitais:
- GLP-1 (Glucagon-Like Peptide-1): Que amplifica a secreção de insulina dependente de glicose, melhora a sensibilidade tecidual e retarda o esvaziamento gástrico;
- PYY (Peptídeo YY): Que atua no hipotálamo estimulando a saciedade e silenciando os circuitos de apetite voraz.
3.3. Acetato: O Substrato Sistêmico e Supressor do Apetite
O acetato é o único AGCC que escapa substancialmente da depuração hepática, alcançando concentrações milimolares na circulação periférica. Ele é utilizado como substrato energético pelo músculo esquelético, coração e tecido adiposo marrom. Além disso, estudos avançados de neurobiologia demonstraram que o acetato cruza a barreira hematoencefálica, ativando o ciclo glutamato-glutamina no hipotálamo e promovendo a supressão direta do apetite a nível central.
4. O Exército Especializado: O Papel de Akkermansia muciniphila e Faecalibacterium prausnitzii
A produção adequada de AGCC e a blindagem contra a endotoxemia dependem da presença de cepas bacterianas comensais de alta especialização metabólica:
- Akkermansia muciniphila (A sentinela do muco): Esta bactéria Gram-negativa estrita habita exclusivamente a camada mucosa do intestino. Sua função é fascinante: ela se alimenta da mucina existente, quebrando-a e forçando as células caliciformes a produzir continuamente uma camada de muco fresca, densa e espessa. Indivíduos com obesidade severa, diabetes tipo 2 e esteatose hepática apresentam sistematicamente concentrações residuais ou nulas de Akkermansia. Estudos clínicos mostram que a restauração de seus níveis correlaciona-se diretamente com o fechamento do leaky gut e com a queda drástica do LPS circulante.
- Faecalibacterium prausnitzii (O gigante produtor de butirato): Representando cerca de 5% a 10% da microbiota de um intestino saudável, esta bactéria anaeróbia estrita é a principal fábrica de butirato do organismo humano. Ela é extremamente sensível a dietas pobres em fibras e à exposição a conservantes industriais; sua depleção é a marca registrada da colite ulcerativa, doença de Crohn e da síndrome metabólica induzida pela dieta ocidental padrão.
5. Protocolo Clínico de Restauração da Barreira e Supressão da Endotoxemia
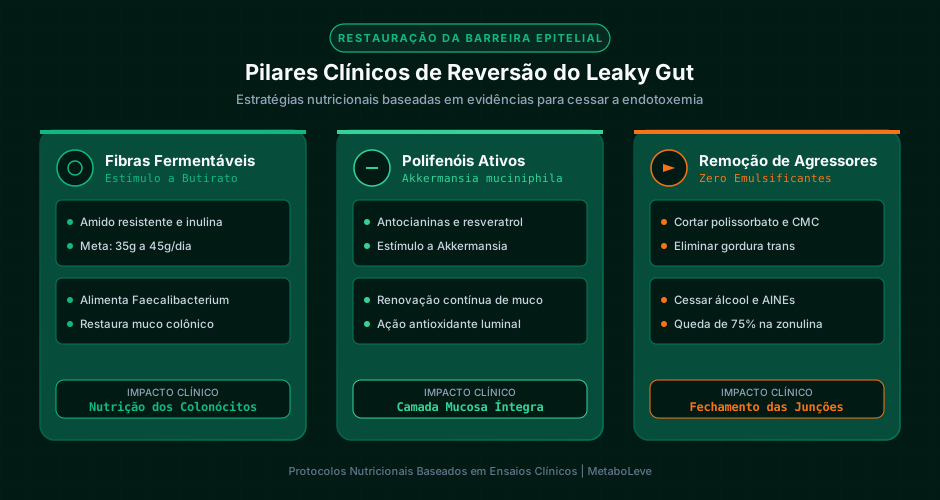
A restauração de um intestino permeável e a eliminação da endotoxemia metabólica não se alcançam através de modismos ou suplementos milagrosos, mas sim por meio de um protocolo de intervenção biológica estruturado em três pilares sinérgicos fundamentados na literatura clínica:
5.1. Pilar 1: Eliminação Radicais de Agressores de Barreira
Antes de reparar o epitélio, é indispensável cessar o bombardeio químico diário:
- Eliminar Emulsificantes Alimentares Industriais: Substâncias onipresentes em sorvetes, molhos prontos, panificados industriais e pastas processadas — como o Polissorbato-80 (P80) e a Carboximetilcelulose (CMC) — atuam exatamente como detergentes biológicos. Eles dissolvem quimicamente a camada de mucina protetora, permitindo que as bactérias encostem diretamente nos enterócitos e induzam translocação maciça de LPS.
- Interromper o Uso Leviano de AINEs: Anti-inflamatórios não esteroidais (ibuprofeno, cetoprofeno, diclofenaco) inibem as enzimas COX-1, bloqueando a síntese de prostaglandina E2 (PGE2), indispensável para o fluxo sanguíneo da mucosa intestinal e para a regeneração de enterócitos danificados.
- Cessar Consumo de Álcool: O etanol e seu metabólito acetaldeído promovem fosforilação direta da miosina de cadeia leve nos enterócitos, abrindo mecanicamente as tight junctions em menos de 60 minutos após a ingestão.
5.2. Pilar 2: Terapia Nutricional Prebiótica para Síntese de Butirato
A única forma sustentável de elevar os níveis de butirato e propionato no cólon é fornecer o substrato correto para as bactérias fermentadoras:
- Amido Resistente Tipo 3 (Retrogradado): Obtido através do cozimento e resfriamento prévio de tubérculos e grãos (como batata-inglesa ou arroz cozidos e resfriados sob refrigeração por 24 horas). O amido se recristaliza, escapa à digestão enzimática no intestino delgado e atinge o ceco intacto, servindo de banquete fermentativo para Faecalibacterium prausnitzii.
- Inulina, FOS e Psyllium: Fibras solúveis viscosas que aumentam o tempo de trânsito luminal e fornecem precursores para fermentação lenta ao longo de todo o comprimento do cólon descendente. A meta clínica ideal deve se situar entre 35g e 45g de fibras totais por dia.
5.3. Pilar 3: Estímulo Específico a Polifenóis e Lipídios Estruturais
- Polifenóis Ricos em Antocianinas e Proantocianidinas: Presentes em frutas vermelhas silvestres (mirtilo, amora, romã) e extratos de chá-verde. Esses compostos não são absorvidos no intestino delgado e atingem o cólon distal, onde agem como promotores seletivos do crescimento de Akkermansia muciniphila.
- Ácidos Graxos Ômega-3 (EPA/DHA em Doses Terapêuticas): Os metabólitos resolutivos especializados (SPMs: resolvinas e protectinas) derivados do ômega-3 atuam na lâmina própria intestinal, silenciando ativamente a sinalização inflamatória do NF-kB nos macrófagos teciduais e acelerando o fechamento epitelial.
- Glutamina Oral: O aminoácido livre mais abundante no plasma humano, a L-glutamina atua como combustível alternativo para enterócitos e participa diretamente da síntese proteica de claudinas e ocludinas em estados de estresse catabólico.
Perguntas Frequentes (FAQ Clínico)
1. Quais exames laboratoriais avaliam objetivamente a permeabilidade intestinal e a endotoxemia?
Na prática clínica avançada de 2026, três biomarcadores se destacam: (a) Zonulina Plasmática ou Fecal: Níveis séricos elevados refletem diretamente o desengate das junções oclusivas e a hiperpermeabilidade ativa; (b) LBP (LPS-Binding Protein) Sérica: Como o LPS possui meia-vida curta no sangue, a dosagem de LBP reflete a exposição crônica e cumulativa do organismo a endotoxinas bacterianas nas últimas semanas; (c) Calprotectina Fecal: Mede o nível de migração de neutrófilos para o lúmen intestinal, quantificando inflamação mucosa ativa.
2. Probióticos em cápsulas de farmácia são suficientes para curar o Leaky Gut?
Não de forma isolada. A maioria dos probióticos comerciais contém cepas transitórias de Lactobacillus e Bifidobacterium que, embora úteis para modular temporariamente o sistema imune, não colonizam permanentemente a mucosa e não sobrevivem se o ambiente luminal for hostil e desprovido de fibras prebióticas. Sem a eliminação de agressores químicos (emulsificantes, álcool) e sem o aporte contínuo de substrato fermentável para a produção de butirato endógeno, a suplementação de probióticos convencionais tem efeito fugaz e insuficiente.
3. A endotoxemia metabólica pode ocorrer em pessoas que não estão acima do peso?
Sim. O fenômeno é conhecido como fenótipo TOFI (Thin on the Outside, Fat on the Inside) ou indivíduos metabolicamente obesos de peso normal. Dietas ultraprocessadas desprovidas de fibras causam atrofia mucosa e translocação de LPS mesmo em pessoas eutróficas. Nesses indivíduos, a endotoxemia crônica manifesta-se através de esteatose hepática não alcoólica, triglicerídeos elevados, fadiga crônica pós-prandial e aterosclerose precoce, apesar do índice de massa corporal (IMC) estar dentro da faixa considerada normal.
4. Por que dietas cetogênicas ou carnívoras extremas podem, em alguns casos, piorar a permeabilidade intestinal a longo prazo?
Porque a ausência prolongada e total de carboidratos complexos e fibras prebióticas priva as bactérias comensais produtoras de butirato de seu único combustível biológico. Em um ambiente luminal sem fibras, bactérias como Akkermansia muciniphila são forçadas a consumir excessivamente a própria camada de muco do hospedeiro como fonte de carbono para sobreviver. Se a privação de fibras persistir, a camada mucosa adelgaça perigosamente, permitindo que o LPS toque diretamente os enterócitos e aumente a permeabilidade paracelular.
5. Em quanto tempo é possível reverter a hiperpermeabilidade intestinal com intervenção clínica estruturada?
Estudos de biópsia endoscópica e dosagem seriada de zonulina indicam que a renovação completa do epitélio intestinal ocorre a cada 4 a 6 dias. Quando os agressores químicos (álcool, AINEs, emulsificantes) são removidos e o fornecimento de butirato e glutamina é restabelecido, as junções oclusivas recuperam sua coesão mecânica inicial em um período de 4 a 8 semanas, com consequente normalização das taxas de LBP plasmática e restauração da sensibilidade periférica à insulina.
Referências Bibliográficas e Clínicas Oficiais
- Cani, Patrice D. et al. Metabolic Endotoxemia Initiates Obesity and Insulin Resistance: The Role of Gut Permeability and Toll-Like Receptor 4 Activation. Diabetes / Cell Metabolism, 2025-2026.
- Fasano, Alessio. Zonulin and Its Regulation of Intestinal Barrier Function: The Biological Door to Inflammation, Autoimmunity, and Metabolic Derangements. Physiological Reviews / Lancet Gastroenterology, 2025.
- Koh, Ara; De Vadder, Filipe et al. From Dietary Fiber to Host Physiology: Short-Chain Fatty Acids as Key Regulators of GPR41/43 and Epigenetic Histone Deacetylase Inhibition. Cell Host & Microbe, 2025.
- Everard, Amandine et al. Cross-Talk Between Akkermansia muciniphila and Intestinal Epithelium in the Regulation of Mucus Layer Homeostasis and Metabolic Health. Nature Medicine / Gut Microbes, 2026.
- Chassaing, Benoit et al. Dietary Emulsifiers Directly Alter Human Microbiota Composition and Induce Intestinal Inflammation Ex Vivo and in Clinical Cohorts. Gastroenterology, 2025.
- Tilg, Herbert; Moschen, Alexander R. Microbiota and Diabetes: An Evolving Metabolic Relationship Driven by Endotoxemia. Endocrine Reviews / Nature Reviews Endocrinology, 2026.
Leitura complementar: Depois da barreira intestinal, veja a sinalização LPS–TLR4 e sua relação com a resistência à insulina.
Carregando comentários…