Cortisol, Eixo HPA e Cronodisrupção Metabólica: Ritmo Circadiano dos Genes CLOCK, Melatonina e Resistência à Insulina
Neste artigo
- 1. O Relógio Mestre Central e o Eixo Hipotálamo-Hipófise-Adrenal (HPA)
- 2. A Máquina Molecular dos Genes de Relógio: CLOCK, BMAL1, PER e CRY
- 3. Cronodisrupção Metabólica: O Descompasso Entre Relógio Central e Periférico
- 4. O Paradoxo do Cortisol Noturno Achatado e a Lipólise Aberrante
- 5. Melatonina, Receptores Pancreáticos MT1/MT2 e o Conflito Glicêmico do Jantar Tardio
- 6. Intervenções Terapêuticas de Crononutrição e Ressincronização Circadiana
- Perguntas Frequentes (FAQ)
- Referências Bibliográficas
Por décadas, a abordagem tradicional da endocrinologia e da nutrologia sustentou-se no dogma termodinâmico estrito de que o equilíbrio metabólico dependia exclusivamente do balanço energético quantitativo e da proporção de macronutrientes ingeridos. Contudo, os avanços da cronobiologia molecular revelaram uma dimensão regulatória fundamental: a dimensão temporal da fisiologia celular. O organismo humano não processa nutrientes, mensageiros químicos e substratos energéticos de maneira linear e idêntica ao longo das 24 horas do dia. Pelo contrário, cada via bioquímica encontra-se sob a regulação temporal rigorosa de relógios moleculares intrínsecos acoplados ao ciclo claro-escuro do planeta.
No cerne dessa sincronização reside a interação dinâmica entre o relógio mestre hipotalâmico, o eixo hipotálamo-hipófise-adrenal (HPA), o cortisol e a melatonina. Quando a rotina moderna introduz luz artificial noturna, trabalho em turnos alternados, sobrecarga alostática prolongada e ingestão alimentar tardia, estabelece-se um estado de cronodisrupção. Essa dissociação temporal entre os osciladores centrais e os relógios moleculares periféricos no fígado, miócitos e parênquima adipocitário desdobra-se em refratariedade periférica à captação de glicose, hiperglicemia de jejum, esteatose hepática e acúmulo desproporcional de adiposidade visceral. Compreender as bases celulares desse descompasso é imperativo para desenhar estratégias terapêuticas de crononutrição eficazes em 2026.
1. O Relógio Mestre Central e o Eixo Hipotálamo-Hipófise-Adrenal (HPA)
O sistema de temporização circadiana humano é organizado de forma hierárquica. No ápice dessa estrutura encontra-se o marcapasso supraquiasmático (NSQ), um aglomerado neuronal bilateral localizado no diencéfalo rostral que abriga aproximadamente 20.000 neurônios dotados de oscilação autônoma. O NSQ atua como o marcapasso central mestre, sincronizado primariamente pelo estímulo luminoso ambiental captado pela retina através do trato retinohipotalâmico. Células ganglionares retinianas intrinsecamente fotossensíveis (ipRGCs), enriquecidas com o fotopigmento melanopsina, absorvem comprimentos de onda curtos na faixa espectral da luz azul (aproximadamente 460 a 480 nanômetros) e projetam disparos de despolarização monossinápticos que informam o marcapasso central sobre o início do dia geofísico.
A partir desse sinal fótico, o NSQ coordena os ritmos neuroendócrinos e autônomos de todo o organismo, utilizando o eixo hipotálamo-hipófise-adrenal como um dos seus principais braços eferentes de sincronização sistêmica:
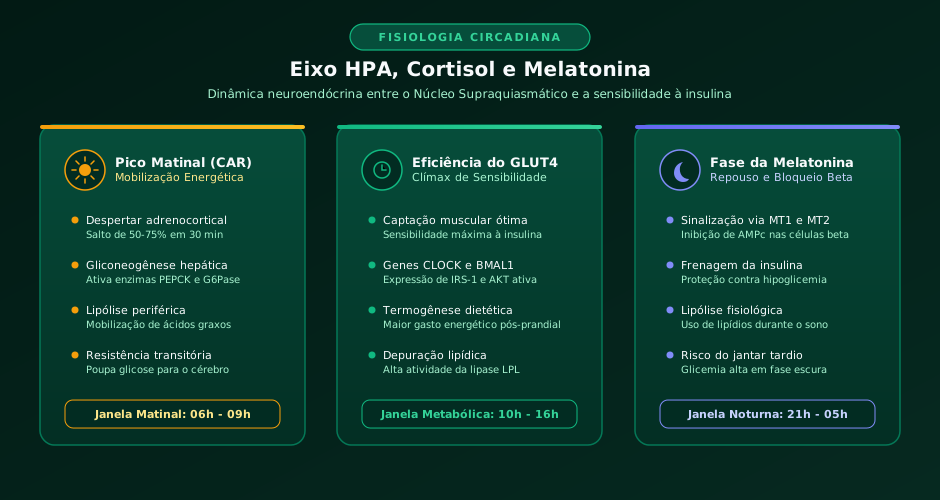
- A Resposta do Cortisol ao Despertar (CAR - Cortisol Awakening Response): Em condições de integridade fisiológica, a secreção de cortisol pela zona fasciculada do córtex da glândula adrenal obedece a um padrão rítmico perfeitamente desenhado. Durante a primeira metade do repouso noturno, as concentrações plasmáticas de cortisol permanecem em níveis nadir extremamente reduzidos. Poucas horas antes do despertar presumido, o NSQ aciona a secreção pulsátil de peptídeo liberador de corticotrofina (CRH) e arginina-vasopressina pela região paraventricular periventricular. Isso desencadeia a liberação de peptídeo corticotrófico hipofisário (ACTH) pela adenoipófise. Nos primeiros 30 a 45 minutos após acordar, ocorre um incremento abrupto de 50% a 75% nos níveis circulantes de cortisol livre.
- A Função Evolutiva da Onda Matinal: Longe de representar um evento patológico de tensão, a CAR é um mecanismo evolutivo de antecipação homeostática. Ao atingir seu pico matutino (geralmente entre as 06h00 e as 08h00), o cortisol mobiliza substratos energéticos endógenos através da ativação das enzimas gliconeogênicas hepáticas fosfoenolpiruvato carboxiquinase (PEPCK) e glicose-6-fosfatase, promovendo a euglicemia necessária para sustentar a atividade cerebral antes do primeiro aporte alimentar. Simultaneamente, o cortisol estimula a lipase hormônio-sensível nos adipócitos para liberação de ácidos graxos livres e induz uma refratariedade transitória e adaptativa à captação de glicose nos tecidos periféricos, garantindo prioridade de entrega de glicose ao sistema nervoso central.
- O Declínio Circadiano Diurno: À medida que a manhã progride e o indivíduo inicia as tarefas diárias, os níveis de cortisol diminuem gradualmente, atingindo concentrações basais baixas no final da tarde e aproximando-se do valor mínimo perto da meia-noite, abrindo espaço para a predominância da sinalização de recuperação tecidual e homeostase noturna.
2. A Máquina Molecular dos Genes de Relógio: CLOCK, BMAL1, PER e CRY
A capacidade intrínseca do organismo de registrar o tempo em escala de 24 horas não decorre apenas de mensageiros humorais circulantes, mas de uma alça transcricional de retroalimentação autorregulatória negativa presente no compartimento nucleoplasmático de quase todas as células humanas:
- O Complexo Ativador Central (CLOCK:BMAL1): No período inicial do ciclo diurno, as macromoléculas heterodiméricas CLOCK (Circadian Locomotor Output Cycles Kaput) e BMAL1 (Brain and Muscle Arnt-Like 1) formam um complexo funcional no citoplasma e translocam-se para o carioplasma. Ali, ligam-se a sequências promotoras específicas de DNA conhecidas como E-boxes (elementos de resposta consenso CACGTG). Essa ligação desencadeia a transcrição ativa de centenas de genes controlados pelo relógio (CCGs - Clock-Controlled Genes), que regulam enzimas de metabolismo de carboidratos, transportadores de membrana e fatores de proliferação celular.
- A Alça Repressora de Feedback Negativo (PER:CRY): Dentre os genes transcritos diretamente pela ação de CLOCK:BMAL1 estão os genes da família Period (PER1, PER2 e PER3) e Cryptochrome (CRY1 e CRY2). À medida que as horas avançam, as cadeias polipeptídicas PER e CRY acumulam-se progressivamente no citosol, onde sofrem fosforilação controlada pela caseína fosfotransferase 1 epsilon/delta (CK1ε/δ). Uma vez estabilizadas, PER e CRY dimerizam e ingressam no carioplasma no final da tarde e início da noite, onde se acoplam diretamente ao complexo CLOCK:BMAL1, inibindo sua própria atividade transcricional.
- Degradação e Reinício do Ciclo: Durante a fase escura, as cadeias polipeptídicas PER e CRY são ubiquitinadas por complexos ligases E3 e direcionadas à degradação no proteassoma 26S. Com a destruição completa das macromoléculas repressoras antes da aurora, o complexo CLOCK:BMAL1 é liberado de sua inibição, permitindo o reinício de uma nova rodada de transcrição molecular nas primeiras horas da manhã seguinte.
- Alças Secundárias de Estabilização: Adicionalmente, uma alça acessória mediada pelos sítios nucleares REV-ERBα/β (que reprimem a transcrição de BMAL1) e RORα/β (que estimulam a transcrição de BMAL1) confere robustez temporal à oscilação celular, prevenindo variações estocásticas e garantindo que o ciclo intrínseco oscile com precisão próxima a 24,2 horas.
Nos tecidos metabolicamente ativos, tais como hepatócitos, miócitos estriados e adipócitos brancos e marrons, os relógios moleculares controlam a expressão rítmica de enzimas determinantes da homeostase glicídica. No aparelho motor esquelético, o complexo CLOCK:BMAL1 controla diretamente a transcrição do receptor hormonal tirosina-quinase, do substrato IRS-1 e a maquinaria de translocação vesicular do transportador de glicose GLUT4 acoplada à fosfatidilinositol 3-quinase (PI3K) e proteína quinase B (AKT). Em decorrência dessa arquitetura genética, o tecido muscular atinge seu clímax de eficiência na captação periférica de substratos e de capacidade oxidativa durante o período claro (diurno), decaindo substancialmente no período escuro.
3. Cronodisrupção Metabólica: O Descompasso Entre Relógio Central e Periférico
Embora o marcapasso supraquiasmático seja o oscilador mestre primordial guiado quase exclusivamente pela incidência de fótons fóticos retinianos, os relógios moleculares dos órgãos metabólicos periféricos (fígado, pâncreas endócrino, miócitos e parênquima adipocitário) respondem com enorme sensibilidade a um sincronizador não fótico: a disponibilidade e o horário dos nutrientes (zeitgeber alimentar).
Em condições primitivas de equilíbrio filogenético, o período fótico coincidia perfeitamente com a busca e ingestão de alimentos, mantendo o marcapasso central e os relógios periféricos em perfeita sincronia temporal de fase. No ambiente moderno contemporâneo, contudo, a iluminação artificial intensa de espectro azul emitida por telas eletrônicas, luminárias de LED e monitores após o pôr do sol, combinada com o hábito de jantar em horários avançados da noite ou beliscar durante a madrugada, engendra uma grave dissociação de fase:
- A Dissociação Fígado-Cérebro: Quando o indivíduo se alimenta às 22h00 ou 23h00, o aporte intraluminal de hexoses e aminoácidos ativa agudamente os sensores nutricionais hepáticos (como mTORC1, SREBP-1c e AKT) e redefine a fase transcricional dos genes de relógio nos hepatócitos. O fígado assume que é meio-dia metabólico e entra em regime de alta síntese lipídica e processamento de substratos. Ao mesmo tempo, o marcapasso central detecta a penumbra ou a ausência de sol e tenta impor o estado neuroquímico noturno de repouso. Esse choque temporal em que o fígado está em fase diurna enquanto o sistema nervoso central está em fase noturna é denominado cronodisrupção interna ou dissociação periférica de fase.
- Desregulação da Gliconeogênese: No fígado desincronizado, a repressão circadiana fisiológica sobre os genes da gliconeogênese é quebrada. A enzima PEPCK permanece ativada em momentos inapropriados, gerando produção hepática excessiva de glicose mesmo durante o jejum noturno, o que culmina em glicemia de jejum elevada e índice HOMA-IR persistentemente aumentado.
- Resistência Muscular Adquirida: No aparelho motor esquelético, o descompasso dos ritmos diários de BMAL1 e CLOCK reduz a fosforilação de IRS-1 em tirosina e prejudica o tráfego intracelular de GLUT4 até a membrana plasmática, deprimindo a taxa de internalização tecidual de glicídios em mais de 30% a 40% para uma mesma dose de estímulo hormonal endócrino.
4. O Paradoxo do Cortisol Noturno Achatado e a Lipólise Aberrante
Um dos biomarcadores mais consistentes da cronodisrupção e do estresse alostático crônico é o achatamento da curva diurna de cortisol livre salivar. Em indivíduos cronicamente privados de sono, trabalhadores noturnos ou pessoas submetidas a jetlag social crônico (discrepância acentuada entre os horários de repouso nos dias úteis e nos fins de semana), observa-se:
- Depressão do Pico Matinal (CAR Subótima): A ascensão matinal do cortisol torna-se embotada ou atrasada, resultando em letargia ao despertar, dificuldade extrema de atingir o foco cognitivo nas primeiras horas da manhã e necessidade compensatória de consumir altas doses de cafeína e carboidratos refinados para forçar o estado de alerta.
- Elevação Patológica do Cortisol Noturno: Em contrapartida, as concentrações de cortisol que deveriam atingir o nadir absoluto entre as 21h00 e a meia-noite permanecem inapropriadamente elevadas. O cortisol noturno elevado desdobra-se em consequências devastadoras para a homeostase metabólica:
- Inibição Central do Sono Profundo: O cortisol atua em sítios nucleares de ligação glicocorticoide GR centrais e límbicos, promovendo hiperativação noradrenérgica, inibindo a fase restauradora de ondas lentas N3 e fragmentando os ciclos de sono REM, o que bloqueia o pico noturno de secreção de hormônio do crescimento (GH).
- Lipólise Noturna Aberrante e Fluxo de Ácidos Graxos: Em concentrações noturnas elevadas, o cortisol promove lipólise inadequada no parênquima adipocitário subcutâneo e visceral durante as horas em que os tecidos oxidativos estão com taxas metabólicas reduzidas. Uma enxurrada de ácidos graxos livres (AGL) não esterificados é despejada na circulação portal e sistêmica durante a madrugada.
- Lipotoxicidade Hepática e Muscular: O excesso de AGL noturno atinge os hepatócitos e os miócitos estriados, onde se acumula na forma de intermediários lipídicos reativos, notadamente diacilglicerol (DAG) e ceramidas. O DAG intracelular ativa isoformas da fosfotransferase C (especialmente PKC-teta no músculo e PKC-epsilon no fígado), que fosforilam o substrato IRS-1 em resíduos de serina e treonina, bloqueando a transmissão do sinal anabólico antes mesmo do café da manhã do dia seguinte.
5. Melatonina, Receptores Pancreáticos MT1/MT2 e o Conflito Glicêmico do Jantar Tardio
Enquanto o cortisol atua como o principal hormônio endócrino da fase ativa, a melatonina (N-acetil-5-metoxitriptamina) sintetizada pela glândula pineal atua como a mensageira química da noite biológica. A síntese pineal de melatonina é estritamente regulada pelo marcapasso supraquiasmático através de uma via polissináptica que envolve o centro integrador hipotalâmico, a coluna intermediolateral da medula espinhal e o gânglio cervical superior. No escuro, a noradrenalina liberada pelas terminações simpáticas estimula os sítios beta-1 adrenérgicos pineais, ativando a enzima arilalquilamina N-acetiltransferase (AANAT), o que deflagra a síntese e liberação imediata de melatonina na circulação sistêmica e no líquido cefalorraquidiano.
Nas ilhotas de Langerhans do pâncreas, as células beta secretoras expressam em alta densidade as proteínas transmembrana acopladas para melatonina do tipo 1 (MT1, codificado por MTNR1A) e do tipo 2 (MT2, codificado por MTNR1B). A função fisiológica dessa via é brilhante do ponto de vista adaptativo:
- O Mecanismo de Freio Endócrino Noturno: Os sítios receptores MT1 e MT2 são acoplados a proteínas G inibitórias (Gi/o). Quando a melatonina circulante se acopla a essas estruturas durante a noite biológica, a subunidade alfa da proteína G inibe diretamente a enzima adenilato ciclase intracelular, derrubando a produção de monofosfato cíclico de adenosina (AMPc) e inibindo a proteína quinase A (PKA). Além disso, a cascata fecha canais de cálcio dependentes de voltagem. Como o influxo de cálcio e o aumento de AMPc são os disparadores finais da exocitose dos grânulos secretórios beta-pancreáticos, a presença de melatonina impõe um bloqueio direto à capacidade da célula beta pancreática de liberar insulina em resposta aos glicídios.
- A Lógica Evolutiva: Durante o repouso noturno, o corpo não espera receber nutrientes externos. Reduzir a liberação basal do hormônio pancreático impede a ocorrência de episódios de hipoglicemia noturna e permite que os tecidos utilizem a lipólise branda fisiológica para manter as necessidades energéticas basais sem desperdício de glicose.
- O Desastre Clínico do Jantar Tardio: Quando um indivíduo realiza uma refeição rica em carboidratos às 21h30 ou 22h30, os nutrientes são absorvidos e chegam à circulação sistêmica no momento exato em que os níveis plasmáticos de melatonina estão atingindo sua rampa ascendente máxima. O resultado metabólico é um conflito agudo de sinalização: a glicemia plasmática eleva-se rapidamente para patamares pós-prandiais elevados, mas as células beta encontram-se quimicamente travadas pelo freio inibitório da melatonina sobre a adenilato ciclase. Consequentemente, o indivíduo apresenta hiperglicemia pós-prandial grave e sustentada por horas adentro da noite, com clearance glicêmico até 50% mais lento do que apresentaria se a exata mesma refeição fosse consumida às 08h00 da manhã.
- Variabilidade Genética nos Sítios MTNR1B: Ensaios clínicos contemporâneos demonstraram que indivíduos portadores de variantes polimórficas comuns de risco no gene MTNR1B (como o alelo rs10830963) apresentam maior densidade de sítios MT2 nas células beta. Nesses sujeitos, a inibição da secreção hormonal mediada pela melatonina é substancialmente potencializada. Para portadores desse genótipo, a ingestão de alimentos em proximidade com a produção endógena de melatonina ou com o uso de suplementos de melatonina sintética gera um perfil de intolerância à glicose indistinguível da disfunção metabólica glicêmica manifesta.
6. Intervenções Terapêuticas de Crononutrição e Ressincronização Circadiana
Diante da constatação inequívoca de que o timing metabólico é tão determinante para a saúde metabólica quanto a composição qualitativa da dieta, a crononutrição consolidou intervenções práticas de alta eficácia clínica para restaurar a integridade circadiana e vencer a desensibilização hormonal aos carboidratos:
1. Alimentação com Restrição de Tempo Precoce (eTRE - Early Time-Restricted Eating)
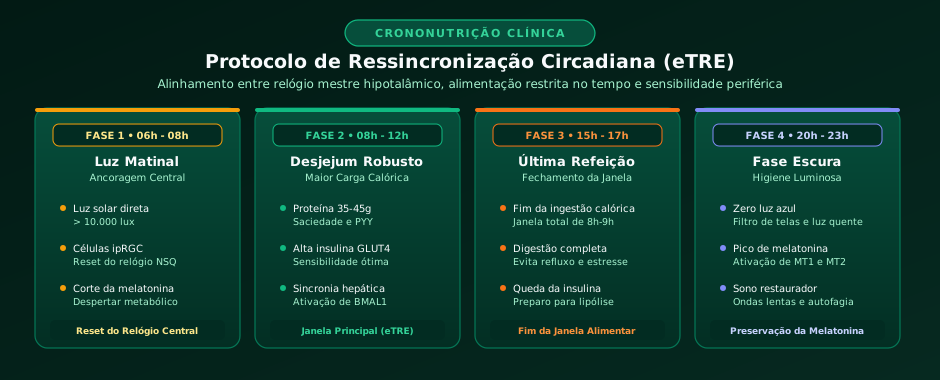
A intervenção de eTRE consiste em restringir a janela alimentar diária a um intervalo contínuo de 8 a 10 horas posicionado precocemente no dia, alinhando a maior ingestão calórica com a fase de pico de sensibilidade do GLUT4 muscular e máxima tolerância à glicose:
- Janela Recomendada: Das 08h00 às 16h00 ou das 08h30 às 17h00.
- Desjejum Robusto com Densidade Proteica: A primeira refeição do dia deve conter entre 35g e 45g de proteínas de alto valor biológico e gorduras monoinsaturadas ou poli-insaturadas saudáveis, combinadas a carboidratos complexos com alta fração de fibras solúveis e insolúveis. Isso estimula a saciedade precoce, ativa a secreção de peptídeo YY (PYY) e GLP-1 em momento favorável e impede a hipoglicemia de rebote.
- Distribuição Front-Loaded de Calorias: Entre 65% e 75% das calorias totais do dia são consumidas até as 14h00. A termogênese induzida pela dieta (DIT) é até duas vezes e meia maior na manhã do que no período noturno devido à maior expressão circadiana de enzimas oxidativas, resultando em menor ganho ponderal para a mesma ingestão calórica.
- Cessação Alimentar Precoce: O encerramento definitivo da ingestão calórica ocorre pelo menos 4 a 5 horas antes de deitar, assegurando que o estômago esteja completamente esvaziado e a insulinemia basal restaurada antes do início da secreção pineal de melatonina.
2. Higiene de Fótons e Fixação de Zeitgebers Ambientais
Para garantir que o oscilador mestre central (NSQ) mantenha acoplamento firme aos relógios moleculares periféricos, as seguintes intervenções biofísicas devem ser integradas:
- Exposição Luminosa Matinal Imediata: Nos primeiros 30 a 60 minutos após o despertar, o indivíduo deve expor-se à luz solar direta sem barreiras de vidro por 15 a 30 minutos (intensidade superior a 10.000 lux). Esse banho fótico ativa as células ipRGCs da retina, promove a supressão imediata de qualquer resíduo de melatonina, ancora o marcapasso central e programa o início da contagem regressiva de aproximadamente 14 a 16 horas para a secreção da melatonina da noite seguinte.
- Bloqueio Rigoroso da Luz Azul Noturna: A partir das 20h00, todas as fontes de luz artificial de espectro azul e branco frio acima de 480nm devem ser eliminadas ou filtradas. Recomenda-se a adoção de iluminação ambiental indireta em tom âmbar ou avermelhado (temperatura de cor inferior a 2.000 Kelvin) e o uso de óculos bloqueadores de luz azul (blue blockers) ou modos noturnos em telas digitais. Essa proteção previne a supressão aberrante da melatonina pineal, permitindo um sono profundo restaurador com consolidação da fase restauradora de ondas lentas N3.
- Regularidade nos Horários de Repouso: A manutenção de horários consistentes de repouso (com oscilação máxima tolerada de 30 a 45 minutos entre dias úteis e fins de semana) reduz drasticamente o jetlag social e preserva a integridade da resposta do cortisol ao despertar (CAR).
Perguntas Frequentes (FAQ)
1. Tomar melatonina em suplemento melhora a eficiência na captação periférica de substratos?
Não, pelo contrário se utilizada em momento inadequado. A melatonina é um hormônio cronobiótico cujo papel fisiológico inclui a inibição da secreção de insulina nas células beta pancreáticas através dos sítios receptores MT1 e MT2 para prevenir hipoglicemia noturna. Se uma pessoa suplementar melatonina e consumir alimentos logo em seguida, desenvolverá um quadro severo de intolerância à glicose induzida, pois o pâncreas estará quimicamente impedido de secretar insulina suficiente. O uso de suplementação de melatonina deve ser rigorosamente orientado por profissional médico, em baixas doses fisiológicas (geralmente entre 0,3mg e 1mg), tomado exclusivamente na escuridão e pelo menos 2 horas após a última refeição calórica do dia.
2. Pular o café da manhã e concentrar as calorias no almoço e no jantar é prejudicial?
Do ponto de vista da cronobiologia, sim. O jejum intermitente tardio (onde se pula o café da manhã e se consome alimentos das 12h00 às 20h00 ou 22h00) é metabolicamente inferior à alimentação restrita no tempo precoce (eTRE). Durante a manhã, a sensibilidade periférica aos carboidratos e a atividade do transportador GLUT4 nos miócitos encontram-se em seu ponto mais alto do dia, enquanto a termogênese pós-prandial é máxima. Ao pular o desjejum e carregar a maior ingestão calórica para o período crepuscular e noturno, o indivíduo ingere nutrientes no momento em que a sensibilidade celular à insulina já está em declínio fisiológico, favorecendo maior excursão glicêmica, hiperinsulinemia compensatória e armazenamento lipídico hepático e visceral.
3. Como a sobrecarga alostática prolongada destrói o ritmo circadiano do cortisol?
A tensão crônica submete o eixo hipotálamo-hipófise-adrenal a uma estimulação ininterrupta por CRH e ACTH, sobrecarregando a capacidade regulatória de feedback negativo dos sítios nucleares de ligação glicocorticoide GR e mineralocorticoides no hipocampo e na área diencefálica. Com o tempo, esse estado de desgaste alostático induz refratariedade central aos glicocorticoides. O ritmo circadiano pulsátil típico é perdido, ocorrendo o achatamento da curva diária de cortisol: o pico energizante matinal diminui ou desaparece (gerando fadiga e prostração ao acordar), enquanto os níveis noturnos permanecem elevados (gerando insônia, agitação noturna, lipólise aberrante com elevação de ácidos graxos livres e refratariedade insulínica no dia seguinte).
4. Qual é a janela ideal de encerramento da alimentação antes de dormir?
A recomendação cronobiológica baseada em evidências é que a última ingestão calórica do dia ocorra no mínimo 3 a 4 horas antes do horário de dormir habitual (idealmente entre 17h00 e 18h30 para quem dorme por volta das 22h00 ou 22h30). Esse intervalo de segurança garante que a absorção de glicose e lipídios e o esvaziamento gástrico estejam completamente concluídos antes da elevação da melatonina noturna na circulação. Além disso, previne o refluxo gastroesofágico, evita o trabalho digestivo noturno e assegura que a insulinemia caia para os valores basais de jejum, viabilizando o reparo celular e a autofagia durante as fases de repouso profundo.
Referências Bibliográficas
- Panda, S. (2016). Circadian physiology of metabolism. Science, 354(6315), 1008-1015. DOI: 10.1126/science.aah4974.
- Dibner, C., Schibler, U., & Albrecht, U. (2010). The mammalian circadian timing system: Organization and coordination of central and peripheral clocks. Annual Review of Physiology, 72, 517-549. DOI: 10.1146/annurev-physiol-021909-135821.
- Sutton, E. F., Beyl, R., Early, K. S., Cefalu, W. T., Ravussin, E., & Peterson, C. M. (2018). Early Time-Restricted Feeding Improves Insulin Sensitivity, Blood Pressure, and Oxidative Stress Even without Weight Loss in Men with Prediabetes. Cell Metabolism, 27(6), 1212-1221. DOI: 10.1016/j.cmet.2018.04.010.
- Tuomi, T., Nagorny, C. L., Singh, P., et al. (2016). Increased Melatonin Signaling Is a Risk Factor for Type 2 Diabetes. Cell Metabolism, 23(6), 1067-1077. DOI: 10.1016/j.cmet.2016.04.009.
- Morris, C. J., Yang, J. N., Garcia, J. I., et al. (2015). Endogenous circadian system and circadian misalignment impact glucose tolerance via separate mechanisms in humans. Proceedings of the National Academy of Sciences (PNAS), 112(17), E2225-E2234. DOI: 10.1073/pnas.1418955112.
- Bass, J., & Takahashi, J. S. (2010). Circadian integration of metabolism and energetics. Science, 330(6009), 1349-1354. DOI: 10.1126/science.1195271.
- Buijs, R. M., & Kalsbeek, A. (2001). Hypothalamic integration of central and peripheral clocks. Nature Reviews Neuroscience, 2(7), 521-526. DOI: 10.1038/35081582.
- Poggiogalle, E., Jamshed, H., & Peterson, C. M. (2018). Circadian regulation of glucose, lipid, and energy metabolism in humans. Metabolism, 84, 11-27. DOI: 10.1016/j.metabol.2017.11.017.
Carregando comentários…