Músculo Esquelético como Órgão Endócrino: Miocinas, Captação Não-Insulinodependente de Glicose e Combate à Sarcopenia
Neste artigo
- 1. O Músculo em Ação: A Revolução das Miocinas e a Comunicação Inter-Órgãos
- 2. depuração de monossacarídeos Não-Insulinodependente: O Desvio Metabólico da Contração
- 3. Resistência Anabólica e Sarcopenia: A Mecânica da Síntese Proteica Muscular (MPS)
- 4. Biogênese Mitocondrial, PGC-1α e Flexibilidade energética
- 5. Prescrições Práticas e Crononutrição do Tecido Muscular
- 6. Perguntas Frequentes (FAQ Metabólico)
- 7. Referências Bibliográficas e Evidências Clínicas
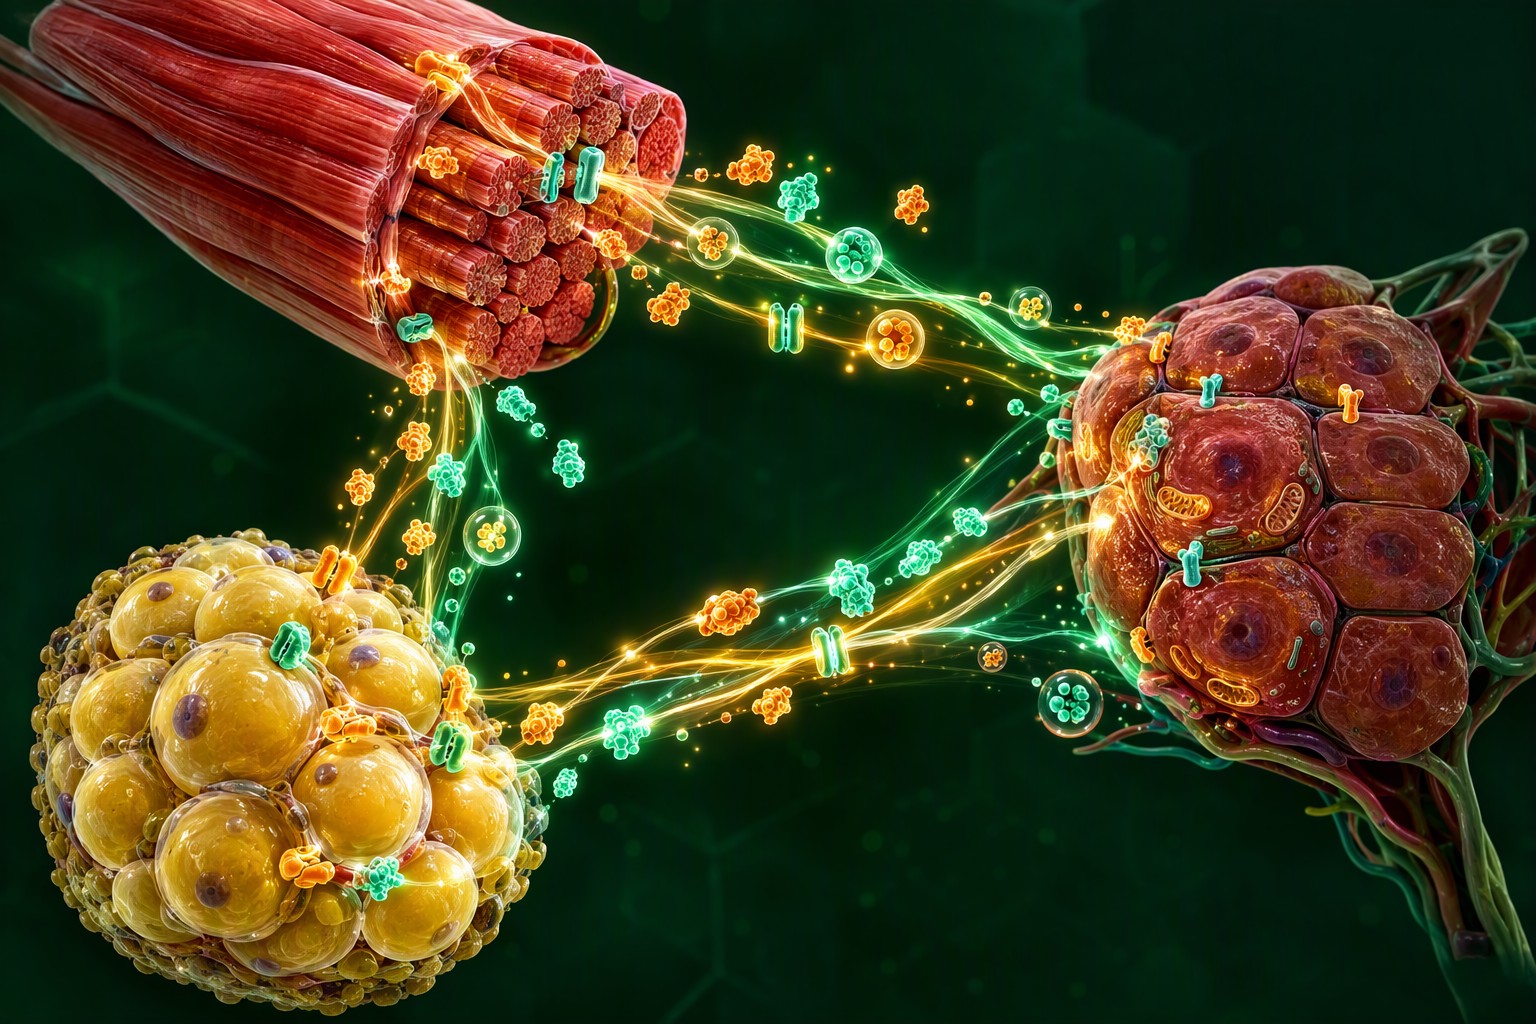
Durante décadas, a fisiologia clássica enxergou o tecido muscular esquelético sob uma ótica estritamente mecânica: uma estrutura biológica composta por sarcômeros, actina e miosina destinada unicamente à locomoção, sustentação postural e geração de força física. No entanto, os avanços pioneiros da endocrinologia molecular nas últimas duas décadas, impulsionados pela identificação das primeiras miocinas (peptídeos secretados ativamente pelas fibras musculares em resposta à contração), redefiniram o músculo esquelético como o maior órgão endócrino e metabólico do corpo humano, correspondendo a cerca de 40% do peso corporal total em indivíduos saudáveis.
A musculatura esquelética atua como o principal sumidouro de carboidratos pós-prandial do organismo, respondendo por mais de 75% a 80% de toda a depuração de monossacarídeos mediada por hormônio de estocagem. Contudo, em estados de disfunção energética avançada — como na obesidade sarcopênica, esteatose hepática e desordens glicoenergéticas crônicas —, a via clássica de sinalização da hormônio de estocagem no miócito encontra-se severamente fosforilada em resíduos inibitórios de serina/treonina, bloqueando a captação celular de substrato. É precisamente nesse ponto que a contração mecânica do músculo esquelético revela sua potência terapêutica singular: a capacidade de ativar vias intracelulares alternativas que promovem a translocação não-insulinodependente de vesículas de GLUT4, resgatando a internalização de substrato glicídico e coordenando uma rede sistêmica de comunicação humoral com o fígado, osso, sistema nervoso central e tecido adiposo.
1. O Músculo em Ação: A Revolução das Miocinas e a Comunicação Inter-Órgãos
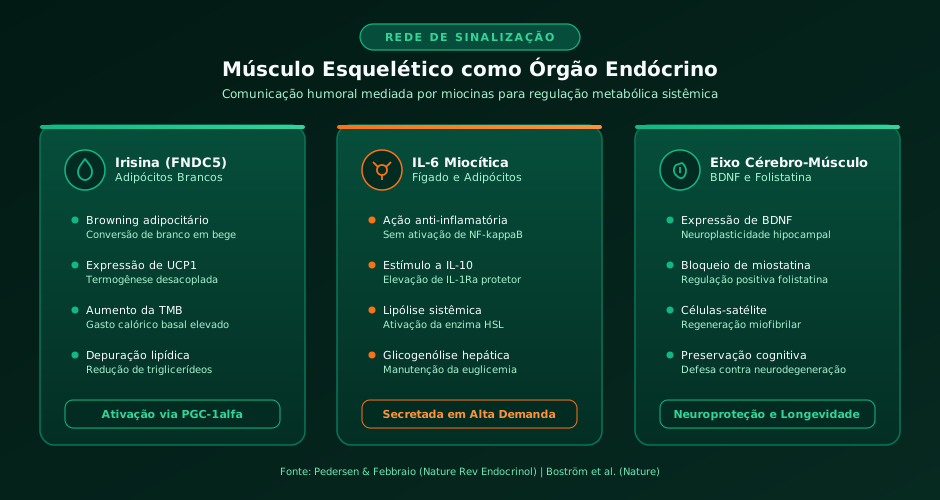
Quando uma fibra muscular contrai repetidamente sob carga ou demanda aeróbica, ela não consome apenas reservas energéticas locais; ela sintetiza e verte na circulação sistêmica centenas de moléculas bioativas chamadas miocinas. Estas atuam de forma autócrina (no próprio miócito), parácrina (nas células do estroma muscular e junção neuromuscular) e endócrina (em órgãos distantes), orquestrando adaptações energéticas profundas.
1.1 Irisina e o "Browning" do Tecido Adiposo Branco
Descoberta a partir da clivagem da proteína precursora transmembrana FNDC5 (induzida pelo coativador transcricional PGC-1α durante a contração), a Irisina circula até os depósitos de tecido adiposo branco visceral e subcutâneo. Ao ligar-se a receptores específicos nos adipócitos, a irisina desencadeia a expressão em larga escala da Proteína Desacopladora 1 (UCP1) na membrana mitocondrial interna.
Esse fenômeno, denominado browning (amarronzamento), converte adipócitos acumuladores de energia em adipócitos metabolicamente ativos com fenótipo bege/marrom. A UCP1 dissipa o gradiente de prótons mitocondrial antes da síntese de ATP, gerando calor (termogênese sem calafrio) e acelerando de forma substancial a taxa energética basal, o consumo de oxigênio e a depuração de triglicerídeos circulantes.
1.2 Interleucina-6 (IL-6) Miocítica: O Paradoxo Anti-Inflamatório
A IL-6 é rotineiramente rotulada como uma citocina pró-inflamatória quando secretada cronicamente por macrófagos M1 residentes no tecido adiposo inflamado. Todavia, a IL-6 miocítica (secretada pelo músculo durante a contração vigorosa) desempenha um papel biológico diametralmente oposto:
- Sua liberação ocorre sem a ativação prévia do fator de transcrição NF-κB e sem a elevação de citocinas inflamatórias clássicas como TNF-α e IL-1β.
- No sangue periférico, a IL-6 muscular atua induzindo a secreção de potentes fatores anti-inflamatórios circulantes, como a interleucina-10 (IL-10) e o antagonista do receptor de interleucina-1 (IL-1Ra).
- No fígado, a IL-6 miocítica estimula a glicogenólise controlada para manter a euglicemia durante a atividade física, enquanto no tecido adiposo eleva de forma potente a lipólise sistêmica via lipase sensível a hormônio (HSL), ofertando ácidos graxos livres como combustível para o próprio músculo.
1.3 Outras Miocinas Críticas: Miostatina, Decorina e BDNF
- Miostatina: Fator de diferenciação de crescimento 8 (GDF-8) que atua como regulador negativo da hipertrofia. O treinamento de força crônico suprime a expressão da miostatina e eleva seus inibidores naturais (como a folistatina), destravando a regeneração celular.
- Decorina: Miocina secretada após sobrecarga resistida que antagoniza diretamente a miostatina e estimula a proliferação de células-satélite musculares.
- BDNF (Fator Neurotrófico Derivado do sistema nervoso central): Embora sintetizado no sistema nervoso central, o estímulo muscular periférico induz a elevação plasmática de BDNF, potencializando a neuroplasticidade hipocampal, a neurogênese e a proteção contra o declínio cognitivo associado ao envelhecimento.
2. depuração de monossacarídeos Não-Insulinodependente: O Desvio Metabólico da Contração
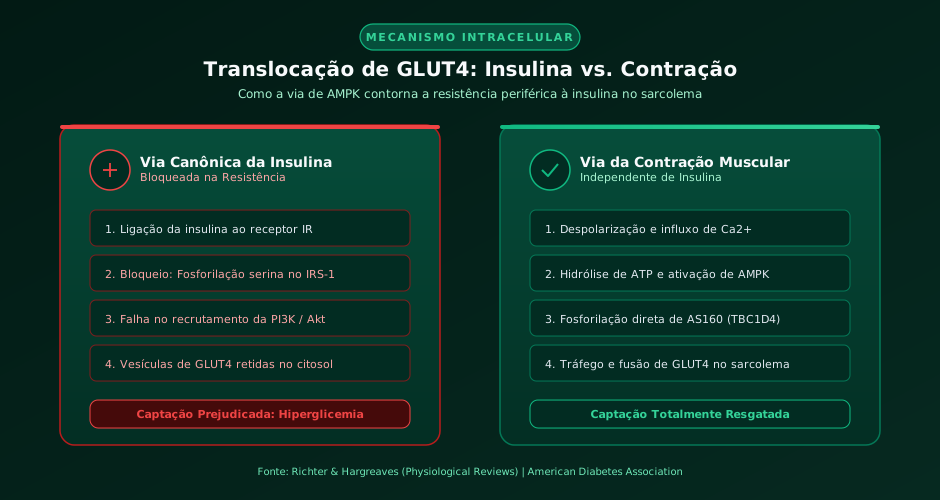
Em indivíduos metabolicamente comprometidos, a via canônica de sinalização da hormônio de estocagem sofre bloqueio proximal severo: a ligação da hormônio de estocagem ao seu receptor de tirosina quinase falha em recrutar e fosforilar adequadamente o substrato 1 do receptor de hormônio de estocagem (IRS-1), que sofre inativação por fosforilação em serina por ação do estresse oxidativo, diacilgliceróis (DAG) e ceramidas intramiocelulares. Como consequência, a via PI3K/Akt permanece inibida e as vesículas intracelulares contendo GLUT4 não migram para o sarcolema, gerando hiperglicemia e hiperinsulinemia compensatória crônica.
2.1 A Via de Sinalização da AMPK e Influxo de Cálcio (Ca²⁺)
A contração mecânica contorna integralmente esse defeito através de uma cascata bioquímica paralela e absolutamente autônoma:
- Despolarização da Membrana e Cálcio: A transmissão do potencial de ação ao longo dos túbulos T abre receptores de di-hidropiridina e rianodina, liberando grandes quantidades de cálcio (Ca²⁺) do retículo sarcoplasmático para o citoplasma. Esse influxo de cálcio ativa a proteína quinase dependente de cálcio/calmodulina (CaMKII).
- Razão AMP/ATP e Ativação da AMPK: A hidrólise acelerada de trifosfato de adenosina (ATP) pela miosina ATPase e pelas bombas de cálcio SERCA eleva a razão intracelular [AMP]/[ATP] e [ADP]/[ATP]. O monofosfato de adenosina liga-se às subunidades gama da Proteína Quinase Ativada por AMP (AMPK), expondo o resíduo Treonina-172 para fosforilação pela quinase LKB1.
- Convergência no Substrato AS160: Tanto a CaMKII quanto a AMPK ativada fosforilam diretamente a proteína ativadora de GTPase denominada AS160 (TBC1D4) em resíduos catalíticos específicos.
- Desrepressão das Proteínas Rab e Fusão de GLUT4: A fosforilação inativa o domínio GAP da AS160, permitindo que as pequenas proteínas G da família Rab (Rab8A e Rab14) permaneçam carregadas com GTP ativo. Esse estado ligado ao GTP desancora as vesículas de armazenamento intracelular de GLUT4 do citoesqueleto, promovendo seu tráfego e fusão direta com a membrana plasmática (sarcolema) e túbulos transversos.
Esse mecanismo permite que mesmo um paciente com grave resistência periférica à hormônio de estocagem capte substrato glicídico eficientemente durante e imediatamente após a realização de contrações musculares, mantendo o transporte de substrato elevado por até 24 a 48 horas no período de ressíntese de glicogênio.
3. Resistência Anabólica e Sarcopenia: A Mecânica da Síntese Proteica Muscular (MPS)
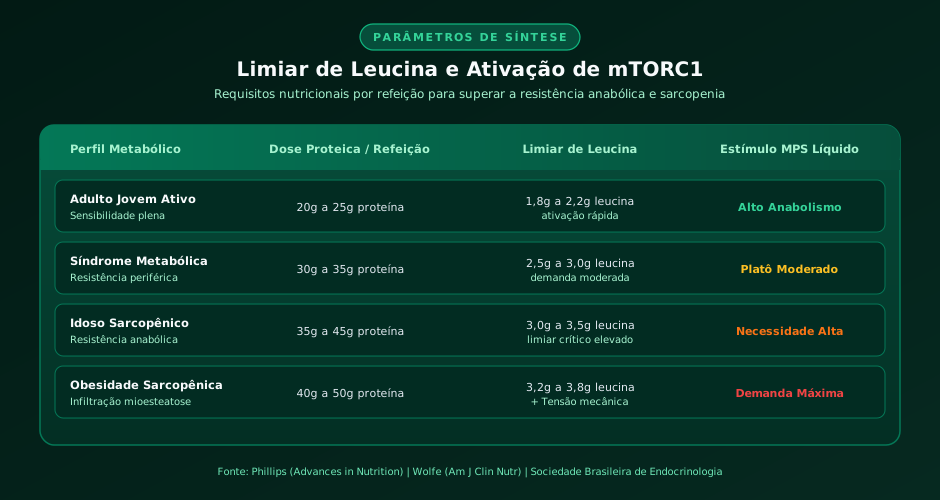
O envelhecimento biológico e o sedentarismo crônico são caracterizados pelo desenvolvimento da resistência anabólica: a perda progressiva da sensibilidade do miócito aos estímulos clássicos de construção tecidual (ingestão de aminoácidos plasmáticos e tensão mecânica). Enquanto um jovem saudável ativa a Síntese Proteica Muscular (MPS) com doses moderadas de proteína (≈15g a 20g), o adulto maduro ou portador de síndrome energética necessita de uma concentração intracelular significativamente maior de aminoácidos essenciais para alcançar o mesmo platô anabólico.
3.1 O "Gatilho de Leucina" (Leucine Trigger) e o Complexo mTORC1
O complexo molecular central que governa o anabolismo e a hipertrofia muscular é o mTORC1 (alvo mecânico da rapamicina em mamíferos, complexo 1). A sua ativação coordenada exige dois sinais simultâneos:
- Translocação para a Membrana Lisossomal: Regulada exclusivamente pela disponibilidade intracelular de aminoácidos essenciais, especialmente a L-Leucina. Sensores citoplasmáticos (como Sestrin2) detectam a elevação de leucina livre e liberam as GTPases Rag, permitindo que o mTORC1 migre para a periferia do lisossomo.
- Fosforilação pela GTPase Rheb: Desencadeada pelo estresse mecânico de contração muscular (via ácido fosfatídico) e sinalização hormonal. Uma vez ancorado no lisossomo junto ao Rheb ativado, o mTORC1 fosforila a quinase S6K1 e a proteína de ligação 4E-BP1, destravando a tradução de RNA mensageiro e a síntese de novas miofibrilas.
Para acionar esse interruptor bioquímico na presença de resistência anabólica, cada refeição proteica principal deve fornecer um mínimo de 2,7g a 3,5g de leucina pura (equivalente a cerca de 30g a 40g de proteínas de alto valor biológico ricas em aminoácidos de cadeia ramificada, como ovos, carnes magras, peixes ou isolado de soro de leite). Doses fragmentadas contínuas de 5g a 10g de proteína ao longo do dia são incapazes de transpor o limiar de ativação de Sestrin2/mTORC1, mantendo o organismo em balanço proteico líquido negativo.
4. Biogênese Mitocondrial, PGC-1α e Flexibilidade energética
A qualidade do tecido muscular não é determinada apenas pela área de secção transversa das fibras, mas pela sua densidade e integridade mitocondrial. O músculo esquelético metabolicamente flexível é capaz de alternar com facilidade entre a oxidação de ácidos graxos livres em repouso e a oxidação de carboidratos em intensidades mais elevadas de esforço.
4.1 O Papel Maestro do PGC-1α
O coativador transcricional PGC-1α (receptor ativado por proliferador de peroxissomo gama coativador 1-alfa) atua como o principal condutor da biogênese mitocondrial no músculo:
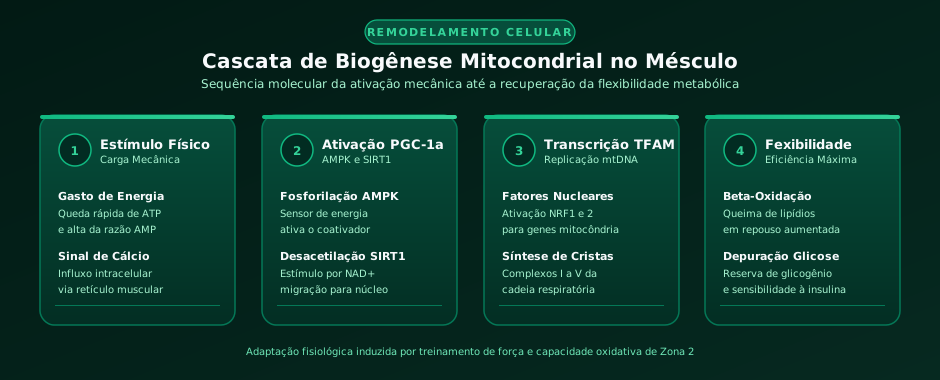
- Durante a contração, o consumo energético ativa a AMPK e a p38 MAPK, que fosforilam o PGC-1α. Concomitantemente, a elevação da razão NAD⁺/NADH estimula a desacetilase dependente de NAD⁺ SIRT1, que desacetila o PGC-1α, promovendo sua ativação plena.
- O PGC-1α transloca-se para o núcleo celular, onde coativa fatores nucleares respiratórios (NRF-1 e NRF-2) e o fator de transcrição mitocondrial A (TFAM).
- Esse complexo estimula a replicação do DNA mitocondrial (mtDNA) e a síntese coordenada de novas subunidades da cadeia de transporte de elétrons (complexos I a V).
O resultado clínico desse remodelamento é o aumento na densidade de cristas mitocondriais, a aceleração da oxidação mitocondrial de lipídios de ácidos graxos (prevenindo o acúmulo ectópico de lipídios intramiocelulares lipotóxicos) e a redução acentuada da fadiga celular periférica.
5. Prescrições Práticas e Crononutrição do Tecido Muscular
Para transformar os conceitos fisiológicos em resultados metabólicos tangíveis, a estruturação da rotina diária deve respeitar a fisiologia celular:
- Combinação de Estímulos Mecânicos (Força e Capacidade Aeróbica): O treinamento de força tradicional com sobrecarga progressiva é insubstituível para o recrutamento de fibras do tipo II (glicolíticas rápidas), sinalização de mTORC1 e supressão de miostatina. Paralelamente, o treinamento de resistência contínua de baixa/moderada intensidade (Zona 2) estimula a maior expressão de PGC-1α e densidade mitocondrial nas fibras do tipo I.
- Pulsatilidade Proteica em Vez de Alimentação Contínua: Recomenda-se a divisão do aporte proteico diário (1,6g a 2,2g de proteína por quilograma de peso corporal) em 3 a 4 refeições estruturadas, espaçadas por 3 a 5 horas. Cada refeição deve atingir o limiar de 2,7g a 3,2g de leucina para desencadear um pulso pleno de síntese proteica, seguido por um período de retorno à linha de base para evitar o efeito de acomodação refratária de mTORC1.
- Distribuição Pós-Esforço: O período imediatamente posterior à contração muscular caracteriza-se por elevada sensibilidade à captação de aminoácidos e substrato glicídico mediada por fluxo sanguíneo hiperêmico e permeabilidade sarcolemal aumentada. A ingestão combinada de proteínas ricas em leucina com fontes densas de micronutrientes acelera a ressíntese miofibrilar e a reposição de glicogênio.
6. Perguntas Frequentes (FAQ Metabólico)
1. Quem tem refratariedade periférica aos hormônios reguladores pode aumentar a depuração de monossacarídeos apenas caminhando?
Sim. A caminhada rítmica, mesmo em ritmo leve a moderado, promove contrações musculares repetidas nos membros inferiores. Esse estímulo gera influxo contínuo de cálcio intracelular e ativação da AMPK nas fibras musculares, forçando a migração de vesículas de GLUT4 para o sarcolema independentemente da hormônio de estocagem, reduzindo picos glicêmicos pós-prandiais de forma imediata.
2. É possível reverter a resistência anabólica em idosos apenas aumentando o consumo de proteínas?
Não de forma isolada. Aumentar o consumo de proteínas ajuda a atingir o limiar de leucina, mas sem a presença de tensão mecânica (treinamento resistido com sobrecarga), a sinalização intracelular de mecanotransdução permanece dormente. A combinação de sobrecarga mecânica com oferta adequada de aminoácidos essenciais é o único protocolo comprovado para restaurar a sensibilidade anabólica tecidual.
3. A suplementação isolada de leucina ou BCAA substitui uma refeição de proteína completa?
Não. A leucina funciona como o "interruptor" molecular que liga o complexo mTORC1, mas a construção e reparação efetiva de novos sarcômeros requer a presença de todos os 9 aminoácidos essenciais como blocos de construção. O uso isolado de leucina ou BCAA sem os demais aminoácidos essenciais não sustenta a síntese proteica muscular prolongada.
4. Como a perda de massa muscular (sarcopenia) afeta a taxa energética basal?
O músculo esquelético é responsável por cerca de 20% a 25% do gasto energético diário em repouso de um indivíduo comum, além de ser o principal destino do excesso calórico na forma de substrato glicídico e ácidos graxos. A perda de massa muscular reduz a taxa energética basal, diminui a capacidade de oxidação de gorduras e reduz o volume do reservatório de captação de carboidratos, precipitando um ciclo vicioso de ganho de gordura visceral e insensibilidade periférica aos hormônios.
7. Referências Bibliográficas e Evidências Clínicas
- Pedersen, B. K.; Febbraio, M. A. Muscles, exercise and obesity: skeletal muscle as a secretory organ. Nature Reviews Endocrinology, v. 8, n. 8, p. 457-465, 2012.
- Boström, P. et al. A PGC1-α-dependent myokine that drives brown-fat-like development of white fat and thermogenesis. Nature, v. 481, n. 7382, p. 463-468, 2012.
- Richter, E. A.; Hargreaves, M. Exercise, GLUT4, and skeletal muscle glucose uptake. Physiological Reviews, v. 93, n. 3, p. 993-1017, 2013.
- Phillips, S. M. Nutritional supplements in support of resistance exercise to counter age-related sarcopenia. Advances in Nutrition, v. 6, n. 4, p. 452-460, 2015.
- Wolfe, R. R. The underappreciated role of muscle in health and disease. The American Journal of Clinical Nutrition, v. 84, n. 3, p. 475-482, 2006.
Carregando comentários…