Metabolismo do Lactato e o Lactate Shuttle Celular: De Subproduto a Combustível Mitocondrial, Transportadores MCT1/MCT4 e Sinalização Epigenética por Lactilação
Neste artigo
- 1. A Desconstrução do Dogma: Por Que o Lactato Não É o Vilão da Acidose
- 2. A Teoria do Lactate Shuttle de George Brooks
- 3. Cinética dos Transportadores de Monocarboxilato: MCT1 vs. MCT4
- 4. Lactato como Molécula Sinalizadora e a Descoberta da Lactilação de Histonas
- 5. Aplicações Práticas: Otimizando o Clearance e o Uso Metabólico do Lactato
- Perguntas Frequentes (FAQ)
- Referências Bibliográficas
Por mais de meio século, o lactato foi erroneamente estigmatizado na fisiologia e na medicina do esporte como um mero resíduo metabólico tóxico, o principal causador da acidose láctica e o responsável direto pela fadiga muscular e pela dor tardia pós-exercício. Esse dogma clássico, amplamente disseminado nos currículos acadêmicos desde a década de 1930 com base nos experimentos pioneiros de Archibald Hill e Otto Meyerhof, postulava que a produção de lactato ocorreria exclusivamente em condições de hipóxia celular tecidual severa.
Entretanto, as investigações contemporâneas em biologia molecular e bioenergética demonstraram de forma cabal que essa visão é fisiologicamente incorreta. Sob a liderança teórica seminal do fisiologista George Brooks e os avanços na metabolômica moderna, o lactato é hoje reconhecido como uma das moléculas mais dinâmicas, nobres e multifuncionais do organismo humano. Ele atua simultaneamente como o principal intermediário de troca de carbono entre tecidos glicolíticos e oxidativos, o combustível oxidativo mitocondrial preferencial para órgãos nobres como o coração e o cérebro, e um potente modulador epigenético capaz de reescrever programas de transcrição gênica por meio da lactilação de histonas.
Neste artigo abrangente, desvendamos as engrenagens bioquímicas do Lactate Shuttle (intracelular e intercelular), o papel dos transportadores de monocarboxilato (MCTs), a reversibilidade do complexo da lactato desidrogenase e as implicações terapêuticas da modulação do lactato na sensibilidade à insulina, na longevidade e na plasticidade metabólica.
1. A Desconstrução do Dogma: Por Que o Lactato Não É o Vilão da Acidose
A equação estequiométrica da glicólise anaeróbia frequentemente induz ao erro de sugerir que a dissociação do ácido láctico é a fonte primária de prótons de hidrogênio livres ($H+$) que provocam a queda do pH intracelular.
Na realidade bioquímica detalhada:
- A Produção Celular Gera Lactato, Não Ácido Láctico: No pH fisiológico celular (aproximadamente 7,0 a 7,2), a molécula de lactato encontra-se quase 100% dissociada em sua forma de ânion lactato, visto que o seu $pKa$ é de aproximadamente 3,86.
- A Reação da Lactato Desidrogenase Consome Prótons: A conversão de piruvato em lactato, catalisada pela enzima lactato desidrogenase (LDH), consome um próton livre da matriz citoplasmática:
Portanto, a produção de lactato funciona, na verdade, como um tampão biológico transitório (buffer), retardando a acidose celular em vez de agravá-la. A acidose real observada durante esforços metabólicos de alta intensidade resulta da hidrólise descompassada do trifosfato de adenosina (ATP) pela miosina ATPase e bombas de cálcio, na qual a liberação massiva de prótons supera a capacidade mitocondrial de tamponamento e captação respiratória.
Além disso, a regeneração contínua de $NAD+$ pela reação da LDH é uma condição sine qua non para que a enzima gliceraldeído-3-fosfato desidrogenase (GAPDH) continue operando, sustentando a produção continuada de ATP citoplasmático quando as demandas energéticas superam a taxa máxima de fosforilação oxidativa.
2. A Teoria do Lactate Shuttle de George Brooks
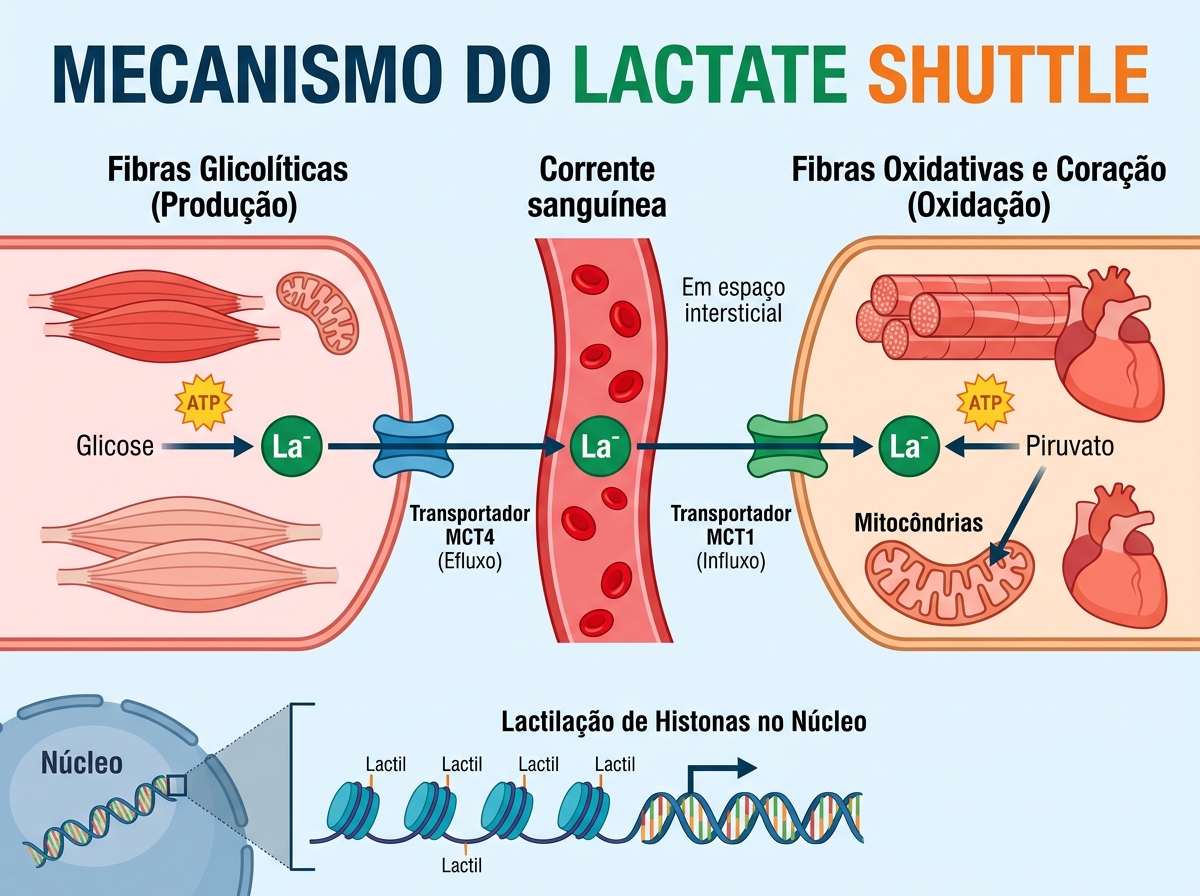
Formulada na década de 1980 e continuamente validada por estudos com traçadores isotópicos de carbono (13C), a hipótese do Lactate Shuttle estabelece que o lactato não permanece confinado na célula que o sintetizou, mas atua como um sistema circulatório coordenado de transporte de energia e sinais metabólicos.
O conceito desdobra-se em duas vertentes complementares:
O Cell-Cell Lactate Shuttle (Intercelular)
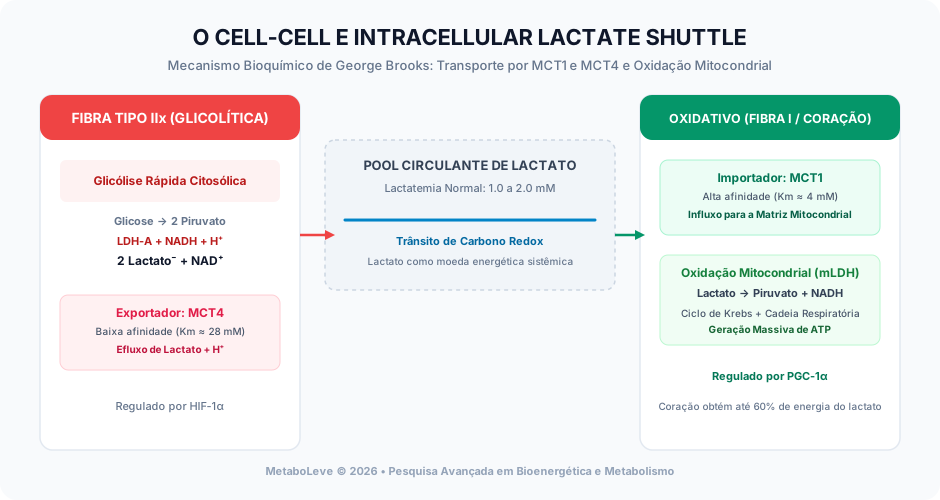
O lactato produzido em células predominantemente glicolíticas (como as fibras musculares esqueléticas de contração rápida Tipo IIx, que possuem alta taxa de glicólise e densidade mitocondrial relativamente baixa) é exportado para o interstício e para o leito vascular. A partir da circulação sistêmica, esse lactato é rapidamente captado e oxidado por tecidos altamente aeróbicos:
- Fibras Musculares Tipo I (Oxidativas): Apresentam alta densidade de cristas mitocondriais e captam o lactato circulante para convertê-lo prontamente em piruvato e acetil-CoA, poupando estoques intracelulares de glicogênio.
- Miocárdio: Durante o repouso e, mais marcadamente, sob estresse hemodinâmico ou exercício físico, o lactato fornece entre 40% e 60% de todo o substrato energético oxidativo consumido pelo coração humano, superando a taxa de oxidação de ácidos graxos livres.
- Astrócitos e Neurônios (Astrocyte-Neuron Lactate Shuttle - ANLS): No córtex cerebral, os astrócitos metabolizam glicose captada do sangue periférico, convertem-na em lactato e transferem-na aos neurônios pós-sinápticos via transportadores específicos, assegurando a plasticidade sináptica e a consolidação da memória.
O Intracellular Lactate Shuttle (Intracelular)
Historicamente, acreditava-se que o piruvato derivado da glicólise citosólica entrava diretamente na mitocôndria pelo transportador de piruvato mitocondrial (MPC). Brooks e colaboradores demonstraram que frações substanciais de lactato citosólico ingressam no espaço intermembranas e na própria matriz mitocondrial.
Na mitocôndria existe uma isoforma mitocondrial da lactato desidrogenase (mLDH) acoplada à cadeia transportadora de elétrons. O lactato é oxidado a piruvato diretamente no ambiente mitocondrial, gerando NADH local que alimenta o Complexo I da respiração celular, estabelecendo um ciclo bioenergético ultracompacto que minimiza as perdas por difusão citosólica.
3. Cinética dos Transportadores de Monocarboxilato: MCT1 vs. MCT4
O trânsito transmembrana de lactato e prótons ocorre obrigatoriamente por meio de carreadores proteicos especializados pertencentes à família SLC16A: os Transportadores de Monocarboxilato (MCTs). O influxo e o efluxo ocorrem por mecanismo de simporte equimolar ($1 lactato- : 1 H+$), dependente de chaperonas de ancoragem como a basigina (CD147) e a embigina.
As propriedades fisiológicas dos dois principais subtipos estão detalhadas a seguir:
| Parâmetro Cinético e Molecular | MCT1 (SLC16A1) | MCT4 (SLC16A3) |
|---|---|---|
| Afinidade pelo Lactato ($Km$) | Alta ($Km ≈ 3,5 a 5,0 mM$) | Baixa ($Km ≈ 25 a 30 mM$) |
| Função Metabólica Primária | Influxo e captação de lactato para oxidação | Efluxo e exportação de lactato citosólico |
| Localização Tecidual Predominante | Miocárdio, fibras Tipo I, neurônios, rins | Fibras musculares Tipo IIx, macrófagos, tumores |
| Regulação Transcricional Chave | PGC-1$α$, PPAR$δ$, estímulo oxidativo | HIF-1$α$ (induzido por hipóxia e estresse glicolítico) |
| Papel na Homeostase | Combustível celular e sinalização metabólica | Alívio da sobrecarga ácida e glicolítica celular |
A expressão coordenada de MCT1 e MCT4 representa o termostato de plasticidade metabólica do corpo humano. O treinamento físico crônico de resistência e intervenções nutricionais estratégicas promovem uma robusta up-regulation de MCT1 nas mitocôndrias e no sarcolema, ampliando exponencialmente a capacidade de depuração (clearance) e consumo do lactato gerado.
4. Lactato como Molécula Sinalizadora e a Descoberta da Lactilação de Histonas
A virada de paradigma mais contundente no estudo do lactato emergiu em 2019 com a publicação liderada pelo laboratório do Dr. Yingming Zhao na Universidade de Chicago, identificando uma modificação pós-traducional de histonas mediada pelo lactato: a lactilação de lisina ($Kla$).
O Mecanismo da Lactilação Epigenética
Quando os níveis intracelulares de lactato se elevam — seja por intensificação da atividade glicolítica, exercício ou ativação imune —, o lactato é ativado a lactil-CoA. Enzimas acetiltransferases (como p300/CBP) utilizam o lactil-CoA para transferir covalentemente grupos lactil para resíduos específicos de lisina nas caudas amino-terminais das histonas (notadamente H3K18la e H4K12la).
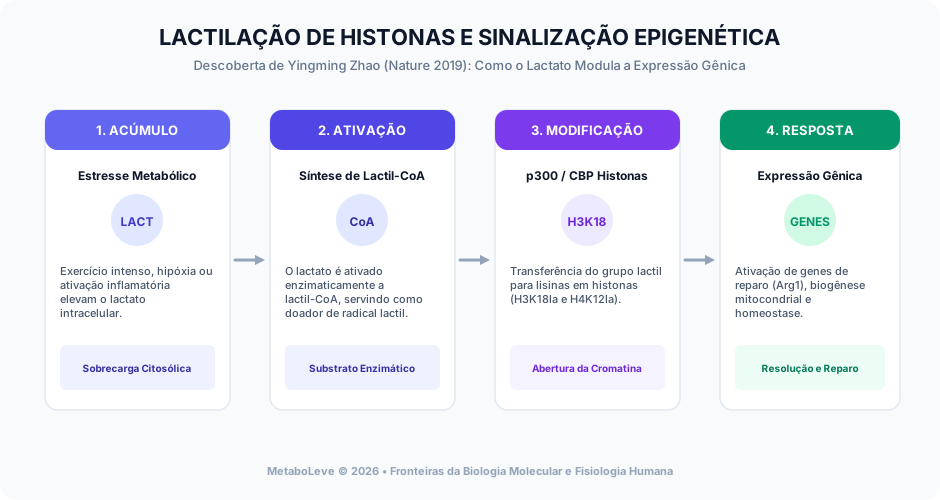
Essa modificação epigenética relaxa a conformação da cromatina e ativa promotores gênicos específicos:
- Reprogramação de Macrófagos (M1 para M2): Durante infecções bacterianas ou inflamação aguda, os macrófagos adotam um perfil glicolítico pró-inflamatório (fenótipo M1) que produz elevadas concentrações de lactato. O acúmulo desse lactato endógeno induz a lactilação da histona H3K18 nos promotores de genes anti-inflamatórios e reparadores de tecido (como a arginase-1, Arg1), orquestrando a transição fisiológica do macrófago para o fenótipo resolutivo e cicatricial M2.
- Mitocôndria e Adaptação Muscular: A lactilação induzida pelo exercício estimula a transcrição de fatores de transcrição mitocondriais, como NRF-1 e TFAM, participando ativamente do ciclo de biogênese mitocondrial mediado por PGC-1$α$.
- Imunologia Tumoral e Efeito Warburg: No microambiente tumoral, a hiperlactatemia severa promove a imunossupressão através da lactilação de linfócitos T citotóxicos e células dendríticas, exaurindo a resposta imune antineoplásica. O bloqueio farmacológico direcionado de MCT1 e MCT4 tornou-se, assim, uma fronteira quente no desenvolvimento de novos fármacos oncológicos.
5. Aplicações Práticas: Otimizando o Clearance e o Uso Metabólico do Lactato
A compreensão da bioquímica do lactato abre avenidas terapêuticas e de estilo de vida para otimizar o rendimento bioenergético e a saúde cardiometabólica:
- Estímulo da Zona 2 de Treinamento: Sessões de exercício contínuo de intensidade moderada (frequência cardíaca abaixo do primeiro limiar de lactato, LT1, onde a lactatemia sérica oscila entre 1,5 e 2,0 mM) estimulam prioritariamente o recrutamento de fibras Tipo I e promovem a hipertrofia e eficiência das cristas mitocondriais. Isso maximiza a densidade de transportadores MCT1 e a capacidade de consumir lactato como combustível antes que ele escape para o sangue.
- Sensibilidade à Insulina e Glicemia: Ao atuar como um substrato oxidativo preferencial, o lactato compete favoravelmente com a glicose e com os ácidos graxos livres. Pacientes com disfunção metabólica e diabetes tipo 2 exibem deficiência pronunciada na captação mitocondrial de lactato. Restaurar a densidade de transportadores MCT1 via estímulos mecânicos é um dos mecanismos mais potentes para reduzir a esteatose hepática e restaurar a tolerância sistêmica à glicose.
Perguntas Frequentes (FAQ)
O lactato é o responsável pelas dores musculares que surgem 24 a 48 horas após o treino?
Não. As dores musculares de início tardio (DMIT) são causadas por microrrupturas ultraestruturais nas pontes de actina e miosina dos sarcômeros e pela resposta inflamatória tecidual consequente decorrente de ações mecânicas excêntricas. O lactato retorna integralmente aos níveis basais de repouso entre 30 e 60 minutos após o término do esforço, sendo completamente oxidado ou reconvertido em glicogênio via Ciclo de Cori.
É possível medir o limiar de lactato sem exames laboratoriais invasivos de sangue?
A dosagem precisa por punção capilar (fitas reagentes de lactatemia) ainda é o padrão-ouro de campo. Contudo, aproximações robustas e não invasivas são obtidas por ergoespirometria respiratória (identificação dos pontos de quebra do equivalente ventilatório de $O2$ e $CO2$) e por sensores ópticos de espectroscopia no infravermelho próximo (NIRS) aplicados sobre a musculatura esquelética.
Pacientes com resistência à insulina produzem mais ou menos lactato?
Indivíduos portadores de síndrome metabólica e resistência insulínica frequentemente apresentam níveis de lactato basal ligeiramente elevados e menor taxa de clearance mitocondrial durante o estresse físico. Essa disfunção não decorre de maior capacidade de síntese, mas sim da inflexibilidade metabólica e do comprometimento da densidade mitocondrial e da abundância de carreadores MCT1 nos tecidos periféricos.
O lactato pode beneficiar o cérebro em situações de declínio cognitivo?
Sim. Em modelos de isquemia cerebral transitória e no envelhecimento fisiológico, o lactato demonstrou exercer papel neuroprotetor pronunciado. Ao transitar pelo Astrocyte-Neuron Lactate Shuttle, ele supre as demandas energéticas dos neurônios quando o transporte de glicose via transportador GLUT3 está prejudicado, além de estimular a liberação de fator neurotrófico derivado do cérebro (BDNF).
Referências Bibliográficas
- BROOKS, George A. The Science and Translation of Lactate Shuttle Theory. Cell Metabolism, v. 27, n. 4, p. 757-785, 2018.
- ZHANG, Di; TANG, Zhanyun; HUANG, He; et al. Metabolic regulation of gene expression by histone lactylation. Nature, v. 574, n. 7779, p. 575-580, 2019.
- HALESTRAP, Andrew P. The monocarboxylate transporter family - Structure and functional characterization. IUBMB Life, v. 64, n. 1, p. 1-9, 2012.
- ROBERGS, Robert A.; GHIASVAND, Farzenah; PARKER, Daryl. Biochemistry of exercise-induced metabolic acidosis. American Journal of Physiology-Regulatory, Integrative and Comparative Physiology, v. 287, n. 3, p. R$ 502-R$ 516, 2004.
- GLADDEN, L. Bruce. Lactate metabolism: a new paradigm for the third millennium. The Journal of Physiology, v. 558, n. 1, p. 5-30, 2004.
Carregando comentários…