Flexibilidade Metabólica e Ciclagem de Carboidratos: A Bioquímica da Transição entre Glicose e Ácidos Graxos
Neste artigo
- 1. O Quociente Respiratório (RER) e a Bioenergética Celular
- 2. O Ciclo de Randle e a Competição por Substratos
- 3. Vias de Sinalização Celular: O Eixo AMPK vs. mTOR
- 4. Dinâmica da Insulina e Translocação do Transportador GLUT4
- 5. Ciclagem de Carboidratos: Estrutura Bioquímica e Aplicação Prática
- 6. Tabelas Comparativas e Matriz Nutricional
- 7. Biomarcadores Laboratoriais para Avaliação Clínica da Flexibilidade
- 8. Perguntas Frequentes (FAQ)
- Referências Bibliográficas e Literatura Científica
A capacidade de alternar com eficiência a oxidação de substratos energéticos — transitando sem atritos entre a queima de glicose e a oxidação de ácidos graxos livres em resposta à disponibilidade nutricional e à demanda celular — é a definição fisiológica fundamental de Flexibilidade Metabólica.
Descrita inicialmente de forma sistemática por Kelley e Mandarino no início dos anos 2000, a flexibilidade metabólica representa o padrão-ouro da saúde celular. Em contrapartida, a inflexibilidade metabólica — caracterizada pela incapacidade mitocondrial de oxidar gorduras no estado de jejum e de translocar transportadores de glicose no estado pós-prandial — é hoje reconhecida como a base fisiopatológica da resistência à insulina, da síndrome metabólica e do diabetes mellitus tipo 2.
Dentre as estratégias nutricionais estruturadas para restaurar e aprimorar essa alternância bioenergética, a ciclagem de carboidratos (carb cycling) destaca-se como uma ferramenta de alta precisão clínica.
Neste artigo aprofundado, dissecamos as cascatas moleculares que coordenam a seleção de combustíveis celulares, a regulação enzimática da beta-oxidação, o antagonismo entre as vias AMPK e mTOR, e a aplicação prática da periodização de carboidratos baseada em evidências.
1. O Quociente Respiratório (RER) e a Bioenergética Celular
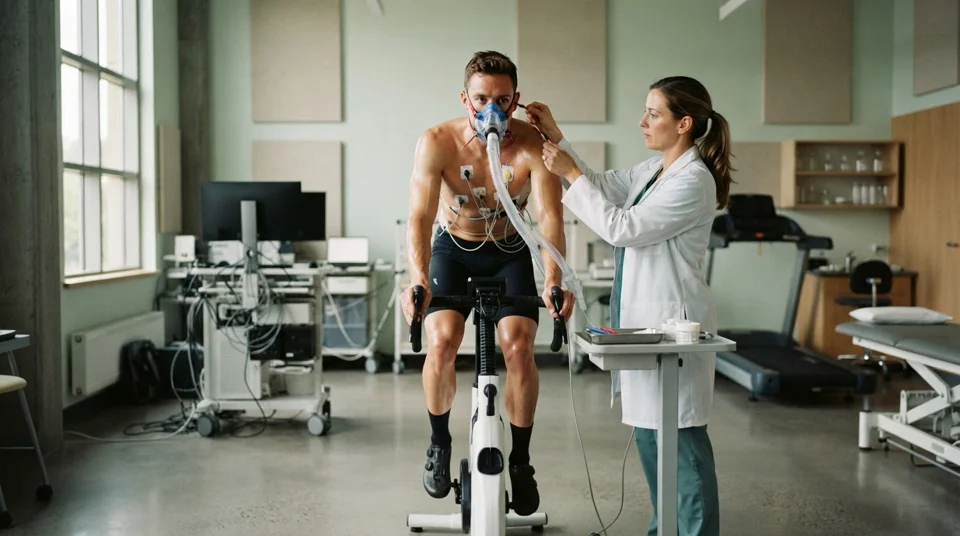
A mensuração da seleção de combustíveis pelo organismo humano é avaliada clinicamente por meio da calorimetria indireta, expressa pelo Quociente Respiratório ou Taxa de Troca Respiratória (Respiratory Exchange Ratio — RER):
Devido às diferenças na composição química e estequiometria de oxidação dos macronutrientes:
- Oxidação Exclusiva de Ácidos Graxos (Palmitato):
C*{16}H*{32}O2 + 23O2 → 16CO2 + 16H2O ⟹ RER = (16)/(23) ≈ {0,70}
- Oxidação Exclusiva de Carboidratos (Glicose):
C*6H*{12}O6 + 6O2 → 6CO2 + 6H2O ⟹ RER = (6)/(6) = {1,00}

Tabela de Interpretação Fisiológica do Quociente Respiratório (RER)
| Faixa de RER | Substrato Energético Predominante | Estado Fisiológico Típico | Comportamento Mitocondrial |
|---|---|---|---|
| 0,70 | 100% Ácidos Graxos (Gordura) | Jejum noturno / Repouso prolongado | Ativação máxima da CPT-1 e beta-oxidação acelerada |
| 0,80 a 0,85 | Misto (50% Lipídios / 50% Glicose) | Estado basal diurno / Transição pós-prandial | Equilíbrio homeostático entre vias oxidativas |
| 0,95 a 1,00 | 100% Glicose (Carboidratos) | Pós-prandial imediato / Exercício intenso | Alta atividade da Piruvato Desidrogenase (PDH); lipólise suprimida |
O Perfil de Flexibilidade vs. Inflexibilidade Metabólica
- Indivíduo Metabolicamente Flexível: Em jejum noturno, apresenta RER próximo a 0,72–0,75 (alta oxidação lipídica basal). Após uma refeição rica em carboidratos com elevação da insulina, o RER eleva-se rapidamente para 0,95–1,00, suprimindo a lipólise e priorizando a captação e oxidação glicolítica.
- Indivíduo Inflexível: Apresenta RER “travado” em faixas intermediárias (ao redor de 0,83–0,88) tanto em jejum quanto após a alimentação. Em jejum, o músculo esquelético falha em queimar ácidos graxos adequadamente; no estado alimentado, a captação de glicose mediada por insulina encontra-se atenuada, gerando hiperglicemia e estresse mitocondrial.
2. O Ciclo de Randle e a Competição por Substratos
Em 1963, Philip Randle descreveu o Ciclo Glicose-Ácidos Graxos (Randle Cycle), mecanismo bioquímico pelo qual a oxidação de um combustível inibe diretamente a oxidação do outro no interior da célula.

Sequência Bioquímica de Inibição Recíproca (Ciclo de Randle)
| Etapa da Cascata | Evento Bioquímico Intracelular | Ação Enzimática | Consequência Fisiológica |
|---|---|---|---|
| 1. Sobrecarga Lipídica | Acúmulo de Acetil-CoA e NADH na matriz mitocondrial | Inibição alostérica da Piruvato Desidrogenase (PDH) | Bloqueia a conversão de piruvato em Acetil-CoA, poupando glicose |
| 2. Exportação de Citrato | Aumento da concentração citosólica de Citrato | Inibição direta da Fosfofrutoquinase-1 (PFK-1) | Interrompe o fluxo glicolítico antes da clivagem da frutose |
| 3. Bloqueio da Captação | Acúmulo intracelular de Glicose-6-Fosfato (G6P) | Inibição por retroalimentação da Hexoquinase | Reduz o influxo de novas moléculas de glicose para o miócito |
Em um organismo saudável, essa inibição recíproca é um mecanismo homeostático protetor. Contudo, em situações de sobrecarga crônica de nutrientes (excesso concomitante de carboidratos refinados e gorduras saturadas), o ciclo entra em colapso: a célula recebe fluxos concorrentes contínuos, gerando acúmulo de intermediários lipídicos reativos e desacoplamento mitocondrial.
3. Vias de Sinalização Celular: O Eixo AMPK vs. mTOR
A transição entre o modo de sobrevivência/queima de gordura e o modo de crescimento/anabolismo é governada por duas quinases centrais:

Matriz Comparativa: Via AMPK vs. Via mTORC1
| Parâmetro de Comparação | Via AMPK (Sensor de Escassez Energética) | Via mTORC1 (Sensor de Abundância Nutricional) |
|---|---|---|
| Gatilho Molecular Principal | Relação AMP/ATP e ADP/ATP elevada (Déficit, jejum, esforço) | Concentrações elevadas de Insulina + Aminoácidos (Leucina) |
| Regulação da Beta-Oxidação | Ativação Máxima: Fosforila e inativa a ACC, destravando a CPT-1 | Inibição: Estimula lipogênese e armazenamento lipídico |
| Adaptação Estrutural Muscular | Estimula biogênese mitocondrial via ativação de PGC-1α | Estimula a tradução ribossômica e hipertrofia miofibrilar |
| Manutenção e Limpeza Celular | Promove autofagia e reciclagem de organelas disfuncionais | Suprime a autofagia em favor do crescimento tecidual |
| Captação de Glicose | Promove translocação de GLUT4 independente de insulina | Promove a síntese e armazenamento de glicogênio (glicogênese) |
1. AMPK (AMP-activated Protein Kinase) — O Sensor Energético
Ativada quando a relação intracelular AMP/ATP ou ADP/ATP aumenta (como em dias de restrição de carboidratos, jejum ou exercício extenuante):
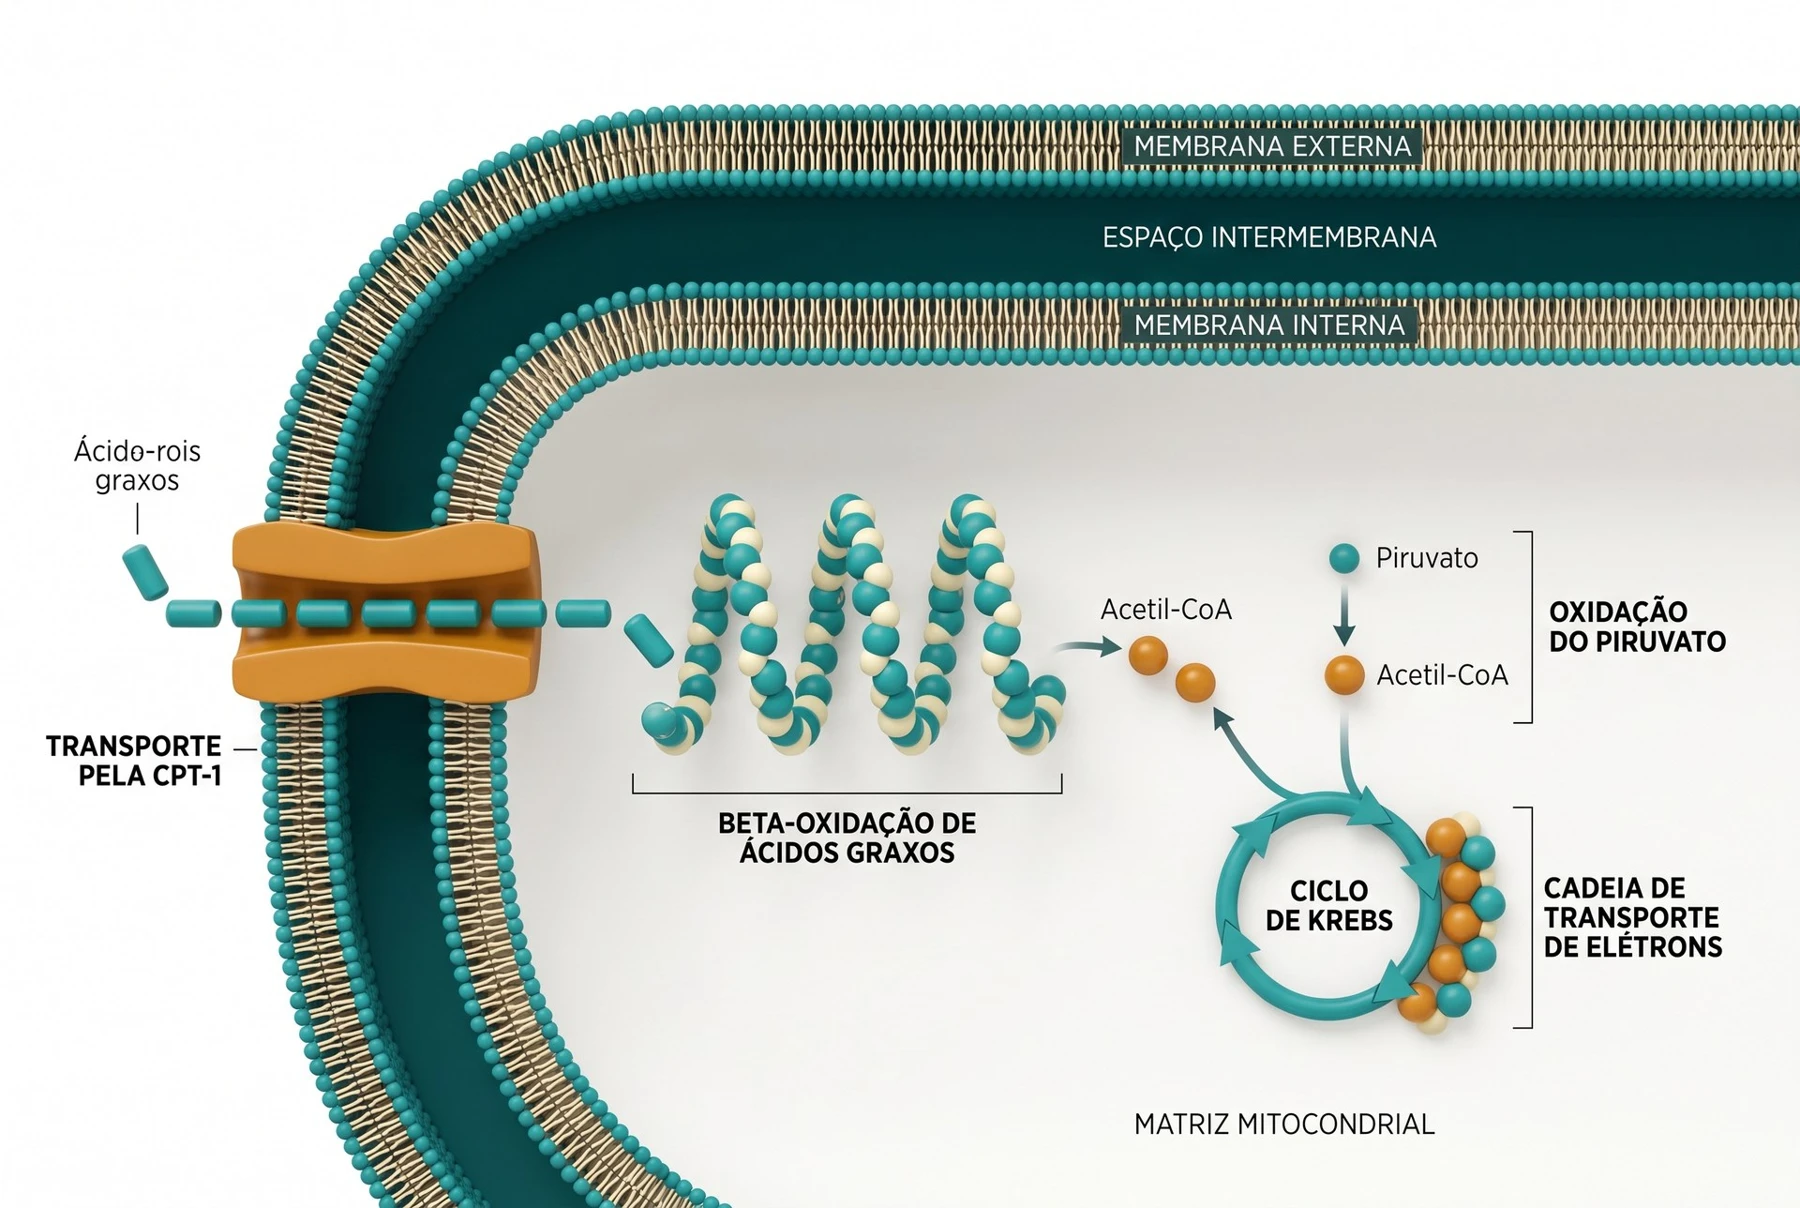
- Fosforila e Inativa a Acetil-CoA Carboxilase (ACC): Reduz drasticamente a concentração de Malonil-CoA no citosol.
- Desrepressão da CPT-1: Na ausência de Malonil-CoA, a enzima marcapasso Carnitina Palmitoiltransferase-1 (CPT-1) é destravada na membrana mitocondrial externa, permitindo a translocação dos ácidos graxos de cadeia longa (Acil-CoA) para a matriz mitocondrial, deflagrando a beta-oxidação.
- Ativação de PGC-1α: Estimula a transcrição gênica para a biogênese de novas mitocôndrias e translocação independente de insulina de vesículas de GLUT4.
2. mTOR (Mechanistic Target of Rapamycin) — O Eixo Anabólico
Ativada por altas concentrações de insulina, aminoácidos de cadeia ramificada (especialmente Leucina) e glicose abundante:
- Promove a tradução ribossômica e a síntese proteica miofibrilar.
- Estimula o armazenamento de energia na forma de glicogênio (glicogênese) e lipídios (lipogênese de novo).
- Suprime a autofagia e a oxidação lipídica mitocondrial.
4. Dinâmica da Insulina e Translocação do Transportador GLUT4
A captação de glicose no tecido muscular esquelético e no tecido adiposo depende criticamente da translocação do transportador GLUT4 da fração microssomal intracelular para a membrana plasmática:

O Papel dos Lipídios Intramiocelulares (IMCL) na Inflexibilidade
Em indivíduos com excesso de tecido adiposo visceral e sedentarismo, os ácidos graxos que não são oxidados acumulam-se no citosol muscular sob a forma de Diacilglicerol (DAG) e Ceramidas.
O acúmulo de DAG ativa isoformas da Proteína Quinase C (especialmente PKC-), que fosforila o receptor IRS-1 em resíduos de Serina/Treonina (em vez de Tirosina). Essa fosforilação anômala interrompe a cascata da PI3K/Akt, impedindo que o GLUT4 migre para a membrana mesmo sob concentrações elevadas de insulina circulante.
5. Ciclagem de Carboidratos: Estrutura Bioquímica e Aplicação Prática
A Ciclagem de Carboidratos organiza a ingestão calórica e de macronutrientes em ondas periódicas estratégicas, alternando intencionalmente os estados metabólicos dominados por AMPK e por mTOR/Insulina:

Cronograma Semanal de Periodização Nutricional e Treino
| Dia da Semana | Protocolo de Carboidrato | Tipo de Treino / Demanda | Sinalização Celular Dominante | Diretriz Nutricional Prática |
|---|---|---|---|---|
| Segunda-feira | High Carb (Alto) | Treino de Força Pesado (Grupamento Prioritário) | mTORC1 / $T_3$ / Leptina | Aporte elevado de carboidratos complexos; gordura reduzida (< 15%) |
| Terça-feira | Low Carb (Baixo) | Cardio Moderado / Treino Auxiliar / NEAT | AMPK / CPT-1 | Restrição de carboidratos; aumento de proteínas e gorduras saudáveis |
| Quarta-feira | Moderate Carb (Moderado) | Treino de Volume Médio | Homeostase / Equilíbrio | Aporte equilibrado para sustentar o rendimento sem excedente calórico |
| Quinta-feira | Low Carb (Baixo) | Descanso ou Recuperação Ativa | AMPK / CPT-1 | Depleção de glicogênio; maximização da oxidação lipídica basal |
| Sexta-feira | High Carb (Alto) | Treino de Força Pesado | mTORC1 / $T_3$ / Leptina | Supercompensação de glicogênio e restauração do eixo tireoidiano |
| Sábado | Low Carb (Baixo) | Cardio ao Ar Livre / Lazer Ativo | AMPK / CPT-1 | Estímulo prolongado à mobilização de ácidos graxos livres |
| Domingo | Moderate Carb (Moderado) | Descanso Total | Homeostase / Equilíbrio | Manutenção calórica e preparação para o novo ciclo semanal |
1. Dias de Alto Carboidrato (High-Carb Days)
- Finalidade Fisiológica: Ressíntese maciça de glicogênio muscular e hepático; restauração da sinalização hormonal tireoidiana e leptínica.
- Efeito no Eixo Tireoidiano: A restrição crônica de glicose diminui a atividade da enzima 5′-deiodinase hepática, reduzindo a conversão de Tiroxina ($T_4$) no hormônio metabolicamente ativo Triiodotironina ($T_3$). O pico de carboidratos restaura agudamente os níveis de $T_3$, evitando a queda adaptativa da Taxa Metabólica Basal.
- Pulsatilidade da Leptina: A leptina (hormônio da saciedade sintetizado pelos adipócitos) é altamente responsiva ao fluxo glicolítico e aos níveis agudos de insulina. O refeed de carboidratos sinaliza abundância energética ao hipotálamo, reduzindo o apetite e o estresse biológico.
2. Dias de Baixo Carboidrato (Low-Carb / Zero-Carb Days)
- Finalidade Fisiológica: Esvaziamento parcial dos estoques de glicogênio miocelular; ativação da sinalização de AMPK e máxima mobilização lipídica.
- Mecanismo: Com a insulina basal reduzida, a Lipase Hormônio-Sensível (LHS/HSL) e a Adipose Triglyceride Lipase (ATGL) no tecido adiposo são desinibidas, liberando ácidos graxos livres na corrente sanguínea.
- Estímulo à Densidade Mitocondrial: O treino executado sob baixa disponibilidade de glicogênio (Train Low) amplifica a fosforilação de p38 MAPK e PGC-1α, promovendo adaptações enzimáticas mitocondriais superiores.
3. Dias de Moderado Carboidrato (Moderate-Carb Days)
- Finalidade Fisiológica: Sustentação do volume de treino, reposição basal de glicose para o sistema nervoso central e manutenção do equilíbrio nitrogenado.
6. Tabelas Comparativas e Matriz Nutricional
Tabela 1: Parâmetros Fisiológicos e Metabólicos por Fase da Ciclagem
| Parâmetro Fisiológico | Dia de Alto Carboidrato (High) | Dia de Moderado Carboidrato (Mod) | Dia de Baixo Carboidrato (Low) |
|---|---|---|---|
| Via Enzimática Dominante | mTORC1 / Glicogênio Sintase | Equilíbrio Homeostático | AMPK / CPT-1 / Beta-Oxidação |
| Nível de Insulina Sérica | Elevado (Picos pós-prandiais) | Moderado / Estável | Basal / Suprimido |
| Quociente Respiratório (RER) | 0,95 a 1,00 (Oxidação Glicídica) | 0,82 a 0,86 (Misto) | 0,72 a 0,76 (Oxidação Lipídica) |
| Status do Glicogênio Muscular | Supercompensação / Plenitude | Manutenção Funcional | Depleção Progressiva |
| Taxa de Lipólise Adiposa | Fortemente Inibida | Moderada | Altamente Ativada (ATGL/LHS) |
| Impacto no Eixo $T_3$ e Leptina | Estímulo Positivo Máximo | Preservação Basal | Queda Temporária Transitória |
Tabela 2: Exemplo de Matriz de Distribuição Nutricional (Indivíduo de 75 kg)
Objetivo: Otimização de Composição Corporal e Sensibilidade à Insulina.
| Dia da Semana / Fase | Calorias Totais | Proteínas (g/kg) | Carboidratos (g/kg) | Gorduras Lipídicas (g/kg) |
|---|---|---|---|---|
| High Carb (2x/sem — Dias de Treino Intenso) | \~2.550 kcal | 2,0 g/kg (150 g) | 5,0 g/kg (375 g) | 0,5 g/kg (37 g) |
| Moderate Carb (2x/sem — Dias de Treino Médio) | \~2.100 kcal | 2,2 g/kg (165 g) | 3,0 g/kg (225 g) | 0,9 g/kg (67 g) |
| Low Carb (3x/sem — Treinos Leves / Descanso) | \~1.650 kcal | 2,4 g/kg (180 g) | 1,0 g/kg (75 g) | 1,2 g/kg (90 g) |
Nota Técnica: Nos dias de High Carb, a ingestão de gordura é propositalmente reduzida para menos de 15% do total calórico, evitando o efeito deletério do Ciclo de Randle (hiperinsulinemia concomitante a excesso de quilomícrons circulantes).
7. Biomarcadores Laboratoriais para Avaliação Clínica da Flexibilidade
Para diagnosticar com rigor a saúde mitocondrial e a plasticidade metabólica no consultório, utilizam-se os seguintes marcadores laboratoriais:
| Marcador Laboratorial | Faixa Ideal / Otimizada | Risco / Inflexibilidade Metabólica |
|---|---|---|
| HOMA-IR | < 1,5 | > 2,5 (Resistência Insulínica Periférica) |
| Relação Triglicerídeos/HDL | < 2,0 (Ideal < 1,5) | > 3,0 (Padrão Aterogênico e LDL denso) |
| Insulina de Jejum | 2,0 a 6,0 μUI/mL | > 10,0 μUI/mL (Hiperinsulinemia Basal) |
| Glicemia de Jejum | 72 a 88 mg/dL | > 100 mg/dL (Glicemia de Jejum Alterada) |
| Hemoglobina Glicada (HbA1c) | < 5,3% | > 5,7% (Faixa de Pré-Diabetes) |
1. Índice HOMA-IR (Homeostasis Model Assessment of Insulin Resistance)
Valores abaixo de 1,5 refletem alta sensibilidade periférica à insulina e facilidade de captação mediada por GLUT4.
2. Razão Triglicerídeos / HDL-Colesterol (TG/HDL)
A razão TG/HDL é um dos preditores clínicos mais acurados da presença de partículas de LDL pequenas e densas (pattern B), esteatose hepática não alcoólica e inflexibilidade mitocondrial. Razões superiores a 2,5 em mulheres ou 3,0 em homens correlacionam-se fortemente com disfunção na oxidação de ácidos graxos em jejum.
8. Perguntas Frequentes (FAQ)
1. A ciclagem de carboidratos causa catabolismo de massa muscular nos dias de baixo carboidrato?
Não, desde que o aporte de proteínas seja ajustado para cima (2,2g a 2,4g/kg) nos dias de baixo carboidrato e o déficit calórico semanal seja moderado. Os estoques de glicogênio acumulados nos dias de High Carb levam de 24 a 48 horas para serem depletados, fornecendo substrato suficiente para preservar o tecido miofibrilar durante o estímulo da via AMPK.
2. Qual a diferença bioquímica entre a dieta cetogênica estrita e a flexibilidade metabólica?
A dieta cetogênica crônica força o corpo a uma adaptação quase exclusiva à oxidação lipídica e cetogênese (RER \~0,70). Embora eficaz para controle glicêmico agudo, a privação prolongada de carboidratos pode causar resistência à insulina fisiológica adaptativa por inibição sustentada da enzima Piruvato Desidrogenase (PDH). A flexibilidade metabólica, por outro lado, busca a capacidade de queimar eficientemente tanto gordura quanto glicose, sem perder a aptidão para nenhuma das duas vias.
3. Por que é mandatório reduzir a gordura alimentar nos dias de alto carboidrato?
Quando os níveis de insulina estão no ápice devido à ingestão de carboidratos, a lipase lipoproteica tecidual e a lipogênese encontram-se altamente ativadas, enquanto a oxidação de gorduras via CPT-1 está bloqueada pelo excesso de Malonil-CoA. Consumir altas quantidades de gordura nesse momento favorece o armazenamento imediato de lipídios nos adipócitos e o acúmulo de intermediários tóxicos (DAG) no miócito.
4. Pacientes com resistência insulínica severa devem iniciar imediatamente com dias de High Carb?
Não. Em indivíduos com HOMA-IR muito elevado (> 3,5), as células musculares possuem acúmulo excessivo de ceramidas e baixa responsividade do GLUT4. Recomenda-se uma fase inicial de 2 a 6 semanas de restrição uniforme de carboidratos (Low-Carb moderado) e treinamento resistido para depletar lipídios intramiocelulares e restaurar a sensibilidade basal à insulina antes de introduzir dias de supercompensação glicídica.
5. O exercício físico potencializa a translocação de GLUT4 sem depender de insulina?
Sim. A contração muscular estimula a quinase CaMKII (dependente de Cálcio) e ativa a AMPK de forma totalmente independente da via da insulina. Isso significa que mesmo um músculo resistente à insulina consegue captar glicose eficientemente durante e imediatamente após o esforço físico intenso.
Referências Bibliográficas e Literatura Científica
- KELLEY, David E.; MANDARINO, Lawrence J. Fuel selection in human skeletal muscle in insulin resistance: a reexamination. Diabetes, v. 49, n. 5, p. 677-683, 2000. DOI: 10.2337/diabetes.49.5.677.
- GOODPASTER, Bret H.; SPARKS, Lauren M. Metabolic Flexibility in Health and Disease. Cell Metabolism, v. 26, n. 5, p. 720-736, 2017. DOI: 10.1016/j.cmet.2017.09.026.
- RANDLE, Philip J. et al. The glucose fatty-acid cycle. Its role in insulin sensitivity and the metabolic disturbances of diabetes mellitus. The Lancet, v. 281, n. 7285, p. 785-789, 1963. DOI: 10.1016/S0140-6736(63)91500-9.
- MUOIO, Deborah M. Metabolic inflexibility: when mitochondrial indecision leads to metabolic gridlock. Cell Metabolism, v. 20, n. 5, p. 704-706, 2014. DOI: 10.1016/j.cmet.2014.10.017.
- HARDIE, D. Grahame. AMP-activated protein kinase: a key regulator of energy balance with many roles in human disease. Journal of Internal Medicine, v. 276, n. 6, p. 543-559, 2014. DOI: 10.1111/joim.12268.
- RICHTER, Erik A.; HARGREAVES, Mark. Exercise, GLUT4, and skeletal muscle glucose uptake. Physiological Reviews, v. 93, n. 3, p. 993-1017, 2013. DOI: 10.1152/physrev.00038.2012.
- JÉQUIER, Eric; ACHESON, Kevin; SCHUTZ, Yves. Assessment of energy expenditure and fuel utilization in man by indirect calorimetry. The American Journal of Clinical Nutrition, v. 46, n. 6, p. 863-879, 1987. DOI: 10.1093/ajcn/46.6.863.
- PETERSEN, Kitt Falk; SHULMAN, Gerald I. Etiology of insulin resistance. The American Journal of Medicine, v. 119, n. 5, p. S10-S16, 2006. DOI: 10.1016/j.amjmed.2006.01.009.
Carregando comentários…