Crononutrição e Ritmo Circadiano: O Impacto dos Horários Alimentares nos Genes Relógio (CLOCK/BMAL1), Sensibilidade à Insulina e TMB
Neste artigo
- 1. A Ciência da Crononutrição: A Quebra do Dogma Calórico
- 2. A Arquitetura dos Relógios Circadianos: Oscilador Central vs. Relógios Periféricos
- 3. O Loop Molecular dos Genes Relógio: CLOCK, BMAL1, PER e CRY
- 4. Sensibilidade à Insulina e Efeito Térmico dos Alimentos: A Assimetria Diurna
- 5. Desalinhamento Circadiano e Metainflamação: O Impacto dos Jantares Tardios
- 6. Protocolo Clínico: Alimentação com Restrição de Tempo Precoce (eTRE)
- 7. Perguntas Frequentes (FAQ)
- Referências Bibliográficas e Literatura Científica
Durante quase um século, o modelo convencional da termodinâmica nutricional baseou-se na premissa estrita da conservação de energia: o balanço energético final seria determinado exclusivamente pela equação entre calorias ingeridas e calorias gastas, independentemente do contexto temporal em que esses nutrientes entram no organismo. Sob essa perspectiva reducionista, 500 quilocalorias provenientes de carboidratos e lipídios teriam exatamente o mesmo destino metabólico se consumidas às 08h00 da manhã ou às 23h30 da noite.
Os avanços recentes da Cronobiologia e da Crononutrição desmantelaram essa visão linear. As evidências científicas contemporâneas demonstram de forma inequívoca que o corpo humano não processa nutrientes com a mesma eficiência ao longo das 24 horas do dia. O metabolismo celular, a secreção hormonal pancreática, a depuração de lipídios plasmáticos e a própria taxa metabólica basal são regidos por uma complexa rede de relógios moleculares endógenos sincronizados com a rotação da Terra.
O consumo de alimentos em desacordo com o nosso programa circadiano — fenômeno impulsionado pela vida moderna, iluminação artificial, trabalho noturno e o hábito contemporâneo de jantares hipercalóricos tardios — gera um quadro de desalinhamento circadiano crônico. Esse descompasso entre o relógio central cerebral e os osciladores metabólicos periféricos no fígado, tecido adiposo e pâncreas atua como um potente catalisador silencioso da resistência à insulina, da esteatose hepática dismetabólica (MASLD) e da desaceleração da oxidação de gorduras.
Neste artigo aprofundado, dissecamos as bases moleculares da sincronização circadiana, o loop transcricional dos genes CLOCK e BMAL1, a curva diurna da sensibilidade insulínica mediada pela melatonina, a oscilação do Efeito Térmico dos Alimentos (TEF) e o protocolo de Alimentação com Restrição de Tempo Precoce (eTRE – Early Time-Restricted Eating) baseado em ensaios clínicos controlados.
1. A Ciência da Crononutrição: A Quebra do Dogma Calórico
A crononutrição investiga a interação bidirecional entre o momento da ingestão alimentar (timing nutricional) e a organização temporal do sistema circadiano. O princípio fundamental dessa disciplina pode ser sintetizado em uma premissa fisiológica: não somos apenas o que comemos, mas quando comemos.
O Experimento Clássico da Calorimetria Isocalórica
Estudos pioneiros conduzidos por centros de pesquisa metabólica de ponta (como o laboratório da Dra. Marta Garaulet e ensaios clínicos publicados no The American Journal of Clinical Nutrition) submeteram indivíduos a dietas com rigorosa equivalência calórica e de macronutrientes, alterando exclusivamente a distribuição temporal das refeições.
Os resultados foram categóricos:
- Perda de Peso Superior no Grupo Matinal: Indivíduos que concentraram a maior fração calórica no início do dia perderam substancialmente mais peso e gordura visceral do que aqueles que consumiram a mesma quantidade calórica distribuída tardiamente.
- Excursões Glicêmicas e Insulínicas Discrepantes: A administração de uma carga oral de glicose padronizada às 20h00 resultou em uma área sob a curva (AUC) de glicemia e insulinemia significativamente mais elevada e prolongada em comparação com a mesma carga administrada às 08h00 no mesmo paciente.
- Quociente Respiratório Noturno: A ingestão calórica tardia suprime a queda fisiológica noturna do Quociente Respiratório (RER), impedindo a transição para a queima predominante de ácidos graxos livres durante o sono.
A explicação para essas discrepâncias reside na existência de um sistema de marca-passo genético operando dentro de cada célula metabólica do corpo humano.
2. A Arquitetura dos Relógios Circadianos: Oscilador Central vs. Relógios Periféricos
O sistema de temporização circadiana humano é organizado em uma estrutura hierárquica dividida entre um marca-passo central e múltiplos relógios periféricos autônomos.
2.1. O Oscilador Mestre: Núcleo Supraquiasmático (SCN)
Localizado no hipotálamo anterior, o Núcleo Supraquiasmático (SCN) é composto por aproximadamente 20.000 neurônios que funcionam como o relógio mestre do organismo. O principal sincronizador (zeitgeber) do SCN é o fotoperíodo (ciclo claro-escuro ambiental):
- Fótons de luz natural atingem as células ganglionares da retina intrinsecamente fotossensíveis (ipRGCs), que expressam o fotopigmento melanopsina.
- O sinal luminoso é transmitido diretamente ao SCN por meio do trato retinohipotalâmico (RHT).
- O SCN processa a informação e sincroniza o ritmo circadiano central, regulando a temperatura corporal, a secreção do cortisol matinal e suprimindo a síntese de melatonina na glândula pineal durante o dia.
2.2. Os Relógios Periféricos e o Food Entrainment
Virtualmente todos os tecidos periféricos — com destaque para o fígado, o tecido adiposo branco e marrom, o músculo esquelético, o estômago e as ilhotas pancreáticas — possuem seus próprios relógios moleculares intrínsecos.
Contudo, enquanto o relógio central (SCN) responde primordialmente à luz, os relógios periféricos são sincronizados primariamente pela ingestão alimentar (food entrainment) e pela disponibilidade de nutrientes:
- Fígado: O relógio hepático monitora os influxos portais de glicose, aminoácidos e ácidos graxos, ativando ou silenciando rotas de glicogênese, gliconeogênese e lipogênese.
- Pâncreas: O relógio das células β sincroniza a transcrição dos canais de potássio sensíveis ao ATP (KATP) e a maquinaria de exocitose de grânulos de insulina.
- Músculo Esquelético: Regula a expressão circadiana do transportador GLUT4 e das enzimas da cadeia transportadora de elétrons mitocondrial.
Quando nos alimentamos em horários em que o SCN interpreta como noite biológica (ausência de luz natural), ocorre um desacoplamento funcional: o SCN permanece ajustado pelo escuro, enquanto o fígado e o pâncreas são forçados a operar em modo diurno. Esse conflito intertecidual é o cerne do desalinhamento circadiano.
3. O Loop Molecular dos Genes Relógio: CLOCK, BMAL1, PER e CRY
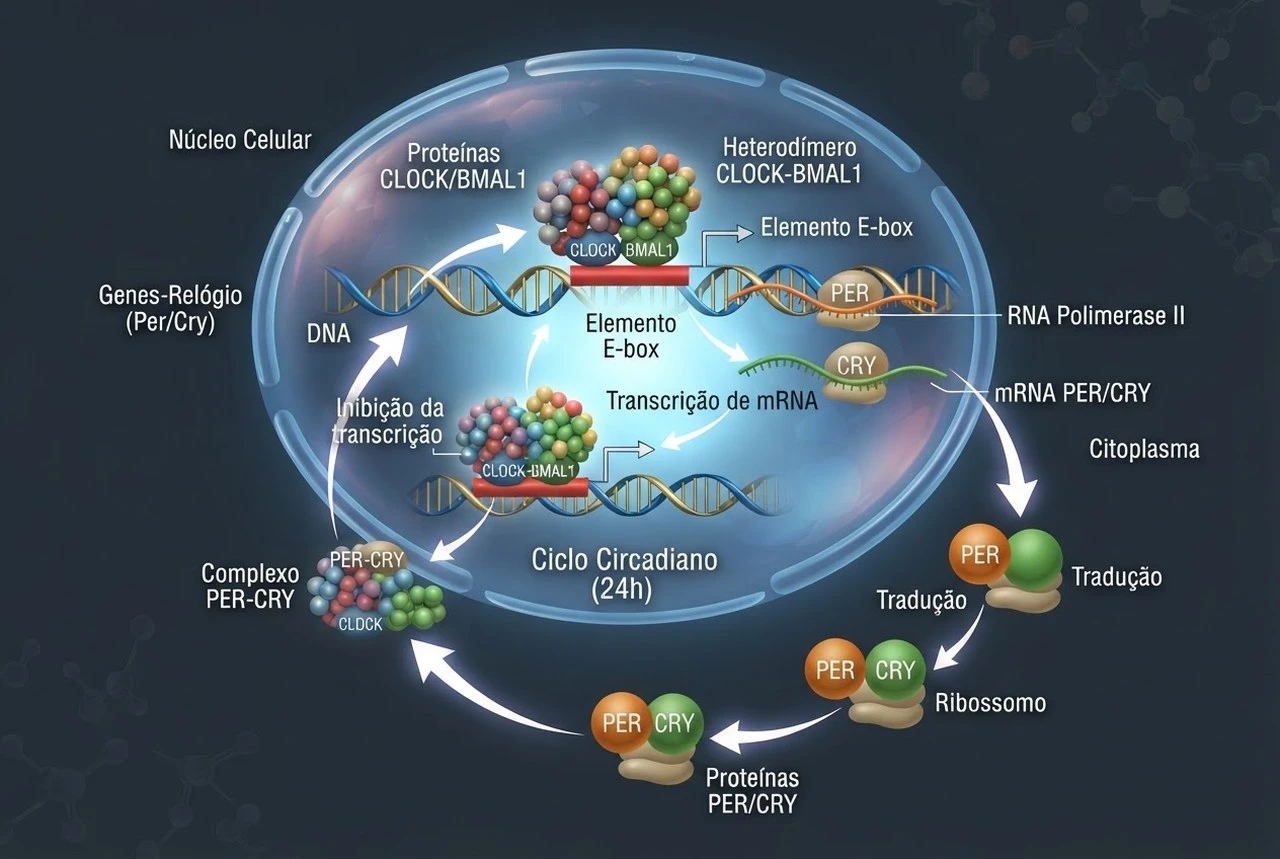
No interior de cada célula, a oscilação de 24 horas é mantida por um maquinário genético autônomo baseado em alças de transcrição e tradução com retroalimentação negativa (Transcription-Translation Feedback Loops — TTFL).
3.1. O Braço Positivo do Loop (Dia)
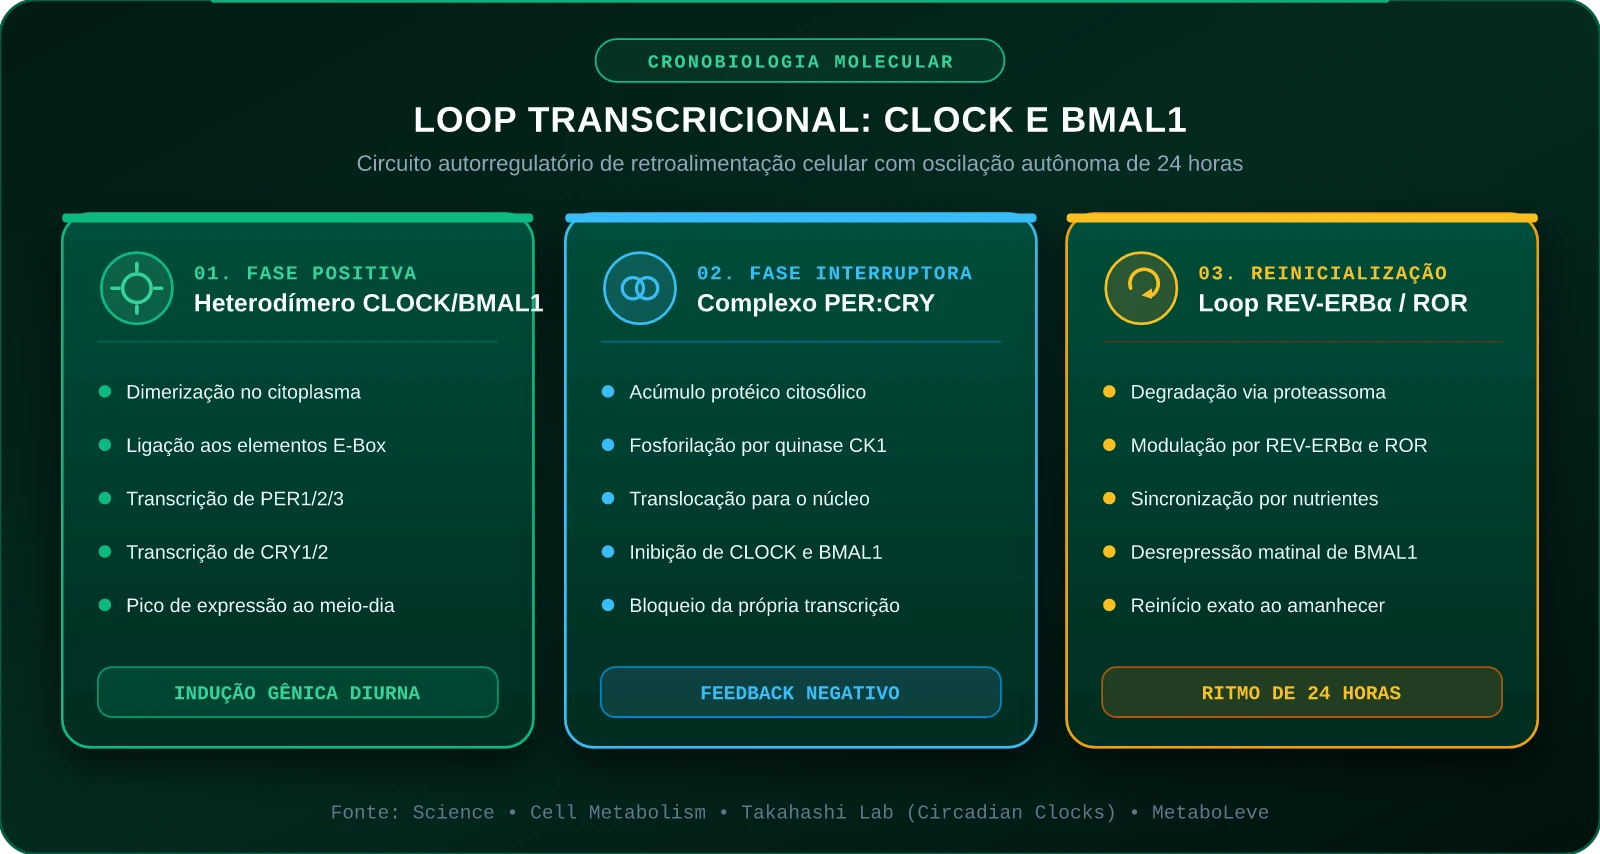
O ciclo molecular inicia-se com a heterodimerização de dois fatores de transcrição com domínios bHLH-PAS:
- CLOCK (Circadian Locomotor Output Cycles Kaput)
- BMAL1 (Brain and Muscle Arnt-Like Protein 1, também denominado ARNTL)
O heterodímero CLOCK:BMAL1 migra para o núcleo celular e liga-se a sequências canônicas de DNA denominadas elementos E-box (sequência consenso 5'-CACGTG-3') presentes nos promotores de centenas de genes-alvo. Dentre esses genes, estão os componentes do seu próprio freio inibitório:
- Genes PER (Period: PER1, PER2, PER3)
- Genes CRY (Cryptochrome: CRY1, CRY2)
Além dos repressores, o complexo CLOCK:BMAL1 ativa a transcrição de milhares de genes metabólicos fundamentais (Clock-Controlled Genes — CCGs), controlando desde enzimas da beta-oxidação mitocondrial até receptores hormonais.
3.2. O Braço Negativo do Loop (Noite)
À medida que as proteínas PER e CRY são traduzidas no citosol, acumulam-se progressivamente ao longo do dia e formam complexos heterotípicos estáveis. Esse processo é finamente cronometrado pela fosforilação mediada pelas enzimas Caseína Quinase 1 épsilon/delta (CK1ε/δ) e pela Glucogênio Sintase Quinase 3 beta (GSK3β), que regulam a estabilidade e a velocidade de degradação das proteínas.
Ao final do dia e início da noite biológica:
- O complexo fosforilado PER:CRY transloca-se para o interior do núcleo celular.
- No núcleo, PER e CRY interagem diretamente com o heterodímero CLOCK:BMAL1, inibindo sua atividade transcricional.
- Com o heterodímero bloqueado, a transcrição de novos RNAm de PER e CRY cessa.
- Durante a madrugada, as proteínas PER e CRY nucleares são ubiquitinadas por complexos ligases E3 (como FBXL3) e direcionadas para degradação no proteassoma 26S.
- Com o desaparecimento dos repressores ao amanhecer, CLOCK e BMAL1 ficam livres novamente para reiniciar um novo ciclo transcricional de 24 horas.
3.3. Os Loops Acessórios: REV-ERBα e ROR
Para conferir robustez e estabilidade matemática ao relógio, existe um circuito secundário integrado:
- CLOCK:BMAL1 ativa os receptores nucleares REV-ERBα/β e RORα/γ.
- REV-ERBα liga-se aos elementos RORE no promotor do gene BMAL1, reprimindo sua transcrição.
- RORα compete pelo mesmo sítio, ativando a transcrição de BMAL1.
Como a proteína REV-ERBα possui meia-vida curta e sua expressão oscila fortemente com o ciclo alimentar, ela atua como a principal ponte entre a presença de nutrientes no fígado e a reprogramação do relógio molecular.
4. Sensibilidade à Insulina e Efeito Térmico dos Alimentos: A Assimetria Diurna
A consequência clínica mais contundente da oscilação dos genes relógio é a pronunciada variação circadiana da tolerância aos carboidratos e do gasto calórico digestivo.
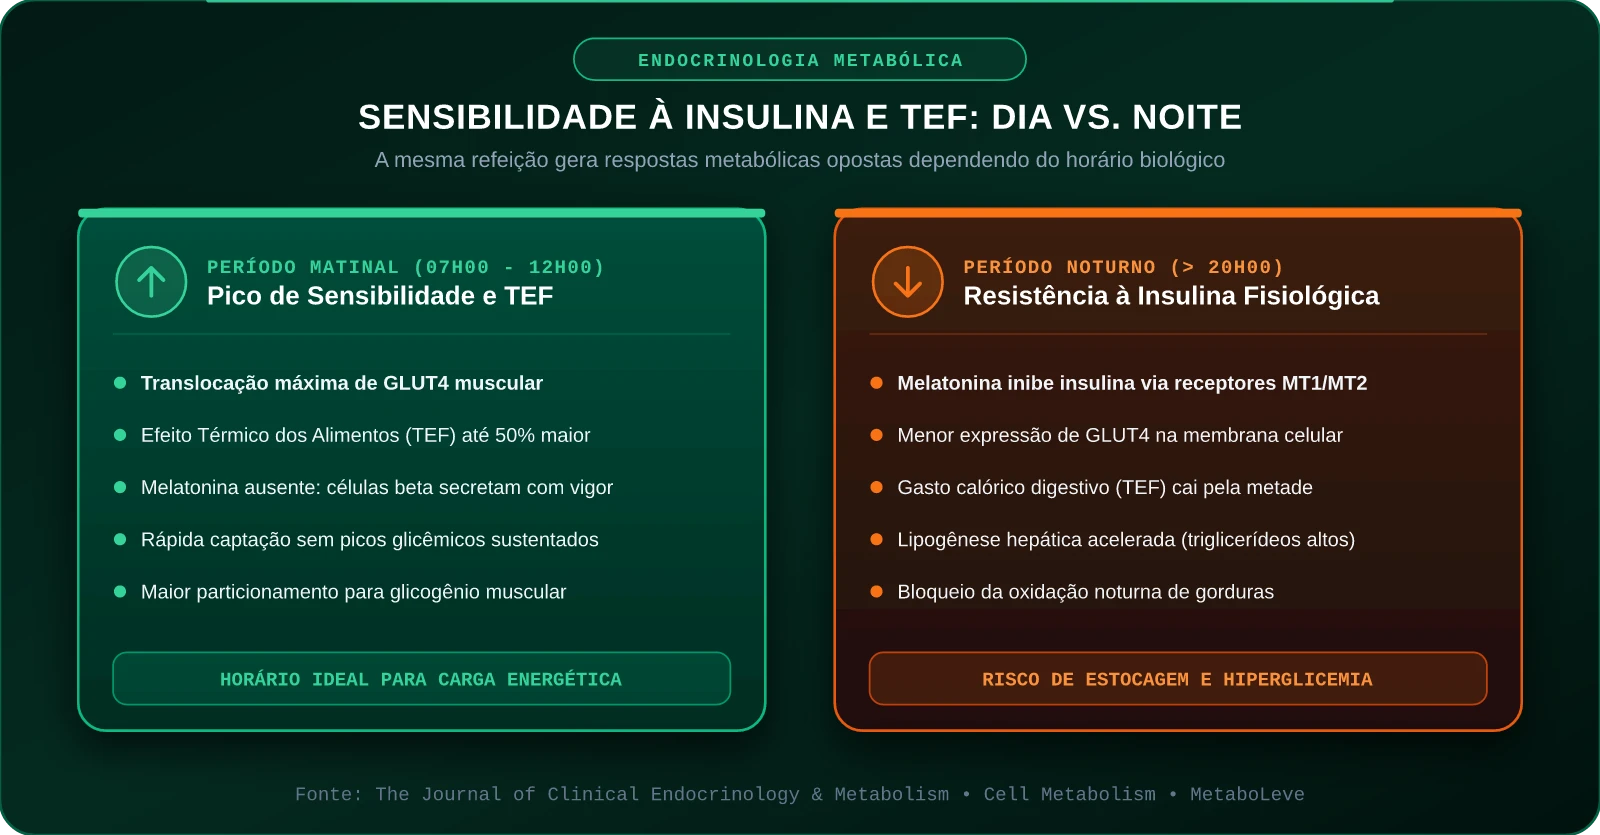
4.1. O Antagonismo Melatonina vs. Insulina nas Células Beta
A síntese de melatonina pela glândula pineal inicia-se por volta das 20h00 a 21h00, acompanhando o declínio da luz natural (Dim Light Melatonin Onset — DLMO). A melatonina sinaliza a todo o organismo que o período de repouso e jejum começou.
As células β do pâncreas expressam em sua membrana plasmática alta densidade de receptores acoplados à proteína G para melatonina:
- Receptor MT1 (acoplado a $G_i$, que inibe a Adenilato Ciclase e reduz os níveis de cAMP)
- Receptor MT2 (que inibe as vias de influxo de cálcio dependentes de voltagem)
Quando um indivíduo ingere uma refeição rica em carboidratos tarde da noite, a glicose é absorvida pelo enterócito, mas a secreção de insulina pancreática encontra-se fisiologicamente bloqueada pela melatonina circulante. O resultado clínico é uma hiperglicemia pós-prandial desproporcional e duradoura, associada à esteatose hepática compensatória via lipogênese de novo.
4.2. Translocação de GLUT4 Muscular e Expressão de AS160
No tecido musculoesquelético, a expressão de proteínas-chave da cascata do receptor de insulina (IRS-1, PI3K e a proteína fosforiladora AS160) atinge seu zênite no meio da manhã e início da tarde.
Estudos biopsiando tecido muscular em diferentes horários demonstraram que a translocação de vesículas de GLUT4 para a membrana plasmática em resposta à mesma concentração de insulina é até 40% menor no período noturno do que às 09h00 da manhã. O músculo esquelético humano é programado para ser um ralo de glicose durante o dia e um poupador de glicose durante a noite.
4.3. A Variação do Efeito Térmico dos Alimentos (TEF)
O Efeito Térmico dos Alimentos (Thermic Effect of Food — TEF) representa o custo calórico de digestão, absorção, transporte e armazenamento dos nutrientes ingeridos, correspondendo habitualmente a cerca de 10% do gasto energético diário.
No entanto, ensaios clínicos com calorimetria indireta de alta precisão (como os trabalhos de Morris et al., PNAS, e Bo et al., AJCN) comprovaram que o TEF não é fixo:
- A mesma refeição de 600 kcal consumida às 08h30 da manhã gera um aumento termogênico médio de 75 a 90 kcal nas 4 horas subsequentes.
- A idêntica refeição de 600 kcal consumida às 20h30 da noite induz um aumento termogênico de apenas 45 a 50 kcal.
Essa discrepância diária de 30 a 40 kcal/dia decorrente puramente do horário da alimentação representa, ao longo de um ano, uma diferença acumulada equivalente a mais de 1,5 kg a 2 kg de gordura corporal pura, sem qualquer alteração na quantidade calórica total ingerida.
5. Desalinhamento Circadiano e Metainflamação: O Impacto dos Jantares Tardios
O estilo de vida ocidental contemporâneo promoveu uma desconexão radical entre a biologia evolutiva e o comportamento diário. O trabalho noturno, as jornadas prolongadas com telas emissoras de luz azul (comprimento de onda de 460-480 nm) e o hábito de jantar após as 20h30 geram uma síndrome metabólica temporal.
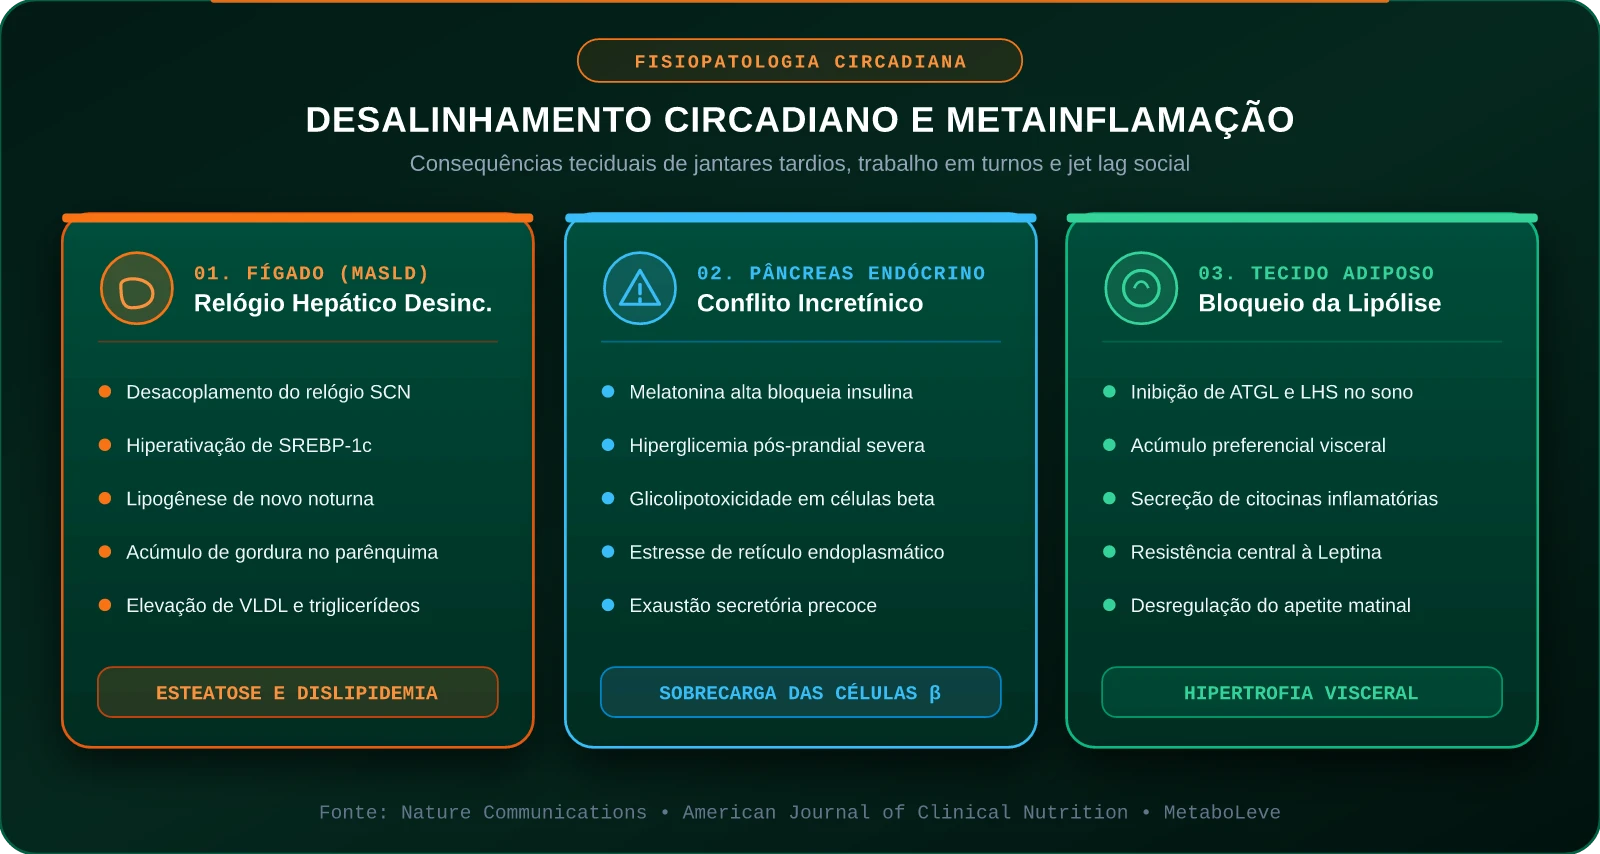
5.1. A Cascata de Alterações Induzidas pela Alimentação Tardia:
| Órgão / Sistema | Resposta ao Alimento no Horário Natural (Dia) | Impacto do Alimento em Horário Tardio (Noite) |
|---|---|---|
| Fígado | Síntese de glicogênio e oxidação lipídica mitocondrial via PPARα | Hiperativação de SREBP-1c, lipogênese de novo acelerada e esteatose (MASLD) |
| Pâncreas | Secreção rápida e pulsátil de insulina mediada por glicose e incretinas | Conflito com melatonina (via MT1/MT2), hiperglicemia prolongada e exaustão de células β |
| Tecido Adiposo | Armazenamento de lipídios seguido de lipólise programada basal | Bloqueio da lipólise noturna, hipertrofia de adipócitos viscerais e secreção de TNF-α |
| Trato Gastrointestinal | Motilidade rápida e esvaziamento gástrico eficiente | Esvaziamento gástrico retardado, refluxo gastroesofágico e disbiose circadiana |
| Triglicerídeos Plasmáticos | Depuração rápida pela Lipase Lipoproteica (LPL) ativada | Clearance lipídico prejudicado com hipertrigliceridemia noturna aterogênica |
5.2. O Jet Lag Social e a Disbiose da Microbiota Circadiana
A variação de mais de 2 horas no horário de dormir e de se alimentar entre os dias úteis e os fins de semana — denominada Jet Lag Social — perpetua a dessincronização celular.
Adicionalmente, estudos recentes em metagenômica revelaram que a microbiota intestinal possui seu próprio ritmo circadiano de oscilação:
- Durante o dia, predominam bactérias voltadas à quebra de carboidratos e produção de ácidos graxos de cadeia curta (Butirato e Propionato).
- Durante a noite, a microbiota dedica-se ao reparo da camada de muco epitelial e manutenção das junções de oclusão (tight junctions).
- Comer tarde da noite interrompe o ciclo de renovação da mucosa, elevando a permeabilidade intestinal, a translocação de endotoxinas LPS e desencadeando inflamação de baixo grau (metainflamação) crônica mediada pela via TLR4/NF-κB.
6. Protocolo Clínico: Alimentação com Restrição de Tempo Precoce (eTRE)
Para sincronizar novamente os relógios moleculares e restaurar a flexibilidade metabólica, a intervenção nutricional de maior impacto respaldada pela literatura clínica é a Alimentação com Restrição de Tempo Precoce (Early Time-Restricted Eating — eTRE).
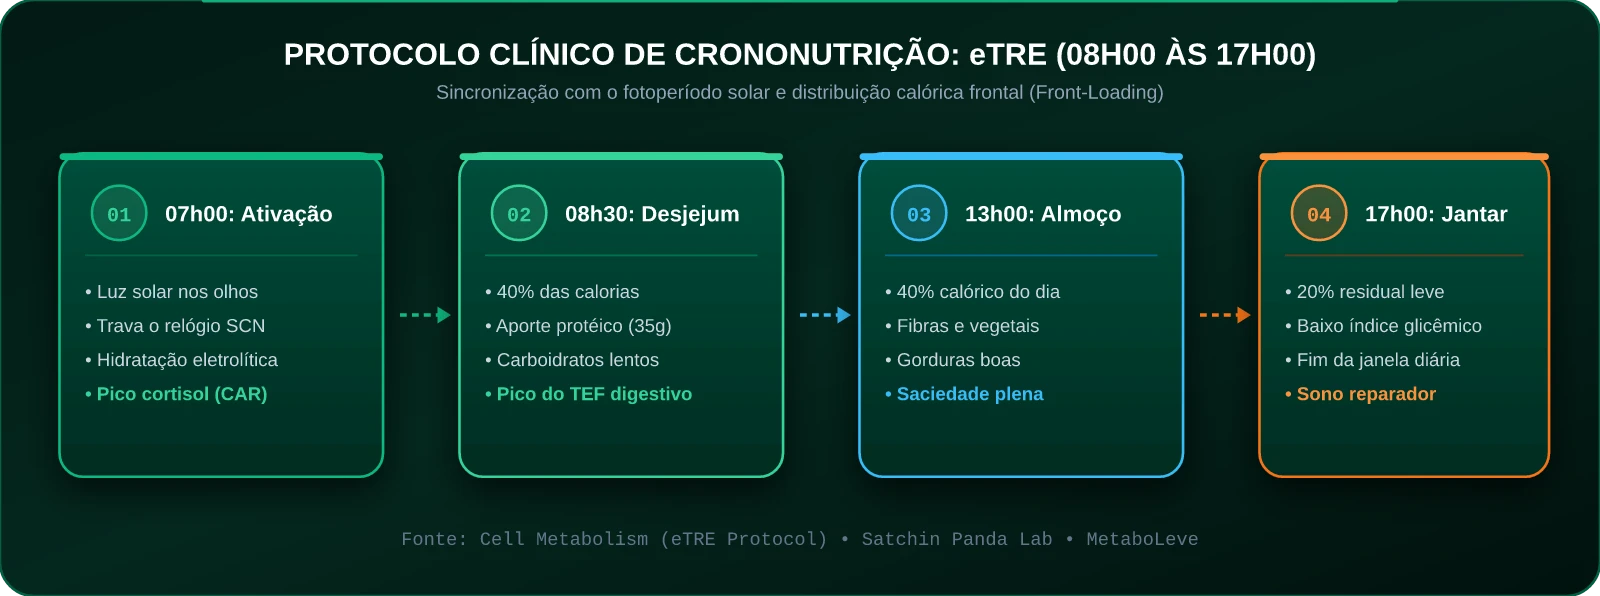
Diferente do jejum intermitente popular (que frequentemente pula o café da manhã e estende a alimentação até as 22h00 — o chamado Late TRE, fisiologicamente desfavorável), o eTRE alinha a janela de alimentação exatamente ao fotoperíodo solar.
6.1. A Estrutura da Janela eTRE (8 a 9 horas de alimentação):
- Início da Janela: 08h00 a 08h30 (após a exposição solar matinal).
- Término da Janela: 16h30 a 17h30 (antes ou no momento do pôr do sol).
- Jejum Noturno: 15 a 16 horas contínuas, cobrindo todo o período de secreção de melatonina.
6.2. Estratégia de Distribuição Frontal (Front-Loading Calories):
A distribuição calórica e de macronutrientes ao longo do dia deve respeitar a curva de eficiência metabólica:
| Refeição | Horário Recomendado | Proporção Calórica | Composição de Macronutrientes |
|---|---|---|---|
| Desjejum Estruturado | 08h30 (1h após acordar) | 40% a 45% das calorias totais | Alto aporte proteico (30g a 40g), carboidratos complexos de baixo índice glicêmico e fibras solúveis |
| Almoço Substancial | 12h30 a 13h00 | 35% a 40% das calorias totais | Prato denso em micronutrientes, vegetais folhosos, proteínas magras e lipídios monoinsaturados |
| Jantar / Lanche Final | 16h30 a 17h00 | 15% a 20% das calorias totais | Refeição de fácil digestibilidade, baixo teor de carboidratos refinados e sem sobrecarga lipídica |
| Período Noturno | 18h00 em diante | 0% (Apenas chás calmantes e água) | Água, infusões de camomila, melissa ou mulungu sem calorias; zero estimulantes |
6.3. Benefícios Clínicos Comprovados em Ensaios com eTRE (Sutton et al., Cell Metabolism):
Em ensaios clínicos controlados de 5 a 12 semanas em humanos adultos com sobrepeso ou pré-diabetes:
- Queda expressiva nos níveis de insulina em jejum (reduções de até 25% a 30%).
- Melhora acentuada na sensibilidade periférica à insulina avaliada pelo clamp hiperinsulinêmico-euglicêmico.
- Redução da pressão arterial sistólica e diastólica (efeito comparável a fármacos anti-hipertensivos de primeira linha).
- Diminuição do estresse oxidativo sistêmico e dos marcadores lipoperoxidativos (8-isoprostano).
- Aumento substancial da queima lipídica noturna por preservação do jejum biológico.
7. Perguntas Frequentes (FAQ)
1. Pular o café da manhã e comer das 12h00 às 20h00 é tão eficaz quanto o eTRE?
Não. Embora a restrição tardia (12h às 20h) ainda forneça o benefício de 16 horas de jejum, ela coincide com o período em que a sensibilidade à insulina muscular já começou o seu declínio fisiológico e estende a última refeição para a proximidade do início da secreção de melatonina. Ensaios clínicos que compararam diretamente Early TRE (08h às 16h) contra Late TRE (12h às 20h) demonstraram que o grupo precoce obteve melhorias significativamente superiores no controle glicêmico, sensibilidade insulínica e redução de pressão arterial.
2. E se minha rotina profissional não permitir jantar às 17h00?
A crononutrição opera sob o princípio da redução de danos. Se jantar às 17h00 é inviável, estabeleça a meta de encerrar a última refeição pelo menos 3 a 4 horas antes de dormir, idealmente antes das 19h30 a 20h00. Além disso, torne o jantar a refeição mais leve do dia (focada em proteínas magras e vegetais, com mínimo carboidrato simples), reservando os carboidratos mais densos para o café da manhã e o almoço.
3. O café preto em jejum pela manhã interfere no relógio biológico?
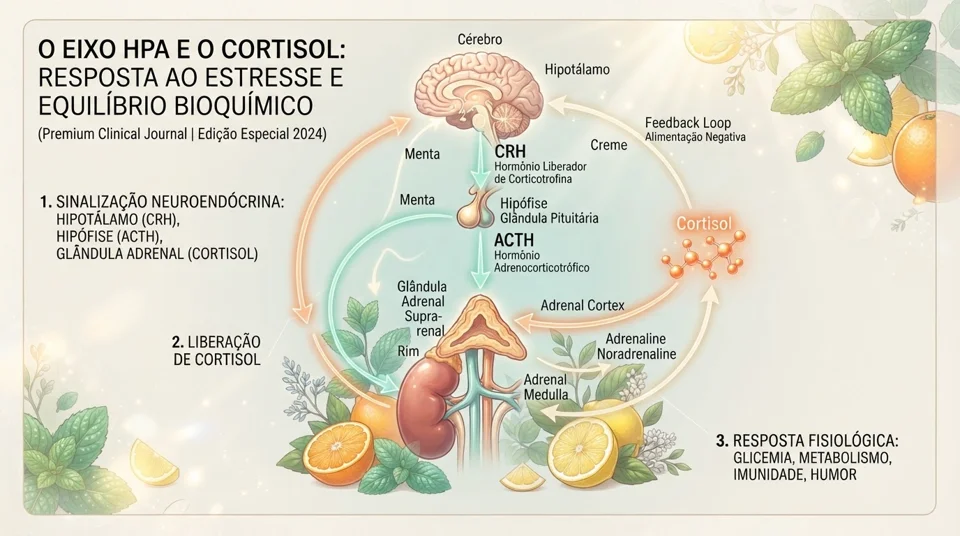
A cafeína pura sem açúcar não quebra o jejum metabólico das células beta e não desloca o relógio periférico hepático da mesma forma que os macronutrientes. No entanto, a cafeína estimula o eixo HPA, elevando transitoriamente o cortisol. Recomenda-se aguardar de 60 a 90 minutos após o despertar antes da primeira xícara de café para permitir que a Resposta do Cortisol ao Despertar (CAR) ocorra naturalmente pela luz do sol, evitando quedas de energia no meio da tarde.
4. Como o treinamento físico interage com a crononutrição?
O exercício físico resistido atua como um potente sincronizador muscular periférico, capaz de translocar GLUT4 independentemente de insulina via ativação da proteína quinase AMPK e cálcio-calmodulina quinase (CaMKII). Treinar pela manhã ou no início da tarde potencializa a captação de glicose das refeições maiores. Se o treino for noturno, o músculo continuará apto a captar parte da glicose pós-exercício, mas a alimentação subsequente deve ser moderada para não interferir na arquitetura do sono profundo e na secreção de GH.
5. O uso de luz azul à noite anula os benefícios de uma alimentação disciplinada?
Sim, em grande parte. A exposição a telas de LED, smartphones e luzes de teto frias após o pôr do sol suprime a produção de melatonina pelo SCN em até 80%, atrasando o relógio central enquanto o relógio periférico já encerrou a digestão. Esse desacoplamento crônico mantém o cortisol noturno elevado e degrada o sono REM e de ondas lentas, resultando em elevação da grelina e compulsão por carboidratos na manhã seguinte.
Referências Bibliográficas e Literatura Científica
- SUTTON, Elizabeth F. et al. Early Time-Restricted Feeding Improves Insulin Sensitivity, Blood Pressure, and Oxidative Stress Even without Weight Loss in Men with Prediabetes. Cell Metabolism, v. 27, n. 6, p. 1212-1221.e3, 2018. DOI: 10.1016/j.cmet.2018.04.010.
- GARALET, Marta et al. Timing of food intake predicts weight loss effectiveness. International Journal of Obesity, v. 37, n. 4, p. 604-611, 2013. DOI: 10.1038/ijo.2012.229.
- PANDA, Satchin. Circadian physiology of metabolism. Science, v. 354, n. 6315, p. 1008-1015, 2016. DOI: 10.1126/science.aah4974.
- TAKAHASHI, Joseph S. Transcriptional architecture of the mammalian circadian clock. Nature Reviews Genetics, v. 18, n. 3, p. 164-179, 2017. DOI: 10.1038/nrg.2016.150.
- BO, Simona et al. Is the pacing of food intake associated with metabolic syndrome? A review of circadian eating patterns and health. The American Journal of Clinical Nutrition, v. 100, n. 4, p. 1045-1056, 2014. DOI: 10.3945/ajcn.114.086488.
- MORRIS, Christopher J. et al. Endogenous circadian system and circadian misalignment impact glucose tolerance via independent mechanisms in humans. Proceedings of the National Academy of Sciences (PNAS), v. 112, n. 17, p. E2225-E2234, 2015. DOI: 10.1073/pnas.1418955112.
- POGGIOGALLE, Eleonora; JAMSHEAD, Hiba; PETERSON, Courtney M. Circadian regulation of glucose, lipid, and energy metabolism in humans. Metabolism – Clinical and Experimental, v. 84, p. 11-27, 2018. DOI: 10.1016/j.metabol.2017.11.017.
- BASS, Joseph; TAKAHASHI, Joseph S. Circadian integration of metabolism and energetics. Science, v. 330, n. 6009, p. 1349-1354, 2010. DOI: 10.1126/science.1195271.
- KALSBEEK, Andries et al. Circadian control of glucose metabolism. Molecular Metabolism, v. 3, n. 4, p. 372-383, 2014. DOI: 10.1016/j.molmet.2014.03.002.
Carregando comentários…