Saúde Mitocondrial, Biogênese e Termogênese: O Papel de PGC-1α, UCP-1 e Intervenções de Ativação do Tecido Adiposo Marrom (BAT)
Neste artigo
- 1. Bioenergética Mitocondrial, Dinâmica Organelar e Envelhecimento
- 2. O Maestro da Biogênese: O Coativador Transcricional PGC-1α
- 3. Diferenciação Adiposa: Tecido Adiposo Branco (WAT), Bege (Brite) e Marrom (BAT)
- 4. A Proteína Desacopladora 1 (UCP-1 / Termogenina): Mecânica Biofísica
- 5. Vias Endócrinas e Sinalização Fisiológica para Ativação do BAT
- 6. Protocolos Clínicos de Otimização Mitocondrial Baseados em Evidências
- 7. Perguntas Frequentes (FAQ)
- Referências Bibliográficas e Literatura Científica
A integridade funcional das mitocôndrias é o determinante central da longevidade biológica, da capacidade de oxidação de substratos e da flexibilidade metabólica no organismo humano. Muito além de operarem meramente como as “usinas de força” celulares responsáveis pela geração de trifosfato de adenosina (ATP), as mitocôndrias funcionam como sensores bioenergéticos dinâmicos, coordenadores de vias de sinalização de sobrevivência e reguladores da temperatura corporal através da termogênese sem tremor (non-shivering thermogenesis).
Nas últimas duas décadas, a endocrinologia e a biologia molecular identificaram que o declínio mitocondrial — caracterizado pela perda progressiva da densidade de cristas, acúmulo de mutações no DNA mitocondrial (mtDNA) e desacoplamento desregulado da cadeia de transporte de elétrons — constitui a base fisiopatológica comum da resistência à insulina, da sarcopenia, da esteatose hepática dismetabólica e das doenças cardiovasculares.
Em contrapartida, a ativação orquestrada da biogênese mitocondrial mediada pelo coativador transcricional PGC-1α (Peroxisome Proliferator-Activated Receptor Gamma Coactivator 1-Alpha) e o recrutamento da Proteína Desacopladora 1 (UCP-1 / Termogenina) no Tecido Adiposo Marrom (BAT) e no Tecido Adiposo Bege (Brite) emergiram como os alvos terapêuticos mais promissores para a aceleração da taxa metabólica basal e a preservação da saúde metabólica.
Neste artigo aprofundado, examinamos as vias moleculares da fosforilação oxidativa, os mecanismos de fusão, fissão e mitofagia, a cascata regulatória do eixo AMPK/SIRT1/PGC-1α, a física bioenergética do desacoplamento por UCP-1 e os protocolos clínicos com validação científica para maximizar o pool mitocondrial por meio de exposição ao frio, periodização de exercícios e nutracêuticos direcionados.
1. Bioenergética Mitocondrial, Dinâmica Organelar e Envelhecimento
A produção celular de energia através da respiração celular ocorre na membrana mitocondrial interna (IMM), onde cinco complexos proteicos multiméricos constituem a Cadeia de Transporte de Elétrons (ETC) e a Fosforilação Oxidativa (OXPHOS):
À medida que os equivalentes redutores ($NADH$ e $FADH_2$) gerados pelo Ciclo de Krebs e pela Beta-Oxidação transferem elétrons através dos complexos I a IV até o aceptor final (oxigênio, $O_2$), prótons ($H^+$) são bombeados da matriz mitocondrial para o espaço intermembrana. Esse bombeamento estabelece uma força próton-motriz eletroquímica vigorosa (composta por um gradiente elétrico de voltagem Δ Psi_m ≈ -150 mV a -180 mV e um gradiente químico de pH ΔpH).
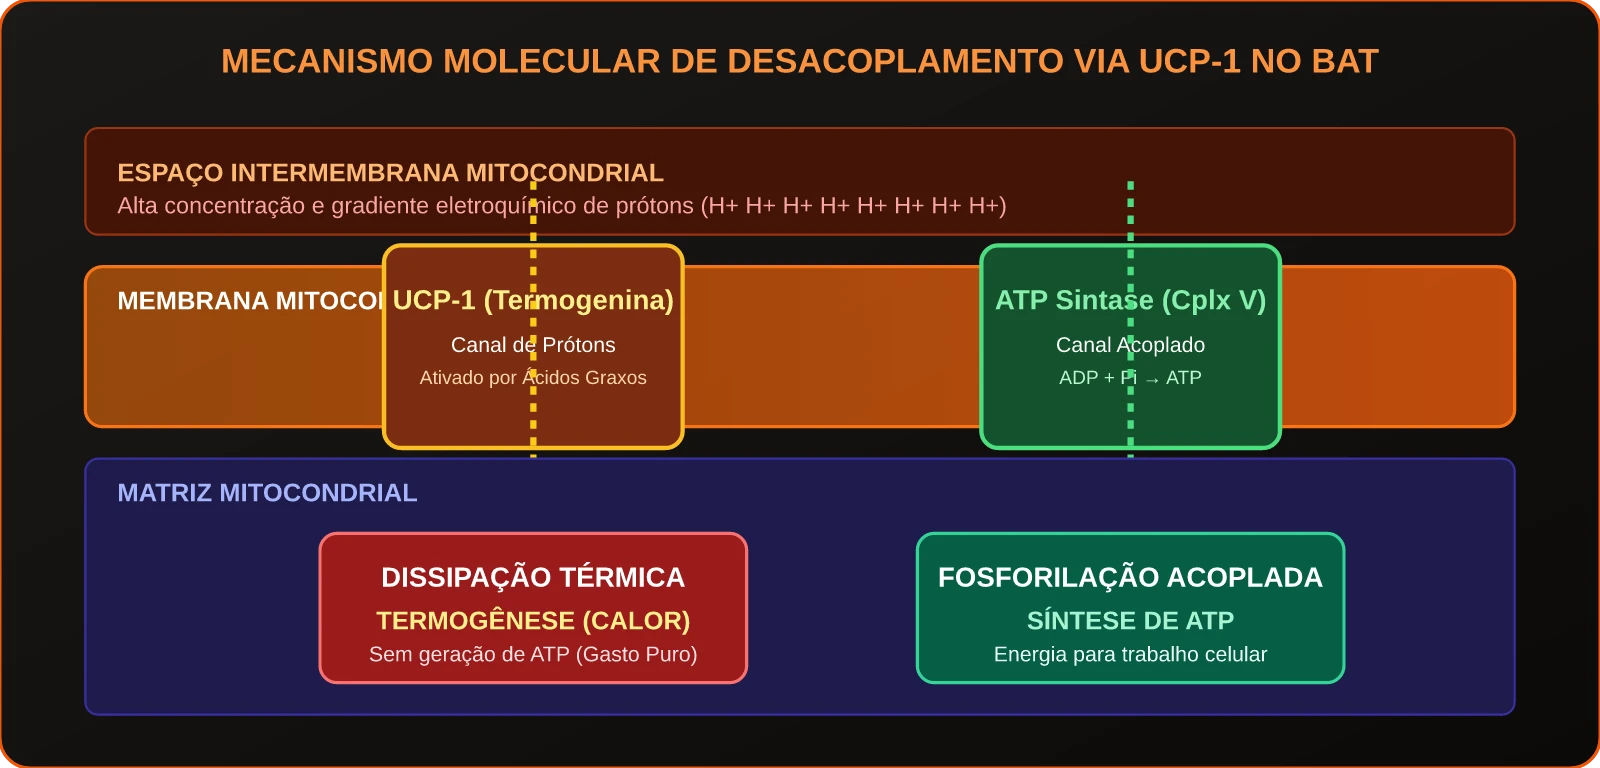
Em condições basais, o retorno desses prótons para a matriz ocorre exclusivamente pelo canal $F_0$ da ATP Sintase (Complexo V), acoplando a energia potencial do gradiente à síntese mecânica de ATP a partir de ADP e fosfato inorgânico ($P_i$).
1.1. O Declínio Mitocondrial e o Círculo Vicioso dos Radicais Livres (ROS)
Durante a transferência de elétrons na cadeia respiratória, entre 0,1% e 2% dos elétrons escapam prematuramente (principalmente nos Complexos I e III), reagindo com o oxigênio molecular para formar o radical ânion superóxido (O_2–). Em mitocôndrias jovens e saudáveis, enzimas antioxidantes endógenas — como a Superóxido Dismutase de Manganês (MnSOD / SOD2) e a Glutationa Peroxidase (GPx) — neutralizam essas espécies reativas de oxigênio (ROS).
Contudo, com o envelhecimento, sedentarismo e sobrecarga crônica de nutrientes, a taxa de vazamento de elétrons supera a capacidade de tamponamento antioxidante. Como o DNA mitocondrial (mtDNA) está localizado na matriz em íntima proximidade com a membrana interna e é desprovido de histonas protetoras, ele sofre mutações oxidativas contínuas. Mutações no mtDNA codificam subunidades proteicas defeituosas para a própria cadeia respiratória, gerando mitocôndrias que produzem menos ATP e mais radicais livres, estabelecendo o ciclo patológico do envelhecimento celular.
1.2. Dinâmica Mitocondrial: Fusão, Fissão e Mitofagia
A população mitocondrial celular não é estática; ela forma uma rede tubular reticular contínua que passa por constantes eventos de remodelagem:
- Fusão Mitocondrial (Mfn1, Mfn2 e Opa1): Fusão de duas organelas mediada pelas Mitofusinas 1 e 2 (Mfn1/2) na membrana externa e pela Opa1 na membrana interna. Permite o compartilhamento de mtDNA intacto, proteínas funcionais e metabólitos, resgatando mitocôndrias parcialmente lesionadas e otimizando a produção energética.
- Fissão Mitocondrial (Drp1 e Fis1): Divisão de uma mitocôndria em duas, coordenada pelo recrutamento da proteína citosólica Drp1 (Dynamin-Related Protein 1) para receptores na membrana externa (Fis1, Mff). A fissão é indispensável para segregar segmentos disfuncionais e hiperpolarizados da organela.
- Mitofagia (Eixo PINK1 / Parkin): Processo de autofagia seletiva que elimina mitocôndrias despolarizadas e irreversivelmente danificadas. Quando uma mitocôndria perde seu potencial de membrana (Δ Psi_m), a quinase PINK1 acumula-se na membrana externa, fosforilando a ubiquitina e recrutando a ligase de ubiquitina Parkin. O organelo marcado é envelopado por um autofagossomo e fundido ao lisossomo para degradação hidrolítica, prevenindo o vazamento de citocromo c e a apoptose celular.
2. O Maestro da Biogênese: O Coativador Transcricional PGC-1α
A capacidade celular de gerar novas mitocôndrias saudáveis para substituir as organelas degradadas pela mitofagia é governada pelo coativador transcricional PGC-1α. Descoberto originalmente em 1998 pelo laboratório de Bruce Spiegelman em Harvard como um fator induzido pelo frio no tecido adiposo marrom, o PGC-1α é hoje reconhecido como o nó regulatório mestre do metabolismo oxidativo em miócitos, hepatócitos, cardiomiócitos e adipócitos.
O PGC-1α não se liga diretamente ao DNA; ele atua acoplando-se e coativando fatores de transcrição específicos, remodelando a cromatina através de atividade intrínseca de histona acetiltransferase e recrutando a RNA Polimerase II.
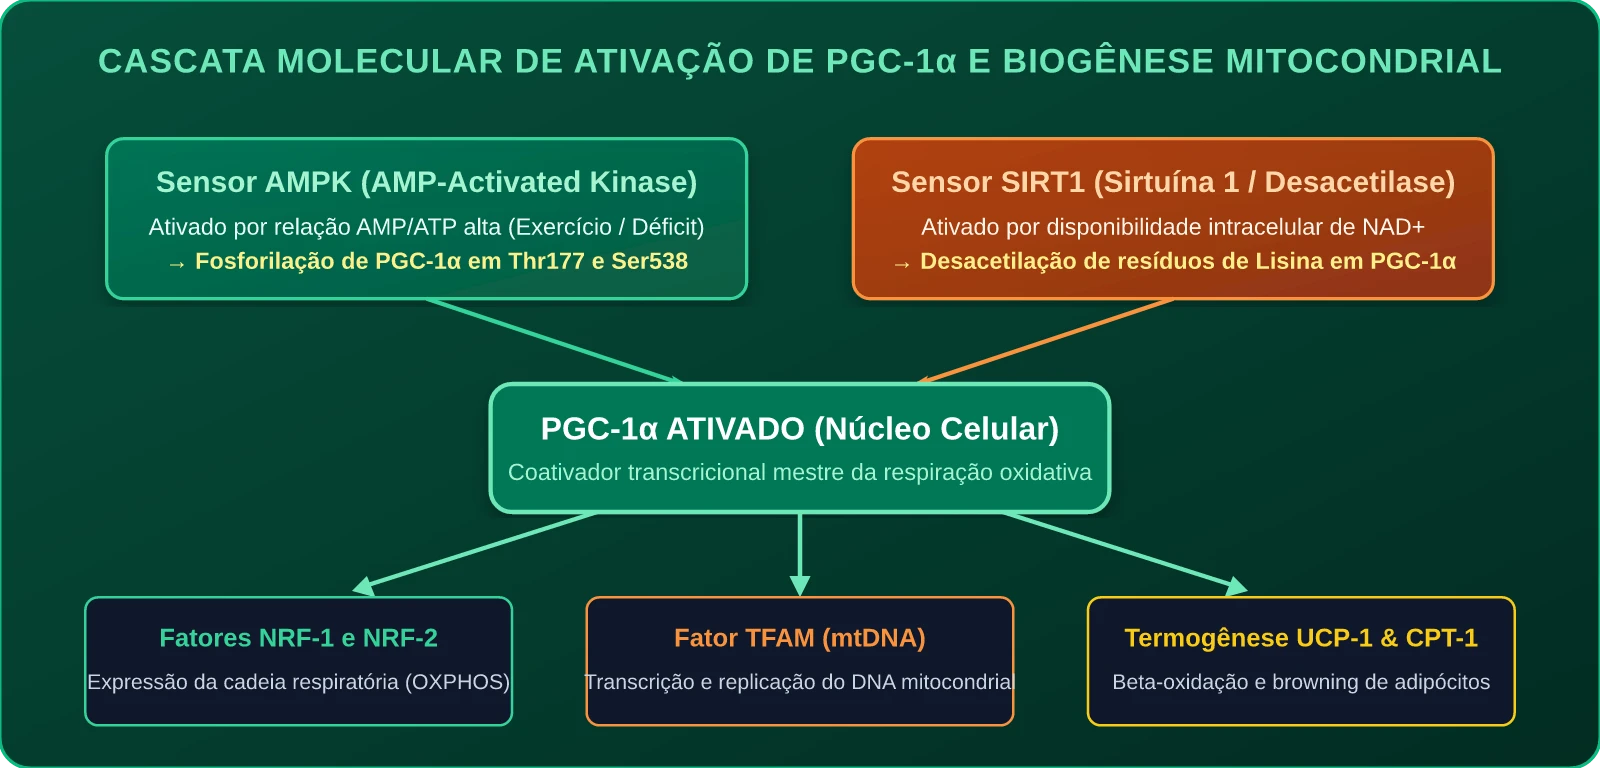
2.1. O Mecanismo de Ativação Dupla: Fosforilação por AMPK e Desacetilação por SIRT1
No estado basal de repouso e abundância calórica, o PGC-1α permanece inativo no citosol, hiperacetilado pela acetiltransferase GCN5. Para que ocorra a translocação para o núcleo e a coativação gênica, são necessárias duas modificações pós-traducionais sinérgicas:
- Fosforilação Prévia via AMPK: Em situações de estresse energético (queda na relação ATP/AMP induzida por contração muscular, jejum ou frio), a AMPK (AMP-Activated Protein Kinase) é fosforilada e ativada. A AMPK fosforila diretamente o PGC-1α nos resíduos Treonina-177 (Thr177) e Serina-538 (Ser538). Essa fosforilação é um pré-requisito conformacional para a ação subsequente da SIRT1.
- Desacetilação Dependente de NAD+ via SIRT1: A Sirtuína 1 (SIRT1) é uma desacetilase de histonas e proteínas dependente estritamente da coenzima $NAD^+$. Quando a relação intracelular $NAD^+/NADH$ se eleva, a SIRT1 remove múltiplos grupos acetil de resíduos de lisina do PGC-1α, promovendo sua ativação funcional plena e migração nuclear.
2.2. A Cascata Transcricional a Jusante: NRF-1, NRF-2 e TFAM
Uma vez no núcleo celular, o PGC-1α ativado dispara uma sequência hierárquica de eventos de expressão gênica:
- Coativação de NRF-1 e NRF-2 (Nuclear Respiratory Factors 1 e 2): Esses fatores de transcrição estimulam os promotores nucleares que codificam a vasta maioria das subunidades proteicas da cadeia respiratória (Complexos I a V), as enzimas do ciclo de Krebs e os transportadores da membrana mitocondrial.
- Indução do TFAM (Mitochondrial Transcription Factor A): NRF-1 e NRF-2 ativam diretamente a transcrição do gene que codifica o TFAM.
- Replicação do DNA Mitocondrial (mtDNA): A proteína TFAM é sintetizada no citosol, translocada para a matriz mitocondrial através dos complexos TOM/TIM e liga-se diretamente aos promotores do mtDNA, disparando a transcrição e replicação autônoma do genoma mitocondrial (que codifica 13 proteínas essenciais da cadeia respiratória, 22 tRNAs e 2 rRNAs).
3. Diferenciação Adiposa: Tecido Adiposo Branco (WAT), Bege (Brite) e Marrom (BAT)
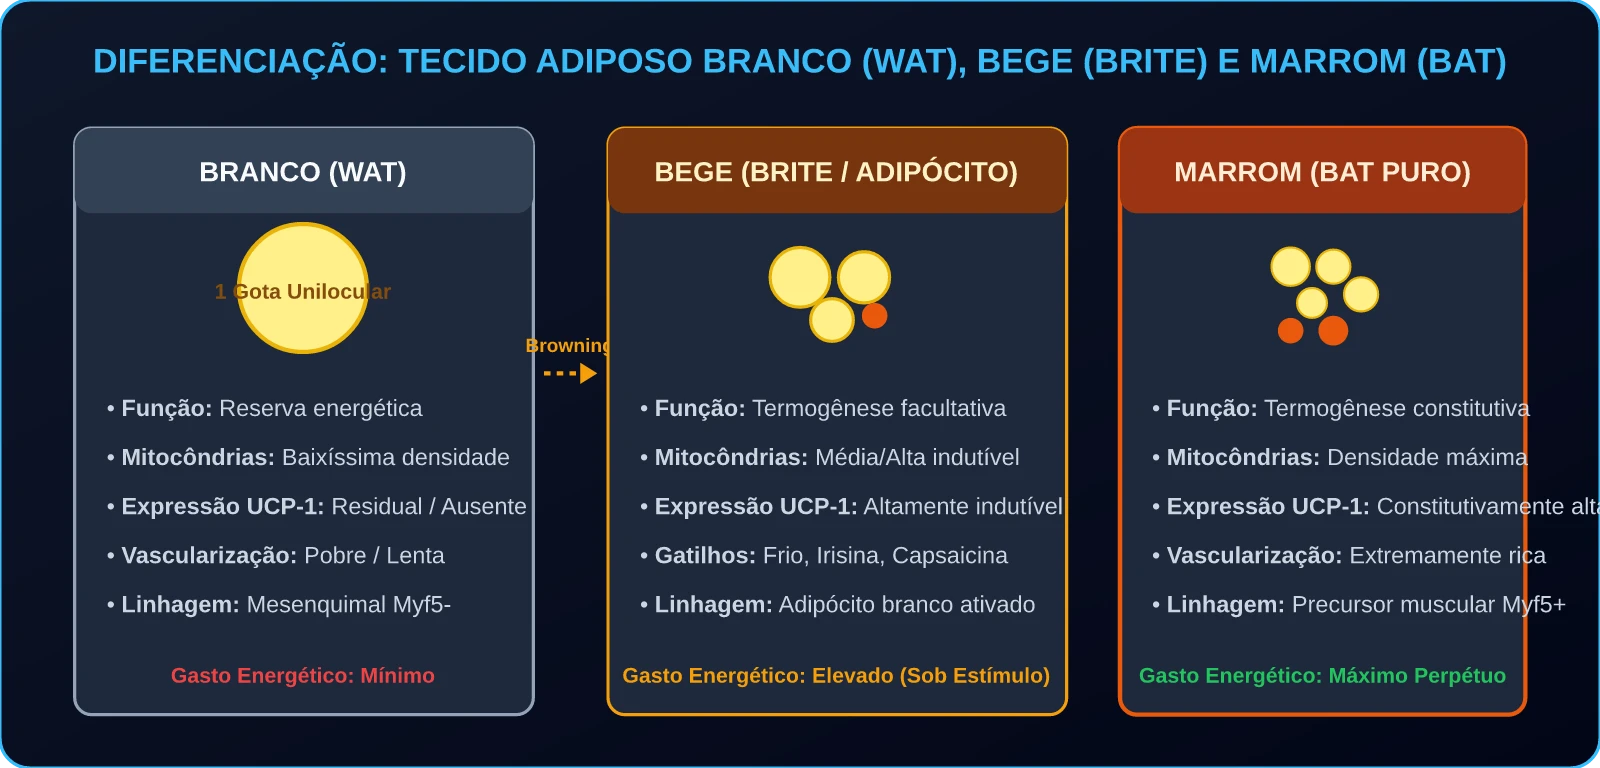
Historicamente, o tecido adiposo foi classificado como uma estrutura homogênea de armazenamento lipídico. No entanto, a biologia contemporânea demonstrou a existência de três tipos distintos de adipócitos, com origens embriológicas, ultraestruturas e perfis metabólicos profundamente divergentes:
3.1. Tecido Adiposo Branco (WAT – White Adipose Tissue)
- Morfologia: Células grandes (50 a 150 μm) contendo uma única gotícula lipídica unilocular de triglicerídeos que comprime o núcleo contra a periferia celular.
- Densidade Mitocondrial: Baixíssima densidade de mitocôndrias; cristas esparsas e fragmentadas. Expressão de UCP-1 é residual ou indetectável.
- Função Primária: Armazenamento de excedente calórico na forma de gordura neutra e secreção de adipocinas (leptina, resistina, adiponectina).
- Vascularização e Inervação: Pobre vascularização capilar e escassa inervação simpática.
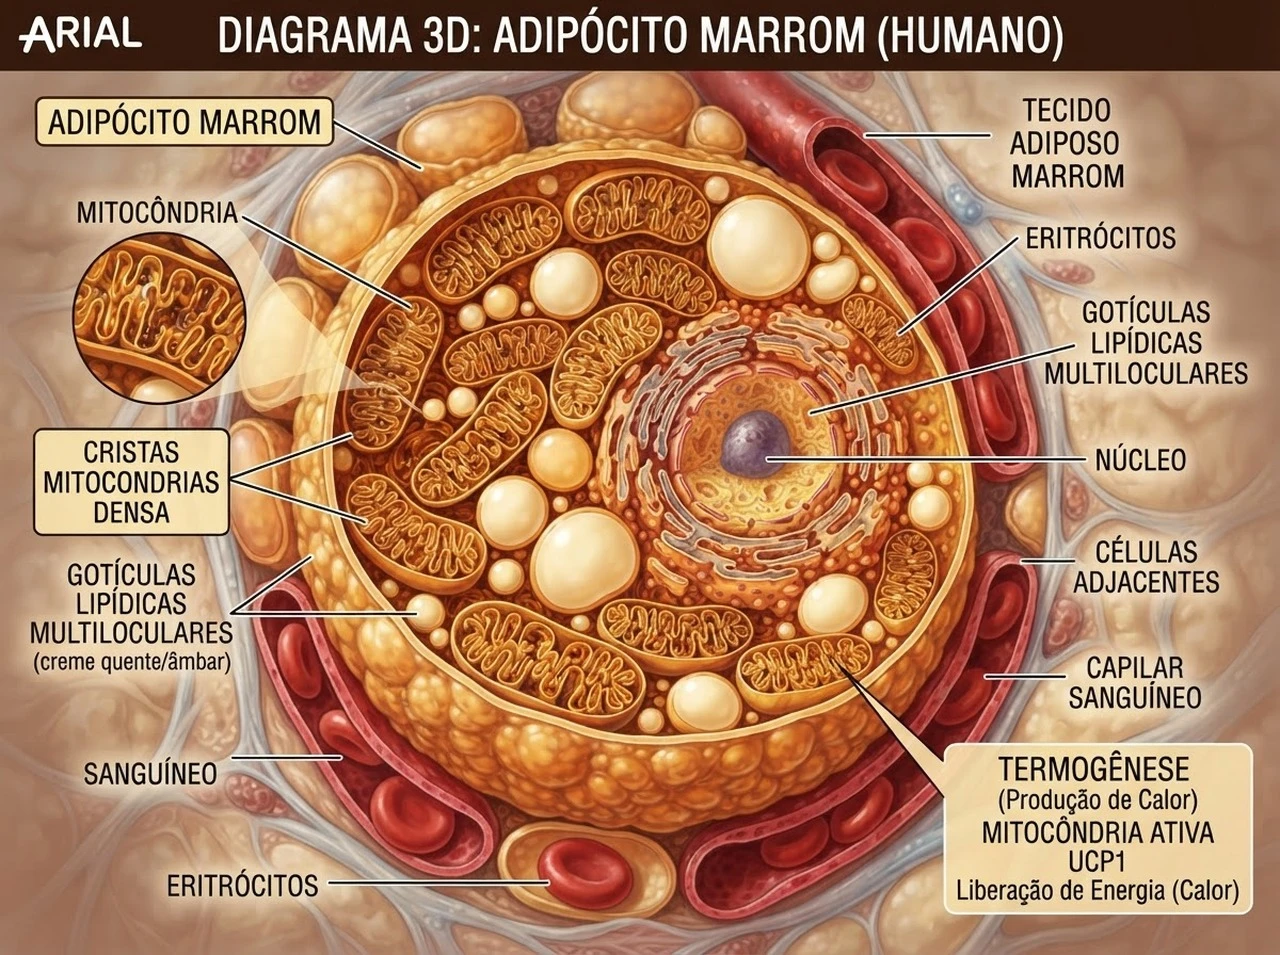
3.2. Tecido Adiposo Marrom (BAT – Brown Adipose Tissue)
- Origem Embriológica: Deriva de células precursoras mesenquimais que expressam o fator de transcrição Myf5+, a mesma linhagem celular que dá origem ao tecido muscular esquelético (miócitos), e não da linhagem adipogênica branca.
- Morfologia: Células menores (15 a 40 μm) contendo múltiplas gotículas lipídicas multiloculares que facilitam o acesso enzimático da lipase hormônio-sensível (HSL).
- Densidade Mitocondrial: Densidade mitocondrial extrema; as mitocôndrias ocupam até 40% do volume citoplasmático e possuem cristas densamente empacotadas. A rica presença de citocromos contendo ferro na cadeia respiratória confere a coloração marrom avermelhada macroscópica característica do tecido.
- Função Primária: Termogênese constitutiva sem tremor através da queima rápida de glicose e ácidos graxos livres.
- Localização no Adulto: Depósitos anatômicos específicos preservados nas regiões supraclavicular, paravertebral, mediastinal e perirrenal.
3.3. Tecido Adiposo Bege (Brite – Brown in White)
- Conceito: Adipócitos com características marrons induzíveis que residem difusamente no interior dos depósitos de tecido adiposo branco subcutâneo (especialmente inguinal).
- O Processo de Browning (Escurecimento): Sob estímulo crônico de frio, contração muscular ou agonistas beta-adrenérgicos, precursores estromais e adipócitos brancos maduros sofrem transdiferenciação fenotípica (browning), multiplicando suas mitocôndrias e ativando maciçamente a expressão de UCP-1.
- Plasticidade Reversível: Na ausência continuada de estímulos termogênicos, os adipócitos bege podem sofrer “branqueamento” (whitening), revertendo à morfologia unilocular de armazenamento.
Tabela 1: Matriz Comparativa Morfológica, Genética e Funcional dos Tecidos Adiposos
| Parâmetro de Avaliação | Adipócito Branco (WAT) | Adipócito Bege (Brite) | Adipócito Marrom (BAT Puro) |
|---|---|---|---|
| Morfologia Lipídica | Unilocular (1 grande gota central) | Multilocular (sob estímulo ativo) | Multilocular (gotículas dispersas) |
| Densidade de Mitocôndrias | Baixa (< 5% do volume citosólico) | Média a Alta (altamente induzível) | Máxima (30% a 45% do volume) |
| Expressão Basal de UCP-1 | Nula ou Próxima de Zero | Baixa em repouso / Altíssima sob estímulo | Constitutivamente Elevada |
| Origem Pré-Adipocitária | Linhagem Mesenquimal Myf5- | Transdiferenciação de WAT / Myf5- | Linhagem Miogênica Myf5+ |
| Inervação Noradrenérgica | Esparsa / Baixa densidade | Moderada | Extremamente Densa (Fibras do SNA) |
| Vascularização Capilar | Pobre (1 capilar por adipócito) | Intermediária / Densificação rápida | Altíssima (Fluxo sanguíneo intenso) |
| Fator Transcricional Chave | PPARγ e C/EBPα | PRDM16, PGC-1α e C/EBPβ | PRDM16, PGC-1α e EBF2 |
| Destino do Substrato | Esterificação e Armazenamento | Oxidação Facilitada / Calor | Dissipação Térmica Máxima |
4. A Proteína Desacopladora 1 (UCP-1 / Termogenina): Mecânica Biofísica
A UCP-1 (Uncoupling Protein 1), originalmente denominada termogenina, é uma proteína transportadora transmembrana homodímera de 32 kDa inserida exclusivamente na membrana mitocondrial interna de adipócitos termogênicos.
4.1. Quebra da Força Próton-Motriz e Produção Pura de Calor
Em mitocôndrias acopladas padrão (como no músculo esquelético ou fígado em repouso), a entrada de prótons ($H^+$) na matriz está estritamente condicionada à rotação catalítica da ATP Sintase. Se a célula não estiver consumindo ATP (gerando ADP), o gradiente de prótons atinge um platô eletroquímico máximo que bloqueia retrogradamente o fluxo de elétrons na cadeia respiratória.
A UCP-1 funciona como uma válvula de alívio biofísica:
- Ao ser ativada, a UCP-1 forma um canal carreador específico que permite que os prótons $H^+$ acumulados no espaço intermembrana fluam livremente de volta para a matriz a favor do seu gradiente químico.
- A passagem dos prótons através da UCP-1 contorna completamente a ATP Sintase.
- A energia potencial eletroquímica acumulada pela queima de glicose e ácidos graxos não é armazenada em ligações de fosfato de ATP, sendo dissipada instantaneamente sob a forma de calor cinético puro.
4.2. Regulação Alostérica: O Papel dos Ácidos Graxos Livres e dos Nucleotídeos de Purina
Em estado basal e temperaturas neutras, a UCP-1 é mantida alostericamente inibida por nucleotídeos de purina citosólicos, primariamente o ATP e o ADP livres, que se ligam ao domínio citosólico da proteína impedindo a translocação de prótons.
O destravamento da UCP-1 exige a presença de Ácidos Graxos Livres de Cadeia Longa (LCFAs) no interior da mitocôndria. Os ácidos graxos atuam ligando-se a sítios específicos da UCP-1, superando a inibição por ATP e transportando prótons diretamente acoplados aos grupos carboxila lipídicos. Assim que a lipólise intracelular é deflagrada pelo sistema nervoso simpático, a torrente de ácidos graxos livres remove a trava da UCP-1 e fornece simultaneamente o combustível para a beta-oxidação acelerada.
5. Vias Endócrinas e Sinalização Fisiológica para Ativação do BAT
A ativação do tecido adiposo marrom e o escurecimento do tecido branco respondem a estímulos neuroendócrinos precisos acionados pelo estresse térmico, esforço físico e sinalização tireoidiana:
5.1. O Eixo Simpático: Norepinefrina e Receptores β3-Adrenérgicos
O estímulo primário para a termogênese é a ativação de termorreceptores cutâneos e centrais pelo frio, processados no hipotálamo ventromedial e no núcleo arqueado. O hipotálamo dispara eferências simpáticas que inervam diretamente os lóbulos de adipócitos marrons, liberando Norepinefrina (Noradrenalina):
- A norepinefrina liga-se a receptores β3-adrenérgicos (e β1 em humanos) acoplados à proteína G estimulatória ($G_s$).
- Ocorre ativação da enzima Adenilato Ciclase, gerando elevação maciça nos níveis citosólicos de AMP cíclico (cAMP).
- O cAMP ativa a Proteína Quinase A (PKA), que desempenha duas ações simultâneas:
- Ação Aguda (Lipólise): Fosforila a Perilipina-1 e a Lipase Hormônio-Sensível (HSL), fragmentando os triglicerídeos multiloculares em ácidos graxos livres que ativam diretamente o canal da UCP-1.
- Ação Crônica (Transcrição): Fosforila o fator de transcrição CREB e ativa quinases p38 MAPK, que se ligam ao promotor do gene Ucp1 e Ppargc1a, amplificando a síntese de novas proteínas UCP-1 e receptores mitocondriais.
5.2. A Irisina: A Miocina do Exercício Físico que Conecta Músculo e Gordura
Durante a contração muscular vigorosa, o aumento de PGC-1α nas fibras musculares esqueléticas estimula a transcrição da proteína transmembrana FNDC5 (Fibronectin Type III Domain-Containing Protein 5).
A porção extracelular da FNDC5 sofre clivagem proteolítica específica e é liberada na circulação sistêmica como um hormônio peptídico denominado Irisina:
- A irisina viaja até os depósitos de tecido adiposo branco subcutâneo.
- Ao ligar-se a receptores de integrina da família α_V nos pré-adipócitos brancos, a irisina ativa cascatas de p38 MAPK e ERK, reprogramando o perfil de expressão gênica e induzindo o browning maciço sem necessidade de exposição ao frio.
5.3. A Sinergia com os Hormônios Tireoidianos (T3 e Deiodinases)
A ação termogênica no BAT é estritamente dependente da presença do hormônio tireoidiano ativo Triiodotironina ($T_3$). O adipócito marrom expressa em níveis abundantes a enzima Deiodinase Tipo 2 (D2 / DIO2).
Quando o receptor β-adrenérgico é estimulado pela noradrenalina, ocorre superexpressão imediata de D2, que converte localmente a Tiroxina circulante ($T_4$) em $T_3$ livre intracelular. O $T_3$ liga-se aos receptores nucleares tireoidianos (TRβ), que formam heterodímeros com o RXR e ligam-se ao elemento de resposta tireoidiana (TRE) no promotor de Ucp1, atuando em cooperação obrigatória com o PGC-1α para permitir a transcrição máxima da termogenina.
6. Protocolos Clínicos de Otimização Mitocondrial Baseados em Evidências
A amplificação do pool mitocondrial e a reativação funcional do tecido adiposo marrom em humanos adultos exigem intervenções multimodais calculadas que combinem estressores horméticos térmicos, demanda mecânica de contração e suporte de coenzimas bioenergéticas.
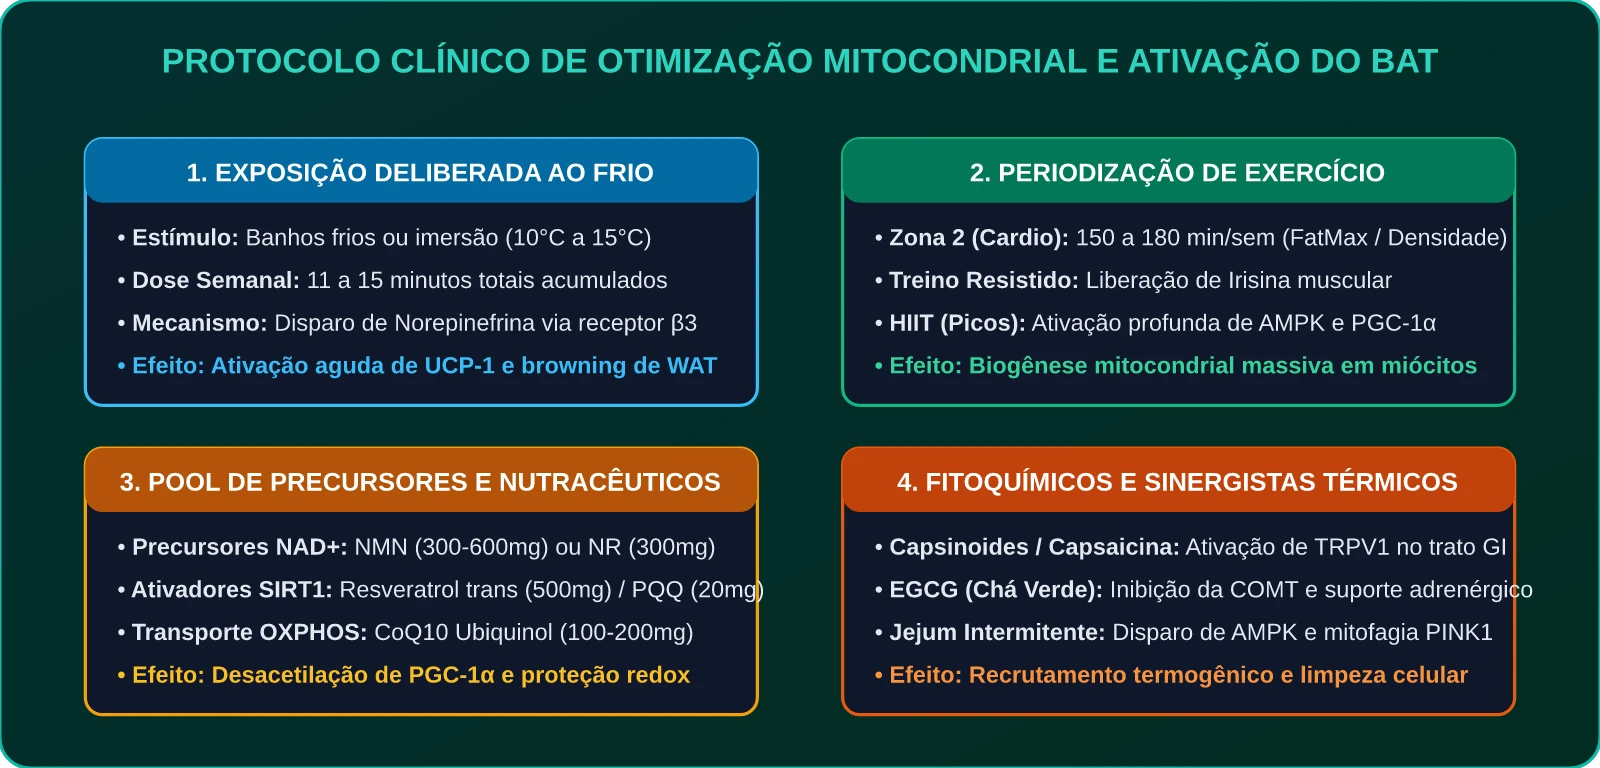
6.1. Exposição Deliberada ao Frio (Cold Exposure Protocols)
Pesquisas conduzidas por centros de medicina metabólica na Escandinávia e nos EUA (estudos de Søberg et al., 2021) demonstraram que a exposição periódica ao frio eleva o gasto energético diário em até 150 a 250 kcal/dia por meio do recrutamento sustentado do BAT:
- Parâmetros de Dose Semanal: Mínimo de 11 minutos totais por semana, distribuídos em 2 a 4 sessões de 2 a 5 minutos.
- Intensidade Térmica: Imersão em água fria (10°C a 15°C) ou duchas frias não confortáveis ao término do banho. O limiar fisiológico eficaz é a sensação de frio desconfortável que induz vontade de respirar fundo sem atingir o tremor incontrolável (shivering).
- Regra Pós-Exposição: Permitir que o corpo reaqueça de forma endógena através da termogênese autonômica; evitar entrar imediatamente em saunas quentes ou vestir agasalhos pesados nos primeiros 10 minutos após o estímulo para prolongar o consumo calórico do BAT.
6.2. Periodização do Exercício: Zona 2 e HIIT
A adaptação mitocondrial no músculo esquelético ocorre por dois mecanismos complementares que dependem da intensidade metabólica:
- Treinamento de Resistência em Zona 2 (FatMax):
- Definição: Exercício contínuo em intensidade correspondente à taxa máxima de oxidação lipídica (geralmente entre 60% e 70% da frequência cardíaca máxima ou concentração de lactato sanguíneo mantida estavelmente entre 1,5 e 2,0 mmol/L).
- Dose Recomendada: 150 a 180 minutos semanais (sessões de 45 a 60 minutos).
- Efeito Biológico: Maximiza a densidade de cristas mitocondriais e a expressão das enzimas da beta-oxidação (CPT-1 e citocromo c), aprimorando a capacidade de queimar gordura em repouso.
- Treino Intervalado de Alta Intensidade (HIIT / Sprint Interval Training):
- Definição: Sprints de 20 a 30 segundos em esforço máximo supramáximo intercalados por recuperação passiva ou ativa.
- Dose Recomendada: 1 a 2 sessões semanais de 15 a 20 minutos.
- Efeito Biológico: Induz queda severa e aguda no ATP citosólico, gerando pico máximo de ativação de AMPK e fosforilação imediata de PGC-1α.
6.3. Painel de Nutracêuticos Moduladores da Bioenergética e Biogênese
| Composto Bioativo | Mecanismo Celular de Ação Primário | Dosagem Clínica Típica | Impacto Metabólico Documentado |
|---|---|---|---|
| Mononucleotídeo de Nicotinamida (NMN) / Ribosídeo de Nicotinamida (NR) | Elevação direta dos níveis intracelulares de $NAD^+$, fornecendo substrato mandatório para a ativação da desacetilase SIRT1 | 300 mg a 600 mg ao dia (pela manhã) | Desacetilação de PGC-1α; restauração da relação NAD+/NADH |
| Trans-Resveratrol Micronizado | Ativador alostérico direto de SIRT1 e mimético de restrição calórica | 250 mg a 500 mg com fonte de gordura | Estímulo sinérgico da biogênese mitocondrial e proteção redox |
| Pirroloquinolina Quinona (PQQ) | Fator de transcrição redox que estimula a fosforilação de CREB e a transcrição direta de PGC-1α | 10 mg a 20 mg ao dia | Estímulo à formação de novas mitocôndrias em células senescentes |
| Coenzima Q10 (Ubiquinol) | Carreador lipídico de elétrons entre o Complexo I/II e o Complexo III na membrana interna | 100 mg a 200 mg ao dia | Otimização do fluxo da cadeia respiratória e redução do vazamento de ROS |
| Ácido Alfa-Lipóico (R-ALA) | Cofator enzimático essencial de desidrogenases mitocondriais (PDH e α-KGDH) e potente antioxidante de matriz | 300 mg a 600 mg ao dia | Aumento da captação de glicose e proteção contra peroxidação lipídica |
| Capsinoides / Capsaicina | Agonista potente de receptores de potencial transitório vaniloide 1 (TRPV1) no trato digestivo | 2 mg a 6 mg de capsinoides antes das refeições | Estímulo reflexo da inervação simpática e ativação de UCP-1 no BAT |
7. Perguntas Frequentes (FAQ)
1. Todos os adultos possuem tecido adiposo marrom funcional?
Estudos de tomografia por emissão de pósitrons acoplada à tomografia computadorizada (PET-CT com 18F-FDG) comprovavam originalmente que bebês possuem alta densidade de BAT para termorregulação. Nas últimas duas décadas, demonstrou-se conclusivamente que humanos adultos preservam depósitos funcionais ativos de BAT (especialmente nas regiões supraclavicular e cervical profunda). Contudo, a massa e a atividade metabólica desse tecido diminuem significativamente com o envelhecimento, sedentarismo e obesidade, podendo ser reativadas e expandidas via estímulos crônicos de frio e exercício.
2. Qual a diferença fundamental entre a biogênese induzida por PGC-1α e a termogênese induzida por UCP-1?
A biogênese mitocondrial é o processo de multiplicação e maturação estrutural de novas mitocôndrias, aumentando a capacidade total da célula de oxidar combustíveis e gerar ATP. A termogênese via UCP-1 é um processo funcional onde as mitocôndrias (especialmente em adipócitos marrons e bege) dissipam o gradiente energético sob a forma de calor em vez de produzir ATP. Ambos os processos trabalham em conjunto: o PGC-1α estimula tanto a formação de novas mitocôndrias quanto a transcrição do próprio gene da UCP-1.
3. Fazer banhos frios após o treino de hipertrofia muscular prejudica os ganhos de massa?
Sim, se a imersão for realizada imediatamente após o treino de força. A imersão em água fria nas primeiras 4 horas após a musculação suprime a sinalização da via anabólica mTORC1 e atenua a resposta inflamatória estéril necessária para o reparo e hipertrofia miofibrilar. Para usufruir da ativação de BAT e UCP-1 sem comprometer a hipertrofia, realize as sessões de frio em horários distantes do treino (pela manhã ao acordar ou em dias de descanso).
4. A suplementação com precursores de NAD+ (NMN ou NR) substitui o exercício físico?
Não. Embora compostos como NMN e NR aumentem a disponibilidade de $NAD^+$ para que a SIRT1 desacetile o PGC-1α, a fosforilação prévia do coativador pela AMPK nos resíduos Thr177/Ser538 depende da demanda energética real gerada pela contração muscular ou restrição calórica. Os precursores de NAD+ atuam como potencializadores bioquímicos das vias ativadas pelo exercício, e não como substitutos funcionais do trabalho mecânico celular.
5. Como a qualidade do sono interfere na saúde mitocondrial e na função do BAT?
Durante as fases de sono profundo (NREM de ondas lentas), ocorre a maior taxa de liberação de hormônio do crescimento (GH) e ativação de cascatas de autofagia/mitofagia no sistema nervoso central e tecidos periféricos. A privação crônica de sono eleva o cortisol noturno, que inibe a transcrição de UCP-1, estimula a lipogênese visceral unilocular branca e eleva o estresse oxidativo mitocondrial por desacoplamento desregulado.
Referências Bibliográficas e Literatura Científica
- PUIGSERVER, Pere; SPIEGELMAN, Bruce M. Peroxisome proliferator-activated receptor-gamma coactivator 1 alpha (PGC-1 alpha): transcriptional coactivator and metabolic regulator. Endocrine Reviews, v. 24, n. 1, p. 78-90, 2003. DOI: 10.1210/er.2002-0012.
- CANNON, Barbara; NEDERGAARD, Jan. Brown adipose tissue: function and physiological significance. Physiological Reviews, v. 84, n. 1, p. 277-359, 2004. DOI: 10.1152/physrev.00015.2003.
- BOSTROM, Pontus et al. A PGC1-α-dependent myokine that drives brown-fat-like development of white fat and thermogenesis. Nature, v. 481, n. 7382, p. 463-468, 2012. DOI: 10.1038/nature10777.
- CYPESS, Aaron M. et al. Identification and importance of brown adipose tissue in adult humans. The New England Journal of Medicine, v. 360, n. 15, p. 1509-1517, 2009. DOI: 10.1056/NEJMoa0810780.
- CANTO, Carles et al. AMPK regulates energy expenditure by modulating NAD+ metabolism and SIRT1 activity. Nature, v. 458, n. 7241, p. 1056-1060, 2009. DOI: 10.1038/nature07813.
- SØBERG, Susanna et al. Altered brown fat thermoregulation and enhanced cold-induced thermogenesis in young, healthy, winter-swimming men. Cell Reports Medicine, v. 2, n. 10, p. 100408, 2021. DOI: 10.1016/j.xcrm.2021.100408.
- LAKER, Rhianna C. et al. Ampk phosphorylation of Ulk1 is required for targeting of mitochondria to lysosomes in exercise-induced mitophagy. Nature Communications, v. 8, n. 1, p. 548, 2017. DOI: 10.1038/s41467-017-00520-9.
- FEDORENKO, A. et al. Mechanism of fatty-acid-dependent UCP1 uncoupling in brown fat mitochondria. Cell, v. 151, n. 2, p. 400-413, 2012. DOI: 10.1016/j.cell.2012.09.010.
Carregando comentários…