Microbiota Intestinal, Eixo Intestino-Cérebro e Sinalização Incretínica (GLP-1/GIP): A Ciência da Modulação de Fibras Prebióticas, Pós-Bióticos e Saciedade
Neste artigo
- 1. O Ecossistema da Microbiota Intestinal: Taxonomia, Eubiose e Extração Calórica
- 2. O Eixo Intestino-Cérebro: Comunicação Neuroendócrina Bidirecional
- 3. Sinalização Incretínica Endógena: A Fisiologia das Células L e K
- 4. Ácidos Graxos de Cadeia Curta (SCFAs): O Elo Bioquímico da Saciedade
- 5. Integridade da Barreira Epitelial e Endotoxemia Metabólica
- 6. O Papel Estratégico da Akkermansia muciniphila
- 7. Protocolo Clínico Nutricional Baseado em Evidências
- 8. Tabela Comparativa de Fibras e Capacidade de Estímulo Incretínico
- 9. Perguntas Frequentes (FAQ)
- Referências Bibliográficas e Literatura Científica
A regulação do apetite, do balanço energético e da sensibilidade metabólica no organismo humano não é determinada unicamente por centros neurais superiores no cérebro ou pela força de vontade consciente. Nas últimas duas décadas, a biologia molecular e a metagenômica revelaram que o trato gastrointestinal abriga um ecossistema complexo e metabolicamente ativo composto por mais de 38 trilhões de microrganismos — a microbiota intestinal.
Longe de ser uma comunidade passiva de comensais, a microbiota funciona como um verdadeiro órgão endócrino virtual, pesando cerca de 1,5 a 2,0 kg e expressando mais de 3 milhões de genes únicos (mais de 150 vezes o número de genes do genoma humano). Esse coletivo bacteriano atua como um transdutor bioenergético que converte substratos não digeríveis da dieta em moléculas biologicamente ativas capazes de regular a expressão gênica do hospedeiro.
Dentre os sistemas mais refinados governados por essa simbiose encontra-se o Eixo Intestino-Cérebro (Gut-Brain Axis) e o controle da sinalização incretínica endógena, particularmente a secreção do GLP-1 (Glucagon-Like Peptide-1) e do PYY (Peptídeo YY) por células enteroendócrinas especializadas.
Enquanto a medicina contemporânea assiste à proliferação de análogos sintéticos potentes de GLP-1 e GIP no tratamento da obesidade, a ciência nutricional translacional demonstra que a estimulação fisiológica, pulsátil e sinérgica dessas mesmas vias hormonais pode ser modulada de forma sustentável através da alimentação.
Neste artigo aprofundado, exploramos a taxonomia da microbiota eubiótica, as vias de comunicação do nervo vago, os mecanismos moleculares dos Ácidos Graxos de Cadeia Curta (SCFAs) sobre os receptores FFAR2 e FFAR3, o papel protetor da Akkermansia muciniphila, a fisiopatologia da endotoxemia metabólica e um protocolo clínico integrativo de prebióticos, pós-bióticos e polifenóis para a restauração da saciedade duradoura.
1. O Ecossistema da Microbiota Intestinal: Taxonomia, Eubiose e Extração Calórica
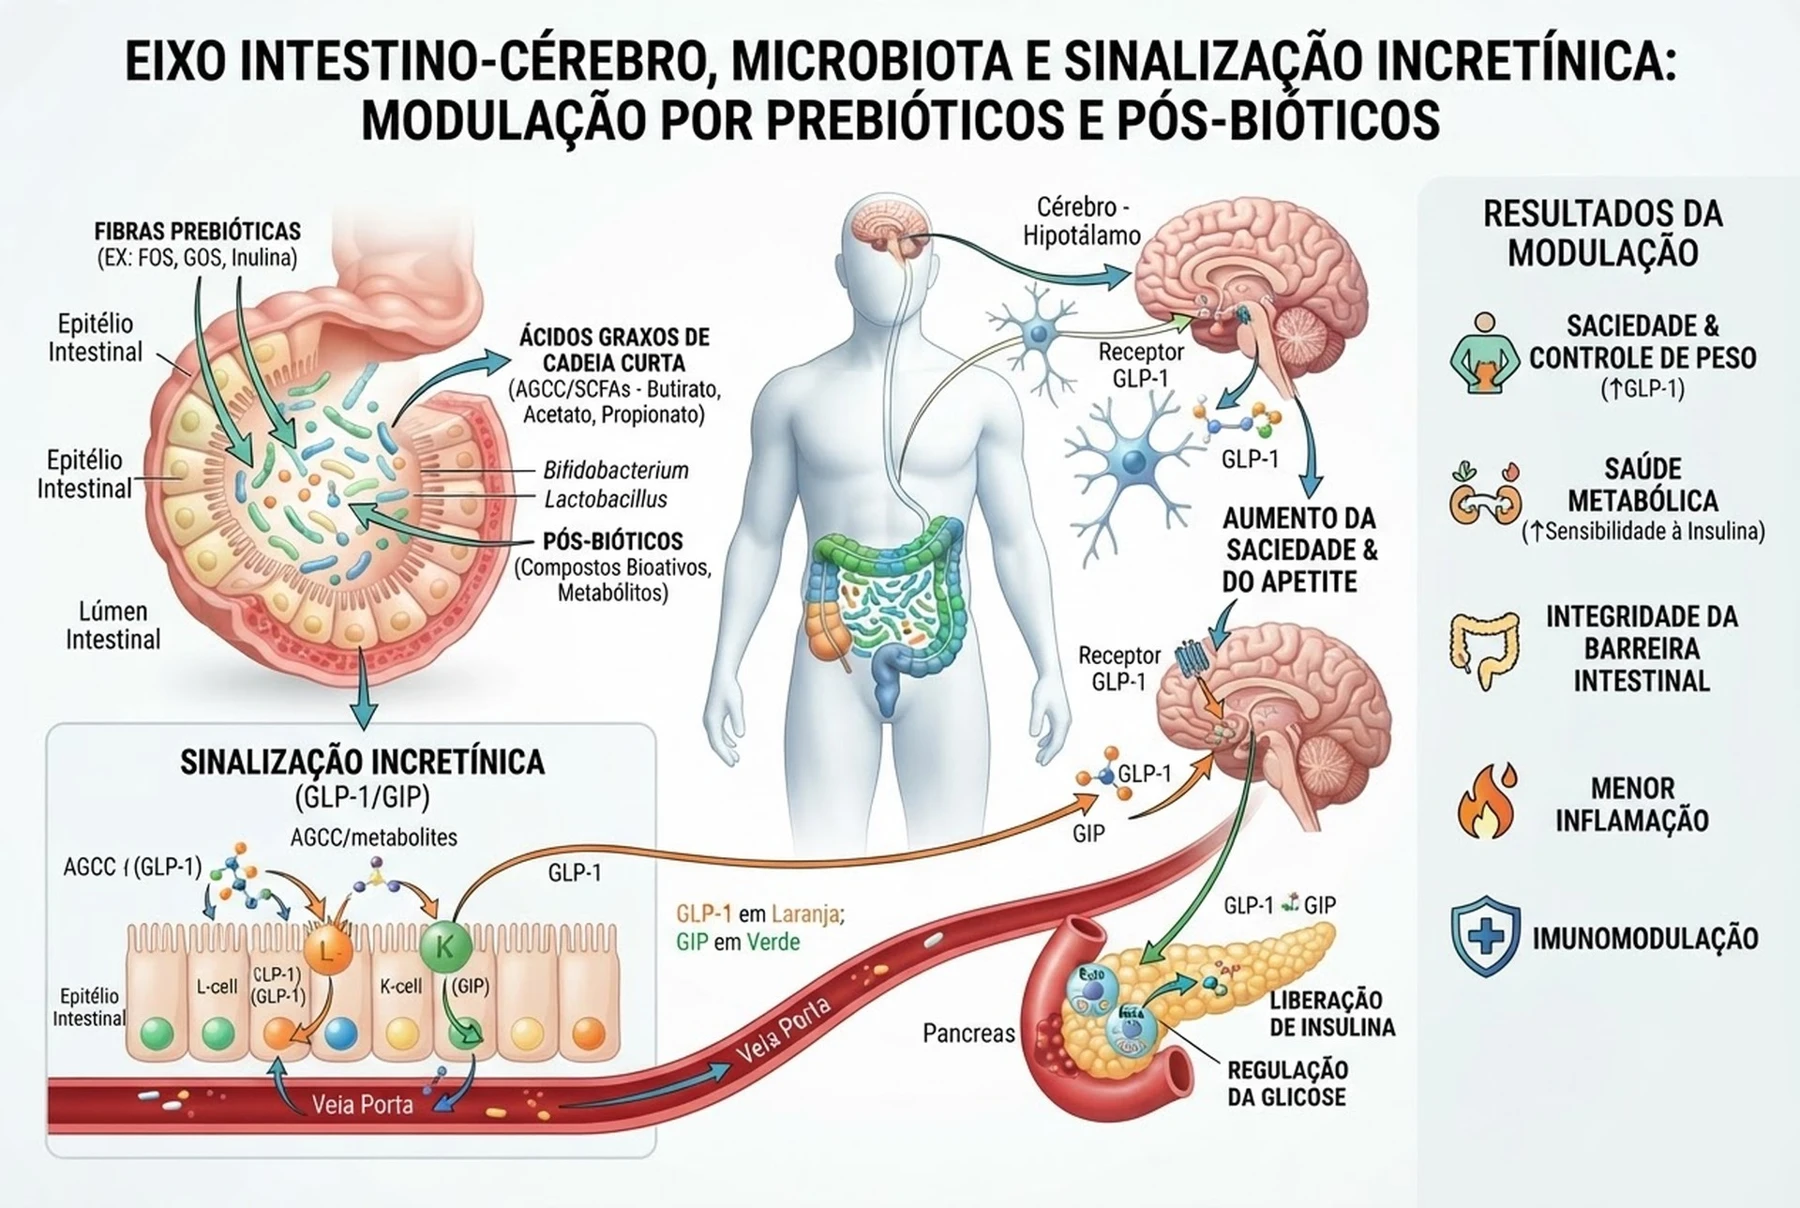
O trato gastrointestinal distal (especialmente o ceco e o cólon proximal) abriga a maior densidade biológica do planeta, com concentrações que ultrapassam 1011 a 1012 células bacterianas por grama de conteúdo luminal.
1.1. Filos Bacterianos Dominantes
A composição da microbiota humana saudável é predominantemente dominada por quatro grandes filos bacterianos:
- Bacteroidetes (aprox. 30% a 50%): Bactérias anaeróbias estritas gram-negativas (gêneros proeminentes incluem Bacteroides e Prevotella). São especialistas na quebra de polissacarídeos complexos e polímeros glicídicos resistentes através de um amplo repertório de enzimas que degradam carboidratos (CAZymes — Carbohydrate-Active enZymes).
- Firmicutes (aprox. 40% a 60%): Filo predominantemente gram-positivo, abrangendo famílias como Ruminococcaceae, Lachnospiraceae e Lactobacillaceae, além de espécies produtoras cruciais de butirato como Faecalibacterium prausnitzii, Roseburia intestinalis e Eubacterium rectale.
- Actinobacteria (aprox. 2% a 8%): Representadas centralmente pelo gênero Bifidobacterium (B. adolescentis, B. longum, B. bifidum), cruciais na infância e mantenedores da integridade da barreira epitelial e modulação imune ao longo da vida adulta.
- Verrucomicrobia (aprox. 1% a 5%): Representada principalmente por Akkermansia muciniphila, uma bactéria anaeróbia estrita especializada na degradação e renovação contínua da mucina que reveste o epitélio entérico.
1.2. Eubiose vs. Disbiose: O Impacto na Eficiência Energética da Dieta
Em estado de eubiose, existe alta riqueza filogenética e uniformidade ecológica (alpha-diversity elevada). Essa configuração garante resiliência contra patógenos oportunistas e otimiza a conversão de fibras em metabólitos sinalizadores de saciedade.
Por outro lado, a disbiose intestinal — comum no padrão alimentar ocidental (Western Diet), caracterizado por excesso de açúcares refinados, ácidos graxos saturados de cadeia longa e carência crônica de fibras fermentáveis — induz alterações metabólicas profundas:
- Desbalanço da Relação Firmicutes/Bacteroidetes (F/B): Estudos pioneiros liderados por Jeffrey Gordon na Universidade de Washington demonstraram que indivíduos com obesidade frequentemente exibem uma elevação na proporção de Firmicutes em relação a Bacteroidetes. A microbiota disbiótica possui enriquecimento de genes que codificam glicosídeo-hidrolases e polissacarídeo-liases, permitindo uma extração calórica suplementar de 100 a 150 kcal por dia a partir de resíduos alimentares que, em um indivíduo eubiótico, seriam excretados nas fezes.
- Redução da Biodiversidade: A monotonia alimentar contemporânea extingue cepas ancestrais fermentadoras, gerando um ambiente luminal com menor produção de butirato e maior pH, favorecendo o crescimento de Proteobacteria inflamatórias (como Escherichia coli enteroaderentes).
2. O Eixo Intestino-Cérebro: Comunicação Neuroendócrina Bidirecional
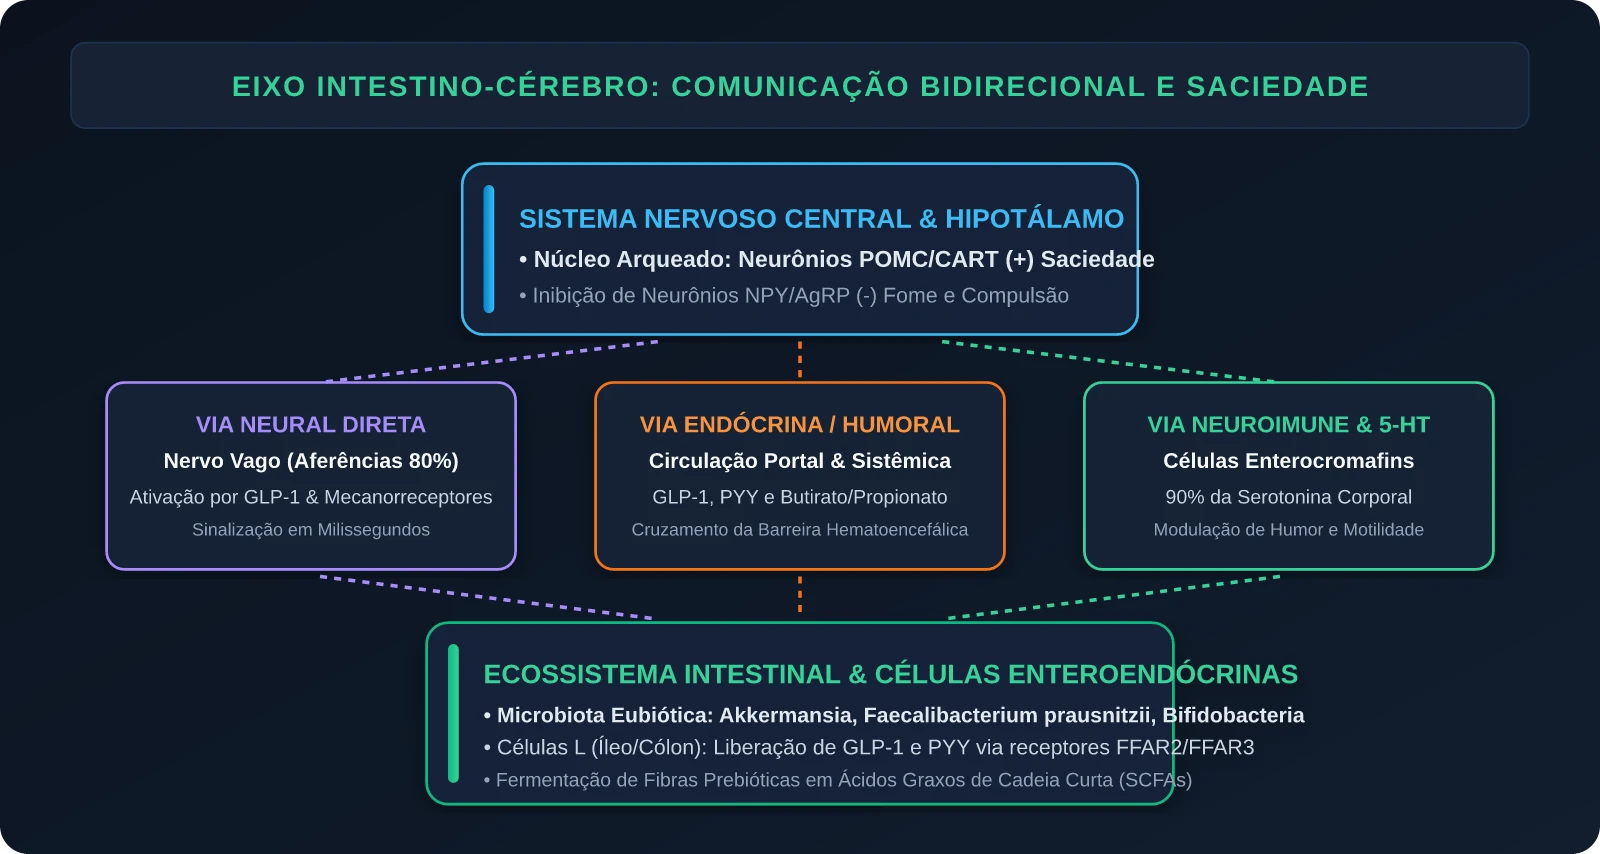
A comunicação entre a luz intestinal e o sistema nervoso central processa-se através de uma rede tridimensional contínua conhecida como Eixo Intestino-Cérebro (Gut-Brain Axis). Esse diálogo ocorre por meio de quatro canais integrados: neural, humoral/endócrino, imune e metabólico.
2.1. O Nervo Vago como Super-Rodovia de Sinalização
O Nervo Vago (décimo par craniano) é a espinha dorsal da transmissão neural aferente do trato gastrointestinal para o tronco encefálico. Cerca de 80% a 90% das fibras do nervo vago são fibras aferentes sensoriais, cuja função primordial é monitorar continuamente o ambiente químico, mecânico e osmótico do intestino e transmitir essas informações para o Núcleo do Trato Solitário (NTS).
As terminações nervosas vagais na lâmina própria intestinal não entram em contato direto com as bactérias no lúmen, mas estão posicionadas a micrômetros de distância das células enteroendócrinas basolaterais. Quando peptídeos como o GLP-1 e o PYY são liberados, eles se ligam a receptores específicos (GLP-1R e Y2R) expressos diretamente nos terminais nodosos do vago. Essa ligação despolariza as membranas neuronais e propaga potenciais de ação em milissegundos para o NTS, que subsequentemente projeta vias noradrenérgicas para o hipotálamo, disparando a cessação do apetite antes mesmo que os nutrientes atinjam a circulação sistêmica.
2.2. As Células Enterocromafins e a Fábrica de Serotonina (5-HT)
Embora a serotonina seja popularmente reconhecida como um neurotransmissor cerebral, mais de 90% a 95% de toda a serotonina corporal é sintetizada no trato gastrointestinal por células especializadas denominadas Células Enterocromafins (EC).
A síntese de serotonina mucosal a partir do aminoácido L-triptofano (via enzima triptofano hidroxilase 1 – TPH1) é dependente de sinais químicos bacterianos. Pesquisas demonstraram que camundongos livres de germes (germ-free) exibem reduções de até 60% nos níveis circulantes de serotonina e que a colonização intestinal por bactérias produtoras de metabólitos específicos (particularmente acetato e sais biliares secundários) restaura a expressão de TPH1 e a liberação fisiológica de 5-HT. A serotonina entérica coordena a velocidade do trânsito gastrointestinal, a secreção de fluidos e modula a sinalização de saciedade e náusea via receptores 5-$HT_3$ e 5-$HT_4$ no nervo vago.
3. Sinalização Incretínica Endógena: A Fisiologia das Células L e K
As incretinas são hormônios peptídicos liberados pela mucosa gastrointestinal em resposta à passagem de nutrientes, cuja função primordial é antecipar a resposta anabólica do organismo, aumentando a secreção de insulina dependente de glicose.
3.1. As Células L e a Produção de GLP-1, PYY e Oxitomodulina
As células L são células enteroendócrinas de morfologia aberta com microvilosidades apicais voltadas para a luz intestinal e vesículas secretórias basolaterais voltadas para a lâmina própria vascularizada. Embora estejam presentes em baixa densidade ao longo do duodeno e jejuno, exibem densidade máxima no íleo distal e no cólon:
O precursor proglucagon é processado nas células L pela enzima Pro-hormônio Convertase 1/3 (PC1/3), gerando GLP-1 biologicamente ativo (principalmente GLP-1 7-36 amida e GLP-1 7-37), oxitomodulina e glicentina, em co-secreção paralela com o peptídeo PYY.
- GLP-1 (Glucagon-Like Peptide-1): Atua no pâncreas aumentando a síntese e secreção de insulina de forma estritamente dependente de glicose e suprimindo a liberação inadequada de glucagon pelas células alfa. No estômago, o GLP-1 retarda o esvaziamento gástrico (efeito “freio gástrico”), reduzindo a velocidade de absorção de monossacarídeos e achatando as curvas glicêmicas pós-prandiais. No hipotálamo, ativa receptores GLP-1R promovendo saciedade precoce.
- PYY (Peptídeo Tirosina-Tirosina): Co-secretado em proporção equimolar com o GLP-1. Na corrente sanguínea, a enzima Dipeptil Peptidase-4 (DPP-4) cliva a forma inativa PYY (1-36) na forma biologicamente ativa PYY (3-36), um agonista seletivo do receptor Y2 (Y2R). O PYY atua como o principal mediador do freio ileal (ileal brake), desacelerando a motilidade de todo o trato digestivo superior quando nutrientes não digeridos atingem o íleo.
3.2. As Células K e o Polipeptídeo Inibitório Gástrico (GIP)
As células K localizam-se primordialmente no duodeno e jejuno proximal, liberando o GIP (Glucose-dependent Insulinotropic Polypeptide) em resposta rápida à absorção de glicose e triacilgliceróis. Em condições fisiológicas, o GIP atua em sinergia com o GLP-1 no pâncreas e possui receptores nos adipócitos e no tecido ósseo.
3.3. Estímulo Fisiológico Endógeno vs. Fármacos Sintéticos (Semaglutida / Tirzepatida)
Compreender a diferença entre a modulação nutricional e a intervenção farmacológica é essencial para a prática clínica:
| Característica | Estimulação Incretínica Endógena (Microbiota/Fibras) | Análogos Farmacológicos Exógenos (Semaglutida/Tirzepatida) |
|---|---|---|
| Níveis Plasmáticos | Picomolares fisiológicos (10 a 50 pmol/L) | Nanomolares suprafisiológicos (1.000x a 5.000x maiores) |
| Cinética de Liberação | Pulsátil, sincronizada com a digestão e fermentação | Contínua e platô permanente (meia-vida de 5 a 7 dias) |
| Perfil Hormonal | Co-secreção harmônica: GLP-1 + PYY + Oxitomodulina + SCFAs | Agonismo isolado ou duplo/triplo específico de receptor |
| Impacto no Trânsito Gastrointestinal | Desaceleração fisiológica adaptativa com preservação do MMC | Gastroparesia transitória ou severa, náuseas e constipação |
| Preservação de Massa Magra | Alta: preserva o balanço nitrogenado e a ingestão proteica | Risco de perda de massa magra de 25% a 40% do peso total perdido |
| Efeito Pós-Interrupção | Sustentável: consolidação de hábitos e microbiota eubiótica | Efeito rebote frequente de reganho ponderal por perda do agonismo |
4. Ácidos Graxos de Cadeia Curta (SCFAs): O Elo Bioquímico da Saciedade
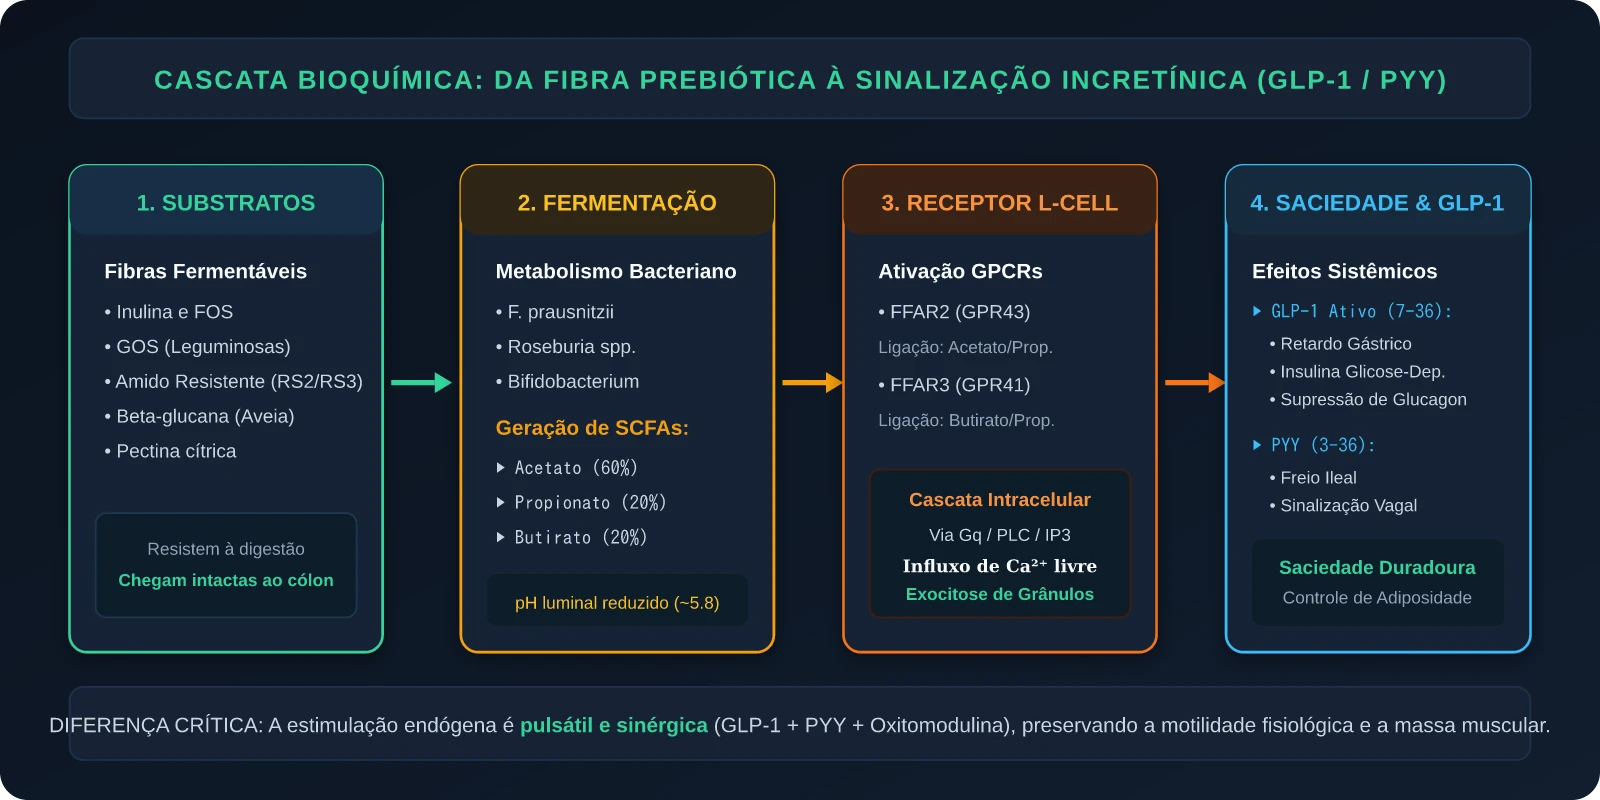
Quando as fibras alimentares e os carboidratos não digeríveis pelo genoma humano escapam à hidrólise enzimática no estômago e intestino delgado, atingem o cólon, onde sofrem fermentação anaeróbia pelas bactérias comensais. Os principais produtos finais dessa atividade bioquímica são os Ácidos Graxos de Cadeia Curta (SCFAs): Acetato (C2), Propionato (C3) e Butirato (C4), mantidos tipicamente em uma proporção molar aproximada de 60:20:20.
4.1. Mecanismo de Ação dos Receptores FFAR2 (GPR43) e FFAR3 (GPR41)
Os SCFAs deixaram de ser considerados meras fontes energéticas para os colonócitos e são hoje classificados como ligantes endógenos de receptores acoplados à proteína G (GPCRs):
- FFAR2 (Free Fatty Acid Receptor 2 / GPR43):
- Seletividade: Possui maior afinidade por ácidos graxos de menor comprimento de cadeia: Acetato > Propionato > Butirato.
- Acoplamento Celular: Acopla-se duplamente às vias de sinalização $G_q/11$ e $G_i/o$.
- Nas Células L Intestinais: A ligação de acetato ou propionato ao FFAR2 ativa a Fosfolipase C (PLC), gerando trifosfato de inositol ($IP_3$) e diacilglicerol (DAG). O $IP_3$ induz o efluxo imediato de cálcio (Ca2+) das reservas do retículo endoplasmático para o citosol. A elevação na concentração intracelular de cálcio dispara a exocitose dos grânulos secretórios contendo GLP-1 e PYY para a circulação submucosa.
- FFAR3 (Free Fatty Acid Receptor 3 / GPR41):
- Seletividade: Exibe maior afinidade por ácidos graxos de cadeia intermediária: Propionato = Butirato > Acetato.
- Acoplamento: Acopla-se predominantemente via $G_i/o$, inibindo a adenilil ciclase e modulando canais iônicos neuronais no sistema nervoso entérico e nós simpáticos pré-vertebrais.
4.2. Destino Metabólico dos SCFAs e Sinalização Central
- Butirato (Ácido Butírico): É o combustível oxidativo preferencial dos colonócitos (fornece cerca de 70% a 80% da energia das células epiteliais do cólon). Atua como um potente inibidor de histona desacetilases (HDAC inhibitor), aumentando a acetilação de histonas e promovendo a transcrição de genes anti-inflamatórios e proteínas de adesão celular. Pequenas frações atingem o fígado via veia porta.
- Propionato (Ácido Propiônico): Quase totalmente captado pelo fígado pela circulação portal (taxa de depuração de primeira passagem > 90%). No hepatócito, atua como substrato e modulador alostérico que inibe a lipogênese de novo e ativa a via da gliconeogênese intestinal protetora.
- Acetato (Ácido Acético): Escapa à captação hepática e atinge concentrações milimolares na circulação periférica. O acetato atravessa a barreira hematoencefálica (BHE) através de transportadores de monocarboxilatos (MCTs). No hipotálamo, é captado por astrócitos e neurônios, entra no ciclo de Krebs e deflagra uma cascata de sinalização que ativa diretamente a transcrição de neuropeptídeos anorexígenos (POMC/CART) e suprime neurônios orexígenos (NPY/AgRP) no núcleo arqueado.
5. Integridade da Barreira Epitelial e Endotoxemia Metabólica
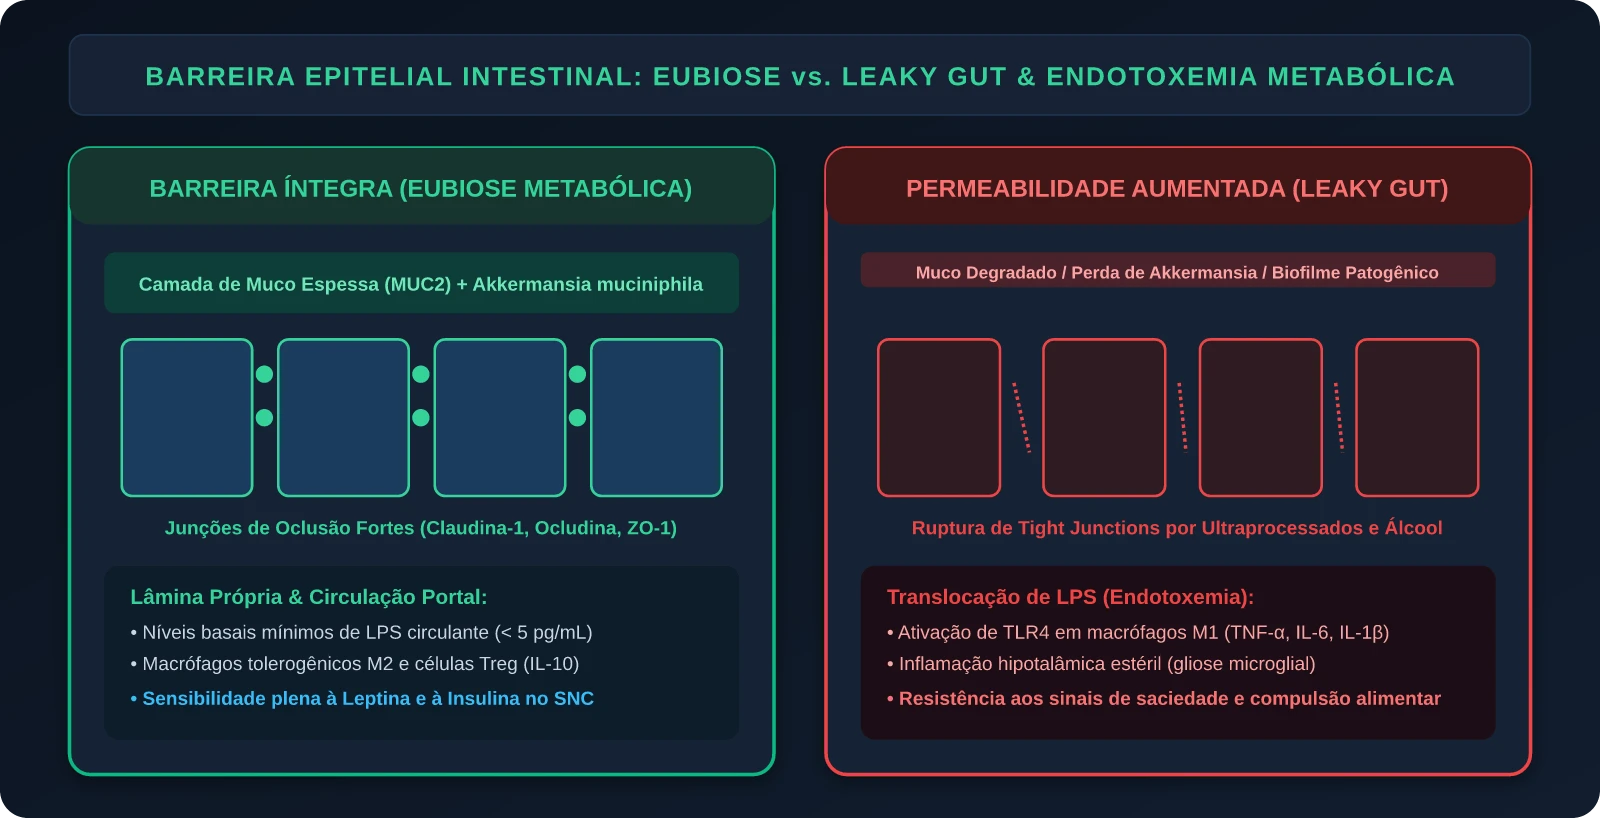
A barreira intestinal é formada por uma monocamada de enterócitos unidos lateralmente por complexos multiproteicos intercelulares: as junções de oclusão (tight junctions), constituídas por Ocludina, Claudinas (Claudina-1, -3, -5) e proteínas da zônula de oclusão (ZO-1, ZO-2, ZO-3), recobertas por um manto de muco glicoproteico (gel-forming mucin MUC2).
5.1. A Cascata da Endotoxemia Metabólica
Quando a dieta é cronicamente desprovida de fibras prebióticas e rica em gorduras de baixa qualidade, os colonócitos sofrem privação energética por escassez de butirato. Simultaneamente, ácidos biliares secundários hidrofóbicos e emulsificantes alimentares degradam a camada de muco protetora.
- Ruptura das Junções de Oclusão (Leaky Gut): Ocorre a fosforilação aberrante e desmonte das proteínas ZO-1 e ocludina.
- Translocação de Lipopolissacarídeos (LPS): O LPS (uma endotoxina presente na membrana externa de bactérias gram-negativas como Proteobacteria) transloca-se paracelularmente para a lâmina própria e cai na circulação portal incorporado em quilomícrons.
- Ativação de TLR4 e Metainflamação: O LPS circulante liga-se à proteína de ligação a LPS (LBP) e ativa o complexo receptor TLR4/CD14 em macrófagos teciduais e células de Kupffer hepáticas. Essa ativação dispara a via do NF-B, induzindo a produção maciça de citocinas pró-inflamatórias: TNF-α, IL-6 e IL-1β.
- Inflamação Hipotalâmica Estéril: As citocinas e frações de LPS atingem a eminência mediana do hipotálamo, ativando a microglia e induzindo estresse de retículo endoplasmático em neurônios POMC. O resultado funcional é a resistência aos sinais centrais de leptina e insulina: o cérebro deixa de responder aos sinais hormonais de saciedade periférica, mantendo o indivíduo em um estado contínuo de fome hedônica e compulsão por alimentos hiperpalatáveis.
6. O Papel Estratégico da Akkermansia muciniphila
Identificada em 2004 por Muriel Derrien e Willem de Vos, a Akkermansia muciniphila representa hoje um dos biomarcadores mais robustos de longevidade metabólica e proteção contra obesidade.
6.1. Mecanismo de Turn-Over do Muco e Simbiose
Diferente da maioria das bactérias entéricas que dependem exclusivamente de fibras dietéticas exógenas, a Akkermansia utiliza a mucina (glicoproteínas MUC2 secretadas pelas células caliciformes / Goblet cells) como fonte primária de carbono e nitrogênio:
- Ao “pastar” o muco envelhecido, ela degrada glicanos e libera oligossacarídeos e acetato na luz intestinal.
- Essa degradação controlada funciona como um estímulo mecânico e químico para que as células caliciformes aumentem a produção de muco novo, mantendo a barreira física espessa e contínua.
- Os subprodutos da digestão da mucina pela Akkermansia alimentam bactérias vizinhas como Faecalibacterium prausnitzii, em um processo de cooperação ecológica denominado alimentação cruzada (cross-feeding), culminando em síntese amplificada de butirato.
6.2. Proteína Amuc_1100 e Secreção de GLP-1
Pesquisas coordenadas pelo professor Patrice Cani na Universidade Católica de Louvain demonstraram que uma proteína específica da membrana externa da Akkermansia, denominada Amuc_1100 (que permanece termoresistente mesmo após pasteurização):
- Interage diretamente com o receptor Toll-Like Receptor 2 (TLR2) nos enterócitos, aumentando a transcrição de Claudina-3 e oclusão das junções celulares.
- Estimula de forma direta a secreção basolateral de GLP-1 pelas células L, atenuando a resistência insulínica e revertendo a esteatose hepática dismetabólica em ensaios clínicos controlados.
7. Protocolo Clínico Nutricional Baseado em Evidências
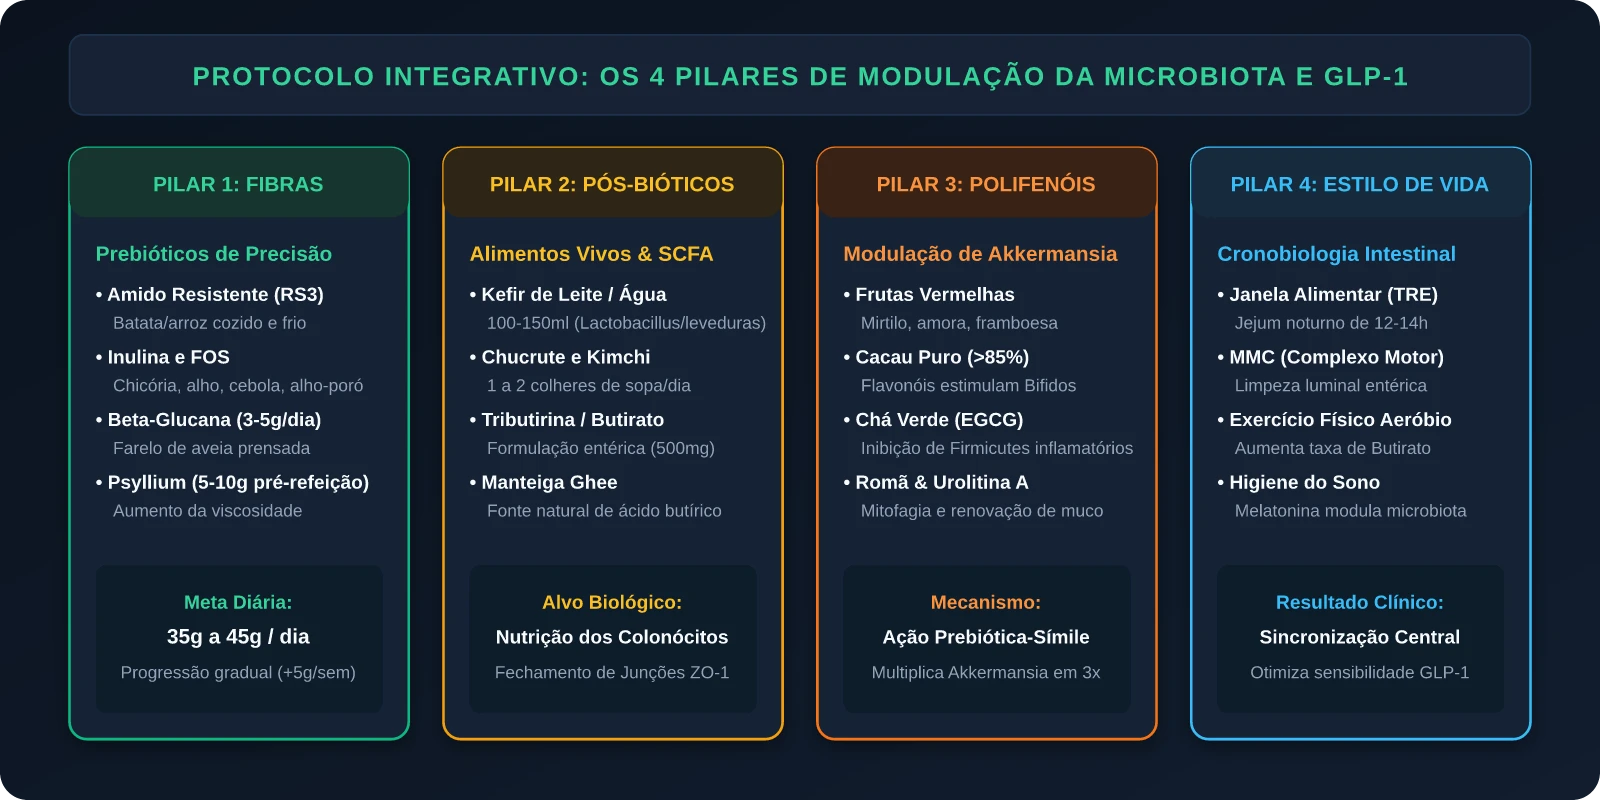
A modulação sustentável do ecossistema intestinal e a elevação dos níveis endógenos de GLP-1 e PYY exigem uma intervenção terapêutica estruturada em quatro pilares biológicos:
7.1. Pilar 1: Fibras Prebióticas Fermentáveis de Alta Eficácia
A meta terapêutica para restauração do freio ileal e estímulo aos GPCRs intestinais é atingir uma ingestão total de 35g a 45g de fibras totais por dia, introduzidas com escalonamento gradual (+5g a cada 4 dias) para minimizar sintomas de desconforto por meteorismo ou fermentação rápida:
- Amido Resistente Tipo 3 (RS3 – Amido Retrogradado):
- Fonte: Batata inglesa, arroz integral ou aveia cozidos e resfriados em geladeira (4°C) por pelo menos 12 a 24 horas antes do consumo. O resfriamento reorganiza as cadeias lineares de amilose em uma estrutura cristalina altamente resistente à quebra pelas amilases salivares e pancreáticas.
- Dose: 15g a 25g de fonte alimentar ao dia. Maior indutor de síntese de butirato no cólon proximal.
- Inulina e Frutooligossacarídeos (FOS):
- Fontes: Raiz de chicória, dente de alho, cebola, alho-poró, aspargos e alcachofras.
- Dose Suplementar: 5g a 10g/dia de inulina de cadeia longa. Estimulador seletivo da proliferação de Bifidobacterium e produção de acetato.
- Beta-Glucana:
- Fonte: Farelo de aveia prensada a frio e cogumelos medicinais (Shiitake, Reishi).
- Mecanismo: Fibra viscosa solúvel que forma uma matriz hidrofílica em gel no lúmen duodenal, retardando o esvaziamento gástrico e estendendo o contato dos nutrientes com as células L ileais. Dose recomendada: 3g a 5g de beta-glucana pura ao dia.
- Psyllium (Plantago ovata):
- Dose e Modo de Uso: 5g a 10g misturados em 250ml de água, consumidos 15 a 20 minutos antes das duas principais refeições. O gel mucilaginoso atua como barreira física de difusão de monossacarídeos, reduzindo a glicemia pós-prandial em até 20% e amplificando a liberação de PYY.
7.2. Pilar 2: Pós-Bióticos e Alimentos Fermentados Vivos
A introdução direta de bactérias viáveis e seus metabólitos bioativos estabiliza o pH luminal e nutre o epitélio:
- Kefir Artesanal (Leite ou Água): Contém mais de 30 a 50 cepas sinérgicas de bactérias ácido-láticas (Lactobacillus kefiri, L. plantarum) e leveduras funcionais (Kluyveromyces marxianus). Dose: 100 a 150 ml/dia.
- Vegetais Lactofermentados (Chucrute e Kimchi não pasteurizados): Fornecem ácidos orgânicos (ácido lático, ácido acético) e bactérias viáveis produtoras de bacteriocinas que inibem enteropatógenos. Dose: 1 a 2 colheres de sopa junto às refeições.
- Tributirina / Butirato Entérico: Em casos de disbiose severa ou intolerância transitória a fibras fermentáveis (FODMAPs), a suplementação com Tributirina (triglicerídeo de butirato microencapsulado com liberação cólica dirigida) na dose de 500mg a 1.000mg/dia acelera o fechamento de tight junctions e reduz marcadores inflamatórios séricos.
7.3. Pilar 3: Polifenóis como Moduladores Específicos de Akkermansia
Os polifenóis dietéticos possuem baixíssima biodisponibilidade no intestino delgado (< 5% a 10% de absorção), fazendo com que mais de 90% atinjam o cólon intactos, onde atuam como substratos pré-biótico-símiles:
- Antocianinas e Proantocianidinas: Mirtilos, amoras, romã e uvas roxas. Estudos clínicos confirmam que o consumo regular de polifenóis de romã e frutas vermelhas multiplica a densidade de Akkermansia muciniphila em até 3 a 5 vezes em 4 semanas.
- Epigalocatequina-3-Galato (EGCG): Chá verde (Camellia sinensis). Inibe seletivamente clostridiais patogênicos e favorece o crescimento de bactérias produtoras de propionato.
- Urolitina A: Metabólito pós-biótico sintetizado por certas bactérias intestinais a partir da clivagem de elagitaninos (presentes na romã e nozes). A Urolitina A estimula a mitofagia nos enterócitos e neurônios hipotalâmicos, restaurando a bioenergética celular.
7.4. Pilar 4: Crononutrição e Ritmo Circadiano Entérico
A microbiota intestinal exibe flutuações circadianas marcantes em sua composição e produção de SCFAs ao longo das 24 horas do dia:
- Alinhamento da Janela Alimentar (TRE – Time-Restricted Eating): Manter a ingestão calórica em uma janela diurna consistente de 10 a 12 horas, garantindo 12 a 14 horas de jejum noturno fisiológico.
- Ativação do Complexo Motor Migratório (MMC): Durante os períodos de jejum interprandial de 3 a 4 horas, o sistema nervoso entérico deflagra ondas peristálticas de alta amplitude (Fase III do MMC), que realizam uma “varredura” mecânica de restos alimentares e bactérias desprendidas do intestino delgado para o cólon, prevenindo o Supercrescimento Bacteriano no Intestino Delgado (SIBO).
8. Tabela Comparativa de Fibras e Capacidade de Estímulo Incretínico
A tabela abaixo sintetiza os principais substratos prebióticos, seus metabólitos dominantes e o impacto relativo sobre a secreção de GLP-1 e saciedade:
| Substrato Prebiótico | Fontes Alimentares Típicas | SCFA Predominante Gerado | Receptor GPCR Alvo | Potência no Estímulo de GLP-1/PYY | Tolerância Gastrointestinal Típica |
|---|---|---|---|---|---|
| Amido Resistente (RS3) | Batata e arroz cozidos e resfriados | Butirato (C4) | FFAR3 (GPR41) / Inibição HDAC | Muito Alta (Estímulo ileal profundo) | Excelente (Fermentação lenta e distal) |
| Beta-Glucana | Farelo de aveia prensada, cevada | Acetato (C2) / Butirato (C4) | FFAR2 (GPR43) | Alta (Formação de gel viscoso) | Excelente (Pouco meteorismo) |
| Inulina de Cadeia Longa | Raiz de chicória, alcachofra | Acetato (C2) | FFAR2 (GPR43) | Alta (Aumenta células L por trofismo) | Moderada (Requer escalonamento) |
| Psyllium (Plantago ovata) | Casca da semente de psyllium | Propionato (C3) / Acetato (C2) | FFAR2 e FFAR3 | Alta (Atrasa esvaziamento gástrico) | Excelente (Aumenta volume fecal) |
| Pectina Cítrica | Maçã com casca, frutas cítricas | Acetato (C2) | FFAR2 (GPR43) | Moderada a Alta | Boa |
| Galactooligossacarídeos (GOS) | Leguminosas (grão-de-bico, lentilha) | Acetato e Propionato | FFAR2 / Estímulo Bifidogênico | Moderada | Moderada (Fermentação proximal rápida) |
9. Perguntas Frequentes (FAQ)
1. Quem já utiliza canetas emagrecedoras de GLP-1 (como semaglutida) pode se beneficiar desse protocolo de fibras?
Sim, de forma altamente estratégica. O uso de agonistas farmacológicos de GLP-1 induz frequentemente dois efeitos colaterais críticos: constipação intestinal severa por hipomotilidade e perda substancial de massa muscular associada a uma dieta hipocalórica monótona. A introdução de fibras solúveis hidratadas (como psyllium e beta-glucana) previne o fecaloma e a atonia intestinal, enquanto a preservação da microbiota eubiótica evita a exaustão das células L endógenas, preparando o terreno metabólico para minimizar o reganho ponderal no momento do desmame medicamentoso.
2. É possível dosar a presença de Akkermansia muciniphila e outros filos na rotina clínica?
Sim. O método padrão-ouro é o Exame de Metagenômica por Sequenciamento de Nova Geração (Shotgun Metagenomic Sequencing) ou o sequenciamento do gene 16S rRNA a partir de amostras de fezes. Esse teste quantifica a abundância relativa de Akkermansia muciniphila (cujo valor ideal em adultos saudáveis situa-se entre 1% e 4% do microbioma total), a diversidade alfa e a relação Firmicutes/Bacteroidetes, permitindo personalizar a suplementação prebiótica.
3. Por que algumas pessoas sentem gases excessivos ou estufamento ao aumentar o consumo de fibras?
Esse sintoma ocorre tipicamente quando há uma transição abrupta de uma dieta pobre em resíduos para uma dieta de alta carga prebiótica, ou na presença de desbalanços na microbiota proximal (como em quadros subclínicos de SIBO ou disbiose com superpopulação de bactérias produtoras de metano e hidrogênio). A fermentação bacteriana veloz produz dióxido de carbono ($CO_2$), hidrogênio ($H_2$) e metano ($CH_4$) antes que a parede colônica se adapte. A conduta correta é o escalonamento progressivo (iniciar com apenas 2,5g a 5g de fibras solúveis ao dia) e priorizar fibras de fermentação mais lenta e uniforme, como o amido resistente retrogradado e a goma acácia (Acacia senegal).
4. Tomar probióticos em cápsulas isolados substitui o consumo diário de fibras prebióticas?
Não. Bactérias probióticas encapsuladas (como Lactobacillus e Bifidobacterium) são “turistas ecológicos” transitórios que permanecem no trato gastrointestinal por poucos dias ou semanas, a menos que encontrem substrato contínuo para sua colonização e replicação. Sem fibras prebióticas para alimentá-las, a grande maioria dos probióticos comerciais não consegue se fixar na mucosa e é eliminada. O prebiótico é o alimento que molda e sustenta a arquitetura duradoura da microbiota nativa.
5. O uso recorrente de adoçantes artificiais interfere negativamente na sinalização de GLP-1 e na microbiota?
Estudos controlados em humanos e modelos animais demonstram que certos adoçantes artificiais de síntese química — particularmente a sucralose, a sacarina e o aspartame — alteram a composição taxonômica da microbiota intestinal, reduzindo populações benéficas e induzindo intolerância à glicose mediada por disbiose. Embora estimulem os receptores de sabor doce lingual (T1R2/T1R3), eles não ativam adequadamente a cascata intracelular de exocitose das células L, gerando uma dissociação neuroquímica entre a percepção do doce e o aporte calórico real, o que pode exacerbar a busca por comida a médio prazo.
Referências Bibliográficas e Literatura Científica
- CANFORA, Emanuel E. et al. Short-chain fatty acids in control of body weight and insulin sensitivity. Nature Reviews Endocrinology, v. 11, n. 10, p. 577-591, 2015. DOI: 10.1038/nrendo.2015.128.
- CANI, Patrice D. et al. Metabolic endotoxemia initiates obesity and insulin resistance. Diabetes, v. 56, n. 7, p. 1761-1772, 2007. DOI: 10.2337/db06-1491.
- DEPOMMIER, Clara et al. Supplementation with Akkermansia muciniphila in overweight and obese human volunteers: a proof-of-concept exploratory study. Nature Medicine, v. 25, n. 7, p. 1096-1103, 2019. DOI: 10.1038/s41591-019-0495-2.
- BLAUT, Michael. Food-gut microbiota interaction and its importance for nutrition and health. Gut, v. 64, n. 2, p. 182-184, 2015. DOI: 10.1136/gutjnl-2014-308151.
- TOLHURST, Gwen et al. Short-chain fatty acids stimulate glucagon-like peptide-1 secretion via the G-protein-coupled receptor FFAR2. Diabetes, v. 61, n. 2, p. 364-371, 2012. DOI: 10.2337/db11-1019.
- DE SILVA, A.; BLOOM, S. R. Gut Hormones and Appetite Control. Gastroenterology, v. 142, n. 4, p. 836-847, 2012. DOI: 10.1053/j.gastro.2011.12.048.
- YANO, Jessica M. et al. Indigenous bacteria from the gut microbiota regulate host serotonin biosynthesis. Cell, v. 161, n. 2, p. 264-276, 2015. DOI: 10.1016/j.cell.2015.02.047.
- KOH, Ara et al. From Dietary Fiber to Host Physiology: Short-Chain Fatty Acids as Key Bacterial Metabolites. Cell, v. 165, n. 6, p. 1332-1345, 2016. DOI: 10.1016/j.cell.2016.05.041.
- KREZNAR, Jamison et al. Host-microbe metabolic interactions in the gut and its impact on satiety and appetite regulation. Science Translational Medicine, v. 12, n. 542, eaaz3284, 2020.
- DERRIEN, Muriel et al. Akkermansia muciniphila and its role in regulating host functions. Microbial Pathogenesis, v. 106, p. 171-181, 2017. DOI: 10.1016/j.micpath.2016.02.005.
Carregando comentários…