Eixo Músculo-Fígado e Miocinas (Irisina, IL-6, Miostatina): A Bioquímica da Remodelação Metabólica pelo Treinamento Resistido
Neste artigo
- 1. O Músculo Esquelético como Órgão Endócrino e a Mecanotransdução
- 2. O Eixo de Comunicação Cruzada Músculo-Fígado (Muscle-Liver Crosstalk)
- 3. As Três Miocinas Centrais da Remodelação Metabólica
- 4. Tabela Comparativa das Principais Miocinas Reguladoras
- 5. Remodelação Celular: GLUT4 Independente de Insulina e TMB
- 6. Protocolo Prático de Treinamento Resistido para Otimização de Miocinas
- 7. Perguntas Frequentes (FAQ)
- Referências Bibliográficas e Literatura Científica
Historicamente relegado pela medicina clássica a uma função puramente biomecânica — como um conjunto de alavancas e roldanas responsável pela locomoção, sustentação postural e geração de força física —, o tecido muscular esquelético passou por uma das mais profundas revoluções conceituais da biologia contemporânea.
No início dos anos 2000, as pesquisas pioneiras lideradas pela médica e fisiologista dinamarquesa Bente Klarlund Pedersen e sua equipe no Centre of Inflammation and Metabolism da Universidade de Copenhague redefiniram a compreensão do sistema musculoesquelético. Eles demonstraram experimentalmente que o músculo esquelético é, em termos de volume e massa celular ativa, o maior órgão endócrino do corpo humano.
Quando as pontes cruzadas de actina e miosina se conectam e sofrem encurtamento mecânico sob tensão, o miócito em contração converte estímulos biofísicos em cascatas bioquímicas de alta complexidade (mecanotransdução). Esse processo dispara a transcrição, tradução e secreção sistêmica de centenas de peptídeos bioativos, citocinas regulatórias e fatores de crescimento denominados genericamente Miocinas.
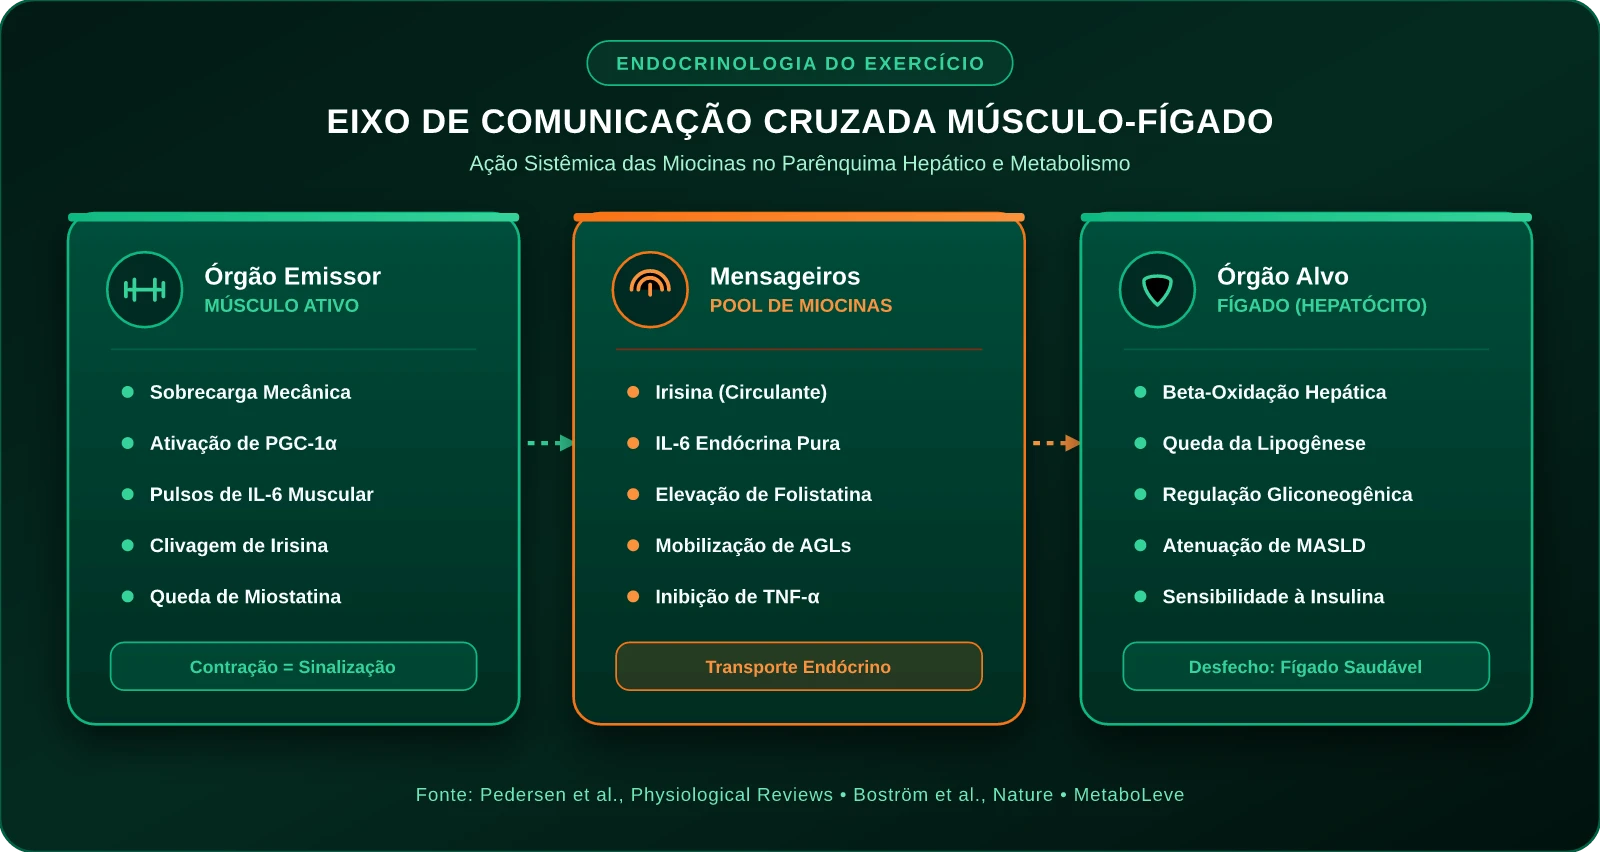
Dentre as inúmeras vias de comunicação endócrina orquestradas pelo músculo ativo, o Eixo de Comunicação Cruzada Músculo-Fígado (Muscle-Liver Crosstalk) desponta como o eixo central de controle da homeostase energética humana. As miocinas liberadas durante e após sessões de treinamento resistido (musculação) viajam pela circulação e atuam diretamente sobre receptores específicos nos hepatócitos, regulando a gliconeogênese, acelerando a taxa de beta-oxidação de lipídios e combatendo a progressão da Esteatose Hepática Associada à Disfunção Metabólica (MASLD).
Neste artigo de referência técnica e profundidade acadêmica, dissecamos as cascatas de sinalização molecular que governam a secreção de miocinas, o papel das três moléculas centrais desse eixo — Irisina, Interleucina-6 muscular (IL-6) e Miostatina (GDF-8) —, a remodelação celular mitocondrial e os parâmetros de prescrição do exercício físico fundamentados na literatura científica internacional.
1. O Músculo Esquelético como Órgão Endócrino e a Mecanotransdução
Em um indivíduo adulto saudável, o tecido muscular esquelético representa entre 35% e 45% do peso corporal total e é responsável por consumir a maior fração dos substratos energéticos oxidativos em repouso e em esforço.
O Paradoxo da Mecanotransdução: Da Força Tensional à Resposta Hormonal
Como uma força física externa (uma barra com anilhas ou halteres) é convertida em um sinal genômico dentro do miócito?
- Ativação dos Mecanossensores de Membrana: A tensão mecânica gerada pela contração contra resistência deforma estruturas proteicas especializadas ancoradas no sarcolema, como o complexo distrofina-glicoproteína, as integrinas e a quinase de adesão focal (FAK).
- Influxo Transitório de Cálcio Citosólico (Ca2+): A despolarização do sarcolema abre os canais de cálcio do retículo sarcoplasmático via receptores de rianodina (RyR1). A elevação abrupta do Ca2+ citosólico ativa quinases chave, principalmente a CaMKII (Calmodulina Quinase II).
- Fosforilação de Sensores Energéticos: Concomitantemente, a quebra acelerada de ATP em ADP e AMP no interior das miofibrilas altera a razão energética intracelular, deflagrando a fosforilação conformacional da AMPK (Proteína Quinase Ativada por AMP) no resíduo Treonina 172.
- Indução do Eixo PGC-1α: A ação combinada da CaMKII e da AMPK recruta o coativador transcricional mestre PGC-1α (Receptor Ativado por Proliferador de Peroxissoma Gama Coativador 1-Alfa). Uma vez ativado, o PGC-1α transloca para o núcleo celular e acopla-se a fatores de transcrição específicos, ativando a expressão do secretoma de miocinas.
O miócito deixa de ser apenas uma unidade contrátil mecânica e passa a funcionar como uma glândula endócrina pulsátil de alta potência.
2. O Eixo de Comunicação Cruzada Músculo-Fígado (Muscle-Liver Crosstalk)
O fígado e o músculo esquelético são os dois principais depósitos de carboidratos (na forma de glicogênio) e os reguladores mais dinâmicos do metabolismo de lipídios e glicose no organismo.
Em indivíduos sedentários portadores de obesidade visceral ou resistência à insulina, a comunicação fisiológica entre esses dois órgãos é corrompida:
- O músculo sedentário apresenta redução no conteúdo de GLUT4 e infiltração de gordura intramiocelular (lipotoxicidade).
- Essa falha muscular sobrecarrega o fígado com um afluxo excessivo de glicose e ácidos graxos livres não oxidados.
- O fígado responde ativando a Lipogênese de Novo (DNL) mediada por SREBP-1c e ChREBP, acumulando gotas lipídicas ectópicas no parênquima (esteatose hepática) e perdendo a capacidade de frear a gliconeogênese em jejum.
A Restauração Mediada pelo Treino Resistido
O treinamento de força atua como o principal interruptor epigenético dessa disfunção metabólica:
- Redução da Gliconeogênese Desregulada: As miocinas liberadas no exercício sinalizam aos hepatócitos a inativação do fator de transcrição FoxO1, desligando a superexpressão de enzimas gliconeogênicas como a Fosfoenolpiruvato Carboxiquinase (PEPCK) e a Glicose-6-Fosfatase (G6Pase).
- Aumento da Beta-Oxidação Hepática: O estímulo do exercício ativa o sensor nuclear PPARα no fígado, aumentando a atividade da enzima CPT-1 (Carnitina Palmitoiltransferase-1) e promovendo a queima acelerada dos triglicerídeos intra-hepáticos acumulados.
- Inibição da Secreção de Fetuin-A: A Fetuin-A é uma hepatocina patológica secretada pelo fígado gorduroso que bloqueia os receptores de insulina no músculo esquelético. O treino de força reduz drasticamente os níveis séricos de Fetuin-A, quebrando o ciclo vicioso de resistência à insulina mútua.
3. As Três Miocinas Centrais da Remodelação Metabólica
Dentre as dezenas de moléculas identificadas no secretoma muscular, três miocinas exercem os efeitos mais documentados e reprodutíveis na bioenergética sistêmica: Irisina, Interleucina-6 (IL-6) e Miostatina (GDF-8).
3.1. Irisina: O Hormônio Termogênico e Protetor Hepático
Descoberta em 2012 pelo grupo do Dr. Bruce Spiegelman na Harvard Medical School (Boström et al., Nature), a Irisina é um hormônio peptídico de 112 aminoácidos que mudou a compreensão sobre o gasto calórico humano.
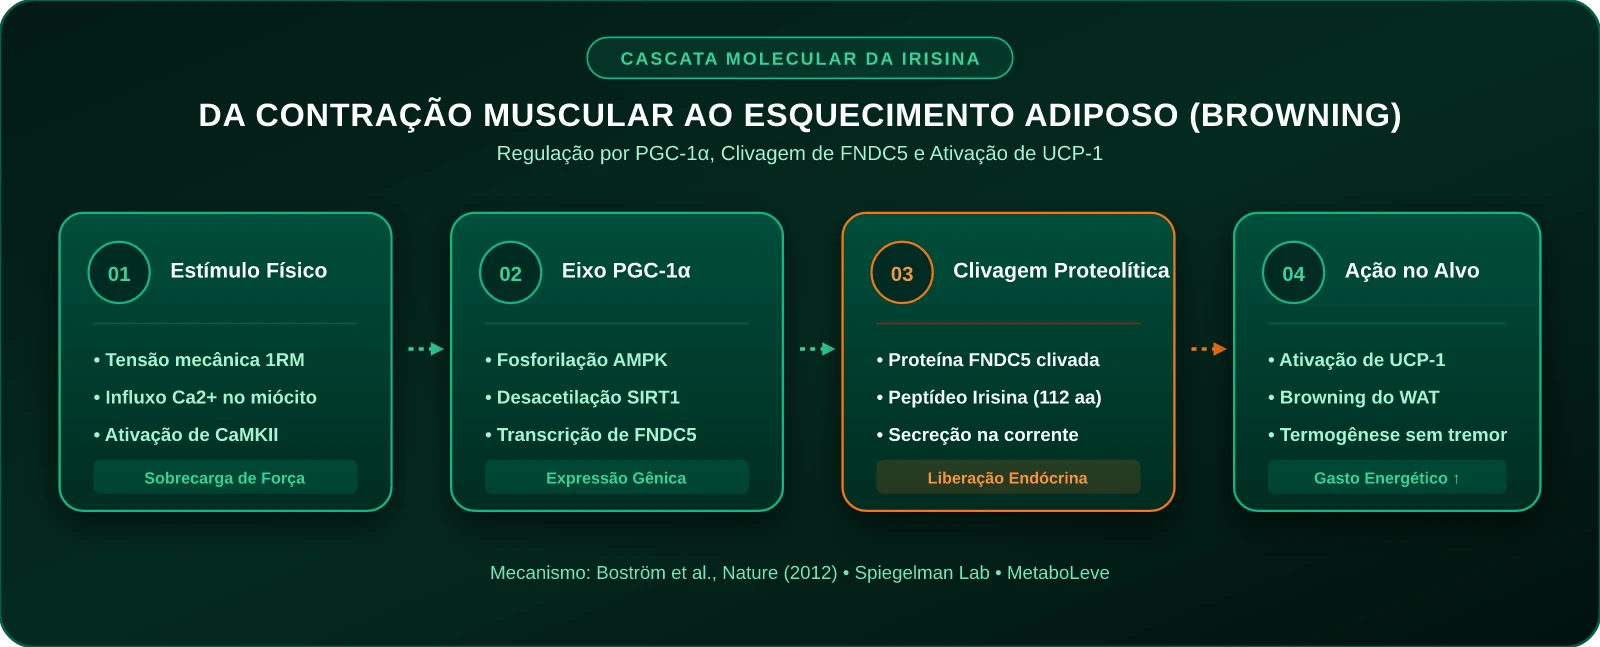
Síntese e Clivagem Bioquímica
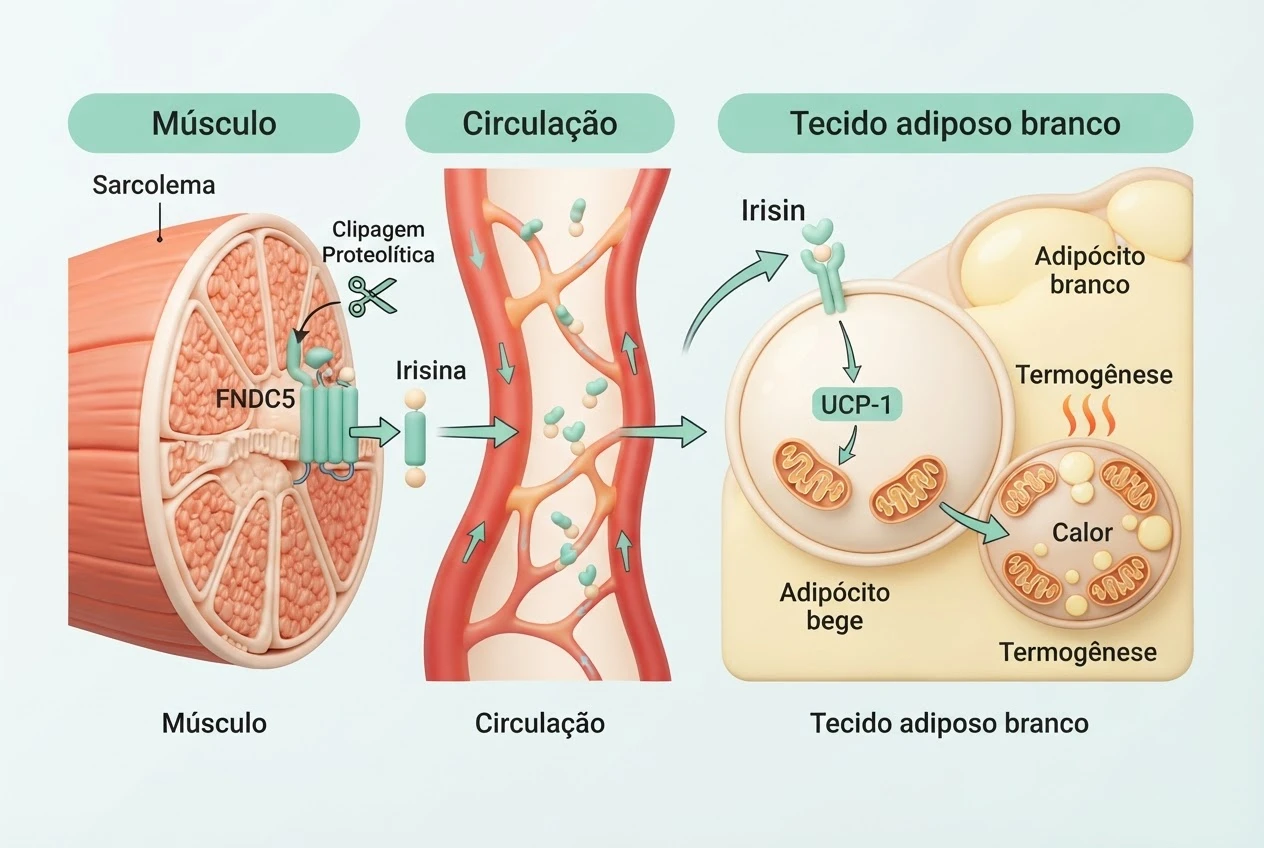
A Irisina não é sintetizada diretamente em sua forma livre. O gene mestre da biogênese mitocondrial, PGC-1α, induz a transcrição de uma proteína precursora transmembrana ancorada na membrana celular do miócito, denominada FNDC5 (Fibronectin Type III Domain-Containing Protein 5).
Durante a sobrecarga de contração muscular, enzimas proteolíticas da família das convertases clivam o domínio extracelular N-terminal da FNDC5. Esse fragmento clivado é lançado na corrente sanguínea como a miocina ativa: a Irisina.
Mecanismos de Ação Sistêmica da Irisina:
- Escurecimento Adiposo (Browning do Tecido Adiposo Branco): A Irisina liga-se a receptores integrínicos da família alfa-V nos pré-adipócitos do tecido adiposo branco subcutâneo. Essa ligação dispara a transcrição massiva da Proteína Desacopladora 1 (UCP-1 / Termogenina), transformando adipócitos brancos uniloculares de armazenamento em adipócitos beges (Brite) ricos em cristas mitocondriais. A UCP-1 dissipa o gradiente eletroquímico de prótons sem produzir ATP, convertendo substratos lipídicos em calor puro e aumentando significativamente a Taxa Metabólica Basal (TMB).
- Supressão da Lipogênese Hepática: No hepatócito, a Irisina ativa a via LKB1 / AMPK, fosforilando e inativando a enzima Acetil-CoA Carboxilase (ACC). Isso cessa a síntese de novos ácidos graxos no fígado e reverte os depósitos esteatóticos.
- Neuroproteção e Eixo Músculo-Cérebro: A Irisina circulante é capaz de atravessar a barreira hematoencefálica, onde estimula a transcrição do BDNF (Fator Neurotrófico Derivado do Cérebro) no hipocampo, estimulando a neurogênese, a plasticidade sináptica e a proteção contra o declínio cognitivo associado ao diabetes tipo 2.
3.2. Interleucina-6 Produzida pelo Músculo: O Paradoxo Anti-Inflamatório
Na imunologia clássica, a Interleucina-6 (IL-6) é rotulada como uma citocina pró-inflamatória, encontrada em concentrações elevadas no soro de pacientes com sepse, artrite reumatoide e obesidade grave mórbida.
No entanto, as investigações de Bente Klarlund Pedersen desvendaram um paradoxo fascinante: a IL-6 secretada pelo músculo durante o exercício não se comporta como a IL-6 inflamatória dos macrófagos.
A Fisiologia da IL-6 Muscular como Sensor Energético
- Pulsatilidade Aguda: Durante uma sessão intensa de treino resistido ou intervalado, a concentração plasmática de IL-6 muscular pode aumentar de 10 a 100 vezes em relação aos valores basais, retornando aos níveis de repouso poucas horas após o término da sessão.
- Cascata Anti-Inflamatória Sistêmica: A IL-6 do exercício estimula a produção hepática e leucocitária de citocinas anti-inflamatórias clássicas, como o Antagonista do Receptor de IL-1 (IL-1ra) e a Interleucina-10 (IL-10), enquanto inibe diretamente a produção do Fator de Necrose Tumoral Alfa (TNF-α).
- Aceleração da Lipólise: No tecido adiposo periférico, a IL-6 muscular estimula a atividade da Lipase Hormônio-Sensível (LHS/HSL) e da ATGL, mobilizando ácidos graxos livres para serem utilizados como combustível oxidativo pelo miócito.
- Captação Hepática e Ressíntese de Glicogênio: No fígado, a IL-6 induz a fosforilação de AMPK, melhorando a sensibilidade hepática à insulina e direcionando a captação de lactato para a ressíntese ordenada de glicogênio.
3.3. Miostatina (GDF-8): O Freio Molecular da Hipertrofia e Inimigo Metabólico
Descoberta em 1997 por McPherron e Lee na Johns Hopkins University School of Medicine, a Miostatina (membro da superfamília do Fator de Crescimento Transformador Beta — TGF-β, formalmente denominada GDF-8) é o mais potente regulador negativo endógeno do crescimento muscular.
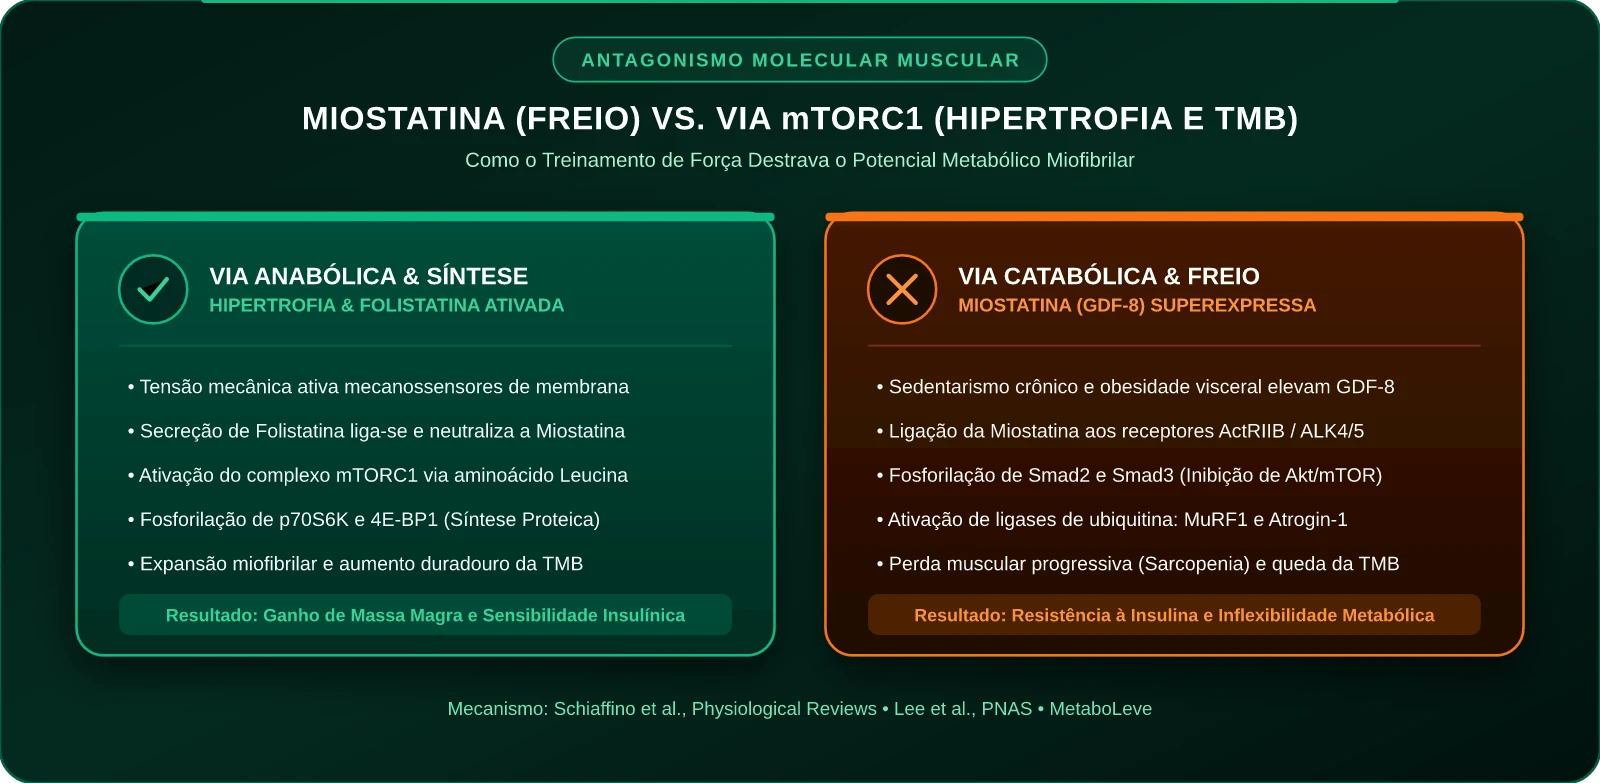
Como a Miostatina Bloqueia o Desenvolvimento Muscular e Deteriora o Metabolismo
A Miostatina secretada liga-se aos receptores de membrana ActRIIB e aos correceptores ALK4/ALK5 no miócito:
- Fosforilação da Cascata Smad2/Smad3: Os fatores de transcrição Smad2 e Smad3 são fosforilados e formam complexos com o Smad4, migrando para o núcleo celular.
- Bloqueio Direto da Via Akt / mTORC1: O complexo Smad bloqueia a atividade da quinase Akt, desligando a tradução ribossômica e a síntese de novas proteínas miofibrilares.
- Ativação da Degradação Proteolítica: Concomitantemente, a via Smad superexpressa as ligases de ubiquitina músculo-específicas MuRF1 e Atrogin-1 (MAFbx), acelerando a quebra de filamentos de actina e miosina via sistema ubiquitina-proteassoma.
O Círculo Vicioso do Sedentarismo e da Obesidade
Indivíduos sedentários, com sobrepeso ou diabéticos apresentam níveis cronicamente elevados de miostatina sérica e muscular. A miostatina elevada promove atrofia muscular (sarcopenia), o que reduz a Taxa Metabólica Basal e diminui a área disponível para captação de glicose. Menos músculo ativo gera mais acúmulo de gordura e inflamação, o que estimula ainda mais a transcrição de miostatina.
A Inibição pelo Treino de Força via Folistatina
O treinamento resistido crônico é a intervenção biológica mais eficaz para quebrar esse ciclo:
- A sobrecarga de força reduz a expressão gênica do mRNA de miostatina no músculo em até 40% a 60%.
- Concomitantemente, a contração induz a síntese e secreção de Folistatina, uma glicoproteína endógena que atua como antagonista biológico da miostatina: a folistatina liga-se fisicamente à miostatina na circulação, neutralizando sua capacidade de se acoplar aos receptores ActRIIB e permitindo que o complexo mTORC1 opere sem freios moleculares.
4. Tabela Comparativa das Principais Miocinas Reguladoras
A tabela abaixo resume as propriedades moleculares, gatilhos de liberação e desfechos metabólicos das principais miocinas caracterizadas na literatura médica:
| Miocina | Precursor / Gene | Gatilho de Secreção Primário | Órgão / Tecido Alvo | Vias Enzimáticas Envolvidas | Impacto Metabólico Sistêmico |
|---|---|---|---|---|---|
| Irisina | FNDC5 (Cromossomo 1) | Sobrecarga mecânica contínua + Ativação de PGC-1α | Tecido Adiposo Branco (WAT) e Fígado | Receptores alfa-V integrina, cascata p38 MAPK e AMPK | Desacoplamento mitocondrial por UCP-1 (browning), reversão de MASLD e elevação da TMB |
| IL-6 Muscular | Gene IL6 (Cromossomo 7) | Esvaziamento de glicogênio muscular + Influxo de Ca2+ | Tecido Adiposo, Fígado e Ilhotas Pancreáticas | Ativação de AMPK e p38 MAPK; inibição direta de NF-κB | Aceleração da lipólise de adipócitos, modulação anti-inflamatória e homeostase glicêmica |
| Miostatina (GDF-8) | Gene MSTN (Cromossomo 2) | Sedentarismo crônico, imobilização e TNF-α elevado | Miócito esquelético autócrono/parácrino | Receptores ActRIIB / ALK4/5, fosforilação de Smad2/3 | Freio do crescimento muscular, atrofia proteassômica, sarcopenia e resistência insulínica |
| Folistatina | Gene FST (Cromossomo 5) | Treinamento de força excêntrico + Aporte proteico | Músculo e Circulação Sistêmica | Neutralização estequiométrica da Miostatina e GDF-11 | Desrepressão da via Akt/mTORC1, estímulo hipertrófico e preservação de massa magra |
| BDNF Muscular | Gene BDNF (Cromossomo 11) | Contração muscular repetida + Sobrecarga de força | Músculo local e Sistema Nervoso Central | Receptores TrkB e sinalização de sobrevivência neuronal | Oxidação de gordura intramiocelular e neuroplasticidade no hipocampo |
5. Remodelação Celular: GLUT4 Independente de Insulina e TMB
Um dos maiores benefícios metabólicos imediatos da contração muscular reside na sua capacidade de burlar o defeito de sinalização da insulina.
A Translocação de GLUT4 por Dupla Via
Em um paciente com diabetes tipo 2 ou resistência insulínica grave, a via clássica da insulina (Receptor de Insulina -> IRS-1 -> PI3K -> Akt) encontra-se bloqueada pelo acúmulo de diacilgliceróis (DAG) e ceramidas intramiocelulares.
No entanto, a contração muscular ativa uma via de translocação de vesículas de GLUT4 completamente independente da insulina:
Isso significa que, durante e imediatamente após o treinamento de força, o miócito capta glicose da corrente sanguínea com eficiência máxima, mesmo sem a presença de insulina funcional. Esse efeito sensibilizador persiste por 24 a 48 horas após a sessão, à medida que a enzima Glicogênio Sintase permanece ativada para restaurar os depósitos intramusculares de carboidrato.
O Impacto Real da Massa Muscular na Taxa Metabólica Basal (TMB)
O tecido muscular esquelético consome em repouso cerca de 13 kcal/kg/dia, enquanto o tecido adiposo branco consome aproximadamente 4,5 kcal/kg/dia. Embora essa diferença pareça modesta isoladamente, a remodelação metabólica provocada pelas miocinas amplia exponencialmente esse gasto:
- O ganho de 3 kg a 5 kg de massa muscular metabolicamente ativa não apenas eleva o consumo energético basal de repouso, mas aumenta em até 300% a 500% o gasto calórico durante a realização de atividades cotidianas (NEAT) e exercícios físicos.
- A elevação contínua da secreção basal de Irisina mantém pequenas populações de adipócitos beges ativos 24 horas por dia dissipando calor, tornando o organismo substancialmente mais resistente ao reganho de peso após dietas de emagrecimento.
6. Protocolo Prático de Treinamento Resistido para Otimização de Miocinas
Para maximizar a secreção de miocinas benéficas (Irisina, IL-6 muscular, Folistatina) e promover a supressão duradoura da Miostatina, o estímulo físico deve seguir parâmetros de volume, intensidade e descanso balizados pela literatura científica:
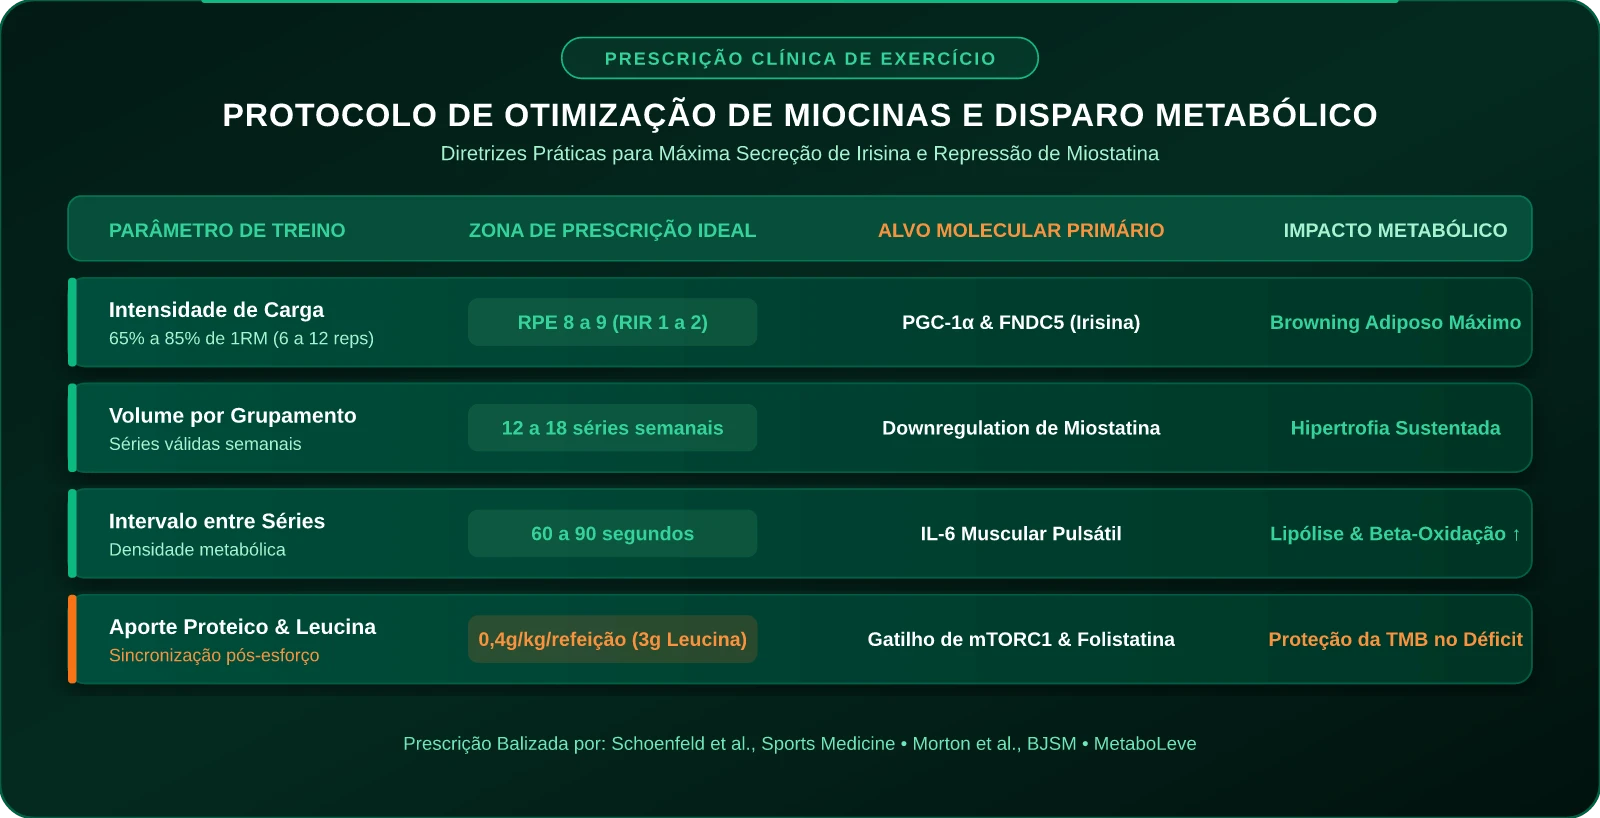
Diretrizes de Prescrição Balizadas por Evidências:
1. Intensidade de Carga e Proximidade da Falha:
- Faixa de Carga: Utilizar cargas correspondentes a 65% a 85% de 1RM (Repetição Máxima), permitindo séries entre 6 e 12 repetições com cadência controlada.
- Esforço Percorrido (RPE / RIR): As séries devem ser conduzidas até uma Classificação de Esforço Percebido (RPE) de 8 a 9, equivalente a 1 a 2 repetições de reserva (RIR) da falha concêntrica. A tensão mecânica próxima à falha é o gatilho biofísico indispensável para fosforilar a CaMKII e recrutar as unidades motoras de alto limiar (fibras do Tipo IIx), que possuem a maior densidade de produção de FNDC5/Irisina e a maior capacidade de inibição de miostatina.
2. Volume Semanal por Grupamento Muscular:
- Volume Ideal: Prescrever de 12 a 18 séries válidas semanais por grupamento muscular, distribuídas em 2 a 3 sessões semanais (frequência 2x a 3x por músculo). Volumes fracionados garantem pulsos repetidos de IL-6 muscular e sustentam a downregulation crônica de miostatina ao longo de toda a semana.
3. Seleção de Exercícios:
- Priorizar movimentos multiarticulares de cadeia cinética fechada e aberta com alta demanda de massa muscular total:
- Agachamento livre, leg press e levantamento terra.
- Supinos e desenvolvimentos de ombro.
- Puxadas, remadas e barras fixas.
- Exercícios que envolvem grandes massas musculares simultaneamente geram picos plasmáticos substancialmente mais robustos de Irisina e IL-6 sistêmica em comparação a exercícios monoarticulares isolados.
4. Densidade e Intervalos de Descanso:
- Intervalos de 60 a 90 segundos: O estresse metabólico acumulado em intervalos moderados amplifica a depleção local de glicogênio e a ativação de AMPK, maximizando o pulso fisiológico de IL-6 sem comprometer a recuperação neural necessária para sustentar a carga de tensão.
5. Sinergia com Nutrição e Aporte de Leucina:
- A sinalização mecânica do treino de força atua em sinergia com o aporte proteico. A presença intracelular de aminoácidos essenciais — especialmente a Leucina (meta de 2,5g a 3,5g por refeição) — é o sinal permissivo mandatório para que o complexo mTORC1 fosforile a p70S6K e execute a tradução proteica, inibindo a via atrófica da Miostatina.
7. Perguntas Frequentes (FAQ)
1. O treinamento aeróbico contínuo (cardio) é capaz de produzir a mesma resposta de miocinas que a musculação?
O exercício aeróbico contínuo (como corrida de longa distância ou ciclismo em intensidade moderada) estimula fortemente a biogênese mitocondrial e a secreção de IL-6 muscular e Irisina via ativação de AMPK. No entanto, o cardio tradicional é incapaz de promover a repressão sustentada da Miostatina e a elevação de Folistatina na magnitude que o treinamento resistido com cargas pesadas proporciona. Além disso, o cardio isolado não induz hipertrofia miofibrilar nem aumenta a Taxa Metabólica Basal de repouso na mesma proporção. A combinação ideal (Concurrent Training) associa o treino de força com sessões moderadas de aeróbio.
2. Pacientes com Esteatose Hepática (MASLD) podem reverter a gordura no fígado apenas fazendo musculação, mesmo sem grande perda de peso na balança?
Sim. Diversos ensaios clínicos randomizados demonstram que indivíduos com esteatose hepática submetidos a programas estruturados de treinamento resistido de 12 a 16 semanas apresentaram redução de 20% a 35% no conteúdo de triglicerídeos intra-hepáticos, acompanhada de normalização de enzimas hepáticas (TGO, TGP e GGT) e queda no índice HOMA-IR, mesmo quando o peso corporal na balança permaneceu praticamente inalterado. Isso ocorre porque o músculo substitui gordura por massa magra e as miocinas (especialmente Irisina e IL-6) ativam a beta-oxidação hepática e desativam a lipogênese de novo.
3. A suplementação de Irisina em cápsulas ou injetável existe e funciona?
Não. A Irisina é um peptídeo complexo de 112 aminoácidos que, se ingerido por via oral, é completamente desnaturado e degradado pelos ácidos estomacais e enzimas proteolíticas do trato gastrointestinal antes de atingir a circulação. Atualmente, não existem produtos farmacológicos ou regulamentados de Irisina sintética aprovados para uso humano. A única forma biologicamente ativa, segura e clinicamente validada de elevar a produção endógena de Irisina circulante é através da sobrecarga mecânica repetida proporcionada pelo exercício físico resistido.
4. Por que a IL-6 gerada no treino não causa inflamação sistêmica crônica como a IL-6 da obesidade?
A diferença crítica está no contexto molecular e na cinética de liberação. Na obesidade e no sedentarismo, a IL-6 é secretada de forma crônica e sustentada por macrófagos pró-inflamatórios (tipo M1) que infiltram o tecido adiposo visceral, sempre em conjunto com moléculas destrutivas como o TNF-α e a IL-1β. No exercício, a IL-6 é liberada de forma aguda e transitória diretamente pelo miócito sob estresse metabólico, sem a presença de TNF-α. Esse pulso agudo não estimula vias de inflamação destrutiva; ao contrário, ele induz a liberação de citocinas anti-inflamatórias (IL-1ra e IL-10) e atua como um potente sinalizador metabólico que estimula a lipólise e a captação de glicose.
5. Indivíduos idosos com sarcopenia severa ainda conseguem secretar miocinas e responder ao treino de força?
Sim. Embora o envelhecimento biológico e o sedentarismo prolongado estejam associados a níveis basais mais elevados de Miostatina e menor densidade de FNDC5 muscular, a literatura médica em gerontologia demonstra que o miócito de indivíduos idosos (inclusive com mais de 70 ou 80 anos) preserva a capacidade de mecanotransdução. O início de um protocolo progressivo de treinamento resistido em idosos induz downregulation imediata da Miostatina, estimula a síntese de Folistatina e melhora a sensibilidade à insulina muscular em poucas semanas, constituindo o tratamento não farmacológico padrão-ouro contra a fragilidade, sarcopenia e síndrome metabólica na terceira idade.
Referências Bibliográficas e Literatura Científica
- PEDERSEN, Bente Klarlund; FEBBRAIO, Mark A. Muscles, exercise and obesity: skeletal muscle as a secretory organ. Nature Reviews Endocrinology, v. 8, n. 8, p. 457-465, 2012. DOI: 10.1038/nrendo.2012.49.
- BOSTRÖM, Pontus et al. A PGC1-α-dependent myokine that drives brown-fat-like development of white fat and thermogenesis. Nature, v. 481, n. 7382, p. 463-468, 2012. DOI: 10.1038/nature10777.
- PEDERSEN, Bente Klarlund. Physical activity and muscle-brain crosstalk. Nature Reviews Endocrinology, v. 15, n. 7, p. 383-392, 2019. DOI: 10.1038/s41574-019-0174-x.
- SCHIAFFINO, Stefano; DYAR, Kenneth A.; CICILIOT, Stefano; BLAUWENDEEL, Francesca T.; SANDRI, Marco. Mechanisms regulating skeletal muscle growth and atrophy. Physiological Reviews, v. 93, n. 4, p. 1653-1717, 2013. DOI: 10.1152/physrev.00031.2012.
- MCPHERRON, Alexandra C.; LAWLER, Ann M.; LEE, Se-Jin. Regulation of skeletal muscle mass in mice by a new TGF-beta superfamily member. Nature, v. 387, n. 6628, p. 83-90, 1997. DOI: 10.1038/387083a0.
- SEVERINSEN, Maria C. K.; PEDERSEN, Bente Klarlund. Muscle-Organ Crosstalk: The Emerging Roles of Myokines. Endocrine Reviews, v. 41, n. 4, p. 594-609, 2020. DOI: 10.1210/endrev/bnaa016.
- FEBBRAIO, Mark A.; PEDERSEN, Bente Klarlund. Contraction-induced myokine production without cellular damage: focus on interleukin-6. Physiological Reviews, v. 82, n. 1, p. 131-152, 2002. DOI: 10.1152/physrev.00028.2001.
- RICHTER, Erik A.; HARGREAVES, Mark. Exercise, GLUT4, and skeletal muscle glucose uptake. Physiological Reviews, v. 93, n. 3, p. 993-1017, 2013. DOI: 10.1152/physrev.00038.2012.
- SCHOENFELD, Brad J. et al. Dose-response relationship between weekly resistance training volume and increases in muscle mass: A systematic review and meta-analysis. Journal of Sports Sciences, v. 35, n. 11, p. 1073-1082, 2017. DOI: 10.1080/02640414.2016.1210197.
- MORTON, Robert W. et al. A systematic review, meta-analysis and meta-regression of the effect of protein supplementation on resistance training-induced gains in muscle mass and strength in healthy adults. British Journal of Sports Medicine, v. 52, n. 6, p. 376-384, 2018. DOI: 10.1136/bjsports-2017-097608.
Carregando comentários…