Metabolismo do Transtorno de Fluxo Biliar e Ácidos Biliares: Sinalização por FXR, TGR5 e o Eixo Fígado-Intestino-Microbiota
Neste artigo
- 1. A Biossíntese Hepática e a Circulação Entero-Hepática
- 2. A Modificação pela Microbiota: Ácidos Biliares Primários vs. Secundários
- 3. O Receptor Nuclear FXR e o Eixo Endócrino do FGF19
- 4. O Receptor de Membrana TGR5 e a Regulação Energética Sistêmica
- 5. Matriz Comparativa: Ácidos Biliares Primários vs. Secundários
- 6. Perguntas Frequentes (FAQ Técnico)
- 7. Referências Bibliográficas e Documentações Oficiais
Por mais de um século, os ácidos biliares foram classificados na fisiologia clássica meramente como surfactantes biológicos e detergentes digestivos, cuja única finalidade consistia em emulsificar gorduras da dieta no lúmen do intestino delgado para facilitar a ação lipolítica das enzimas pancreáticas. Nas últimas duas décadas, contudo, a biologia molecular e a endocrinologia celular revolucionaram essa concepção simplista: os ácidos biliares são reconhecidos hoje como potentes hormônios metabólicos e moléculas de sinalização sistêmica, atuando na regulação da homeostase glicêmica, metabolismo lipídico, sensibilidade à insulina e termogênese.
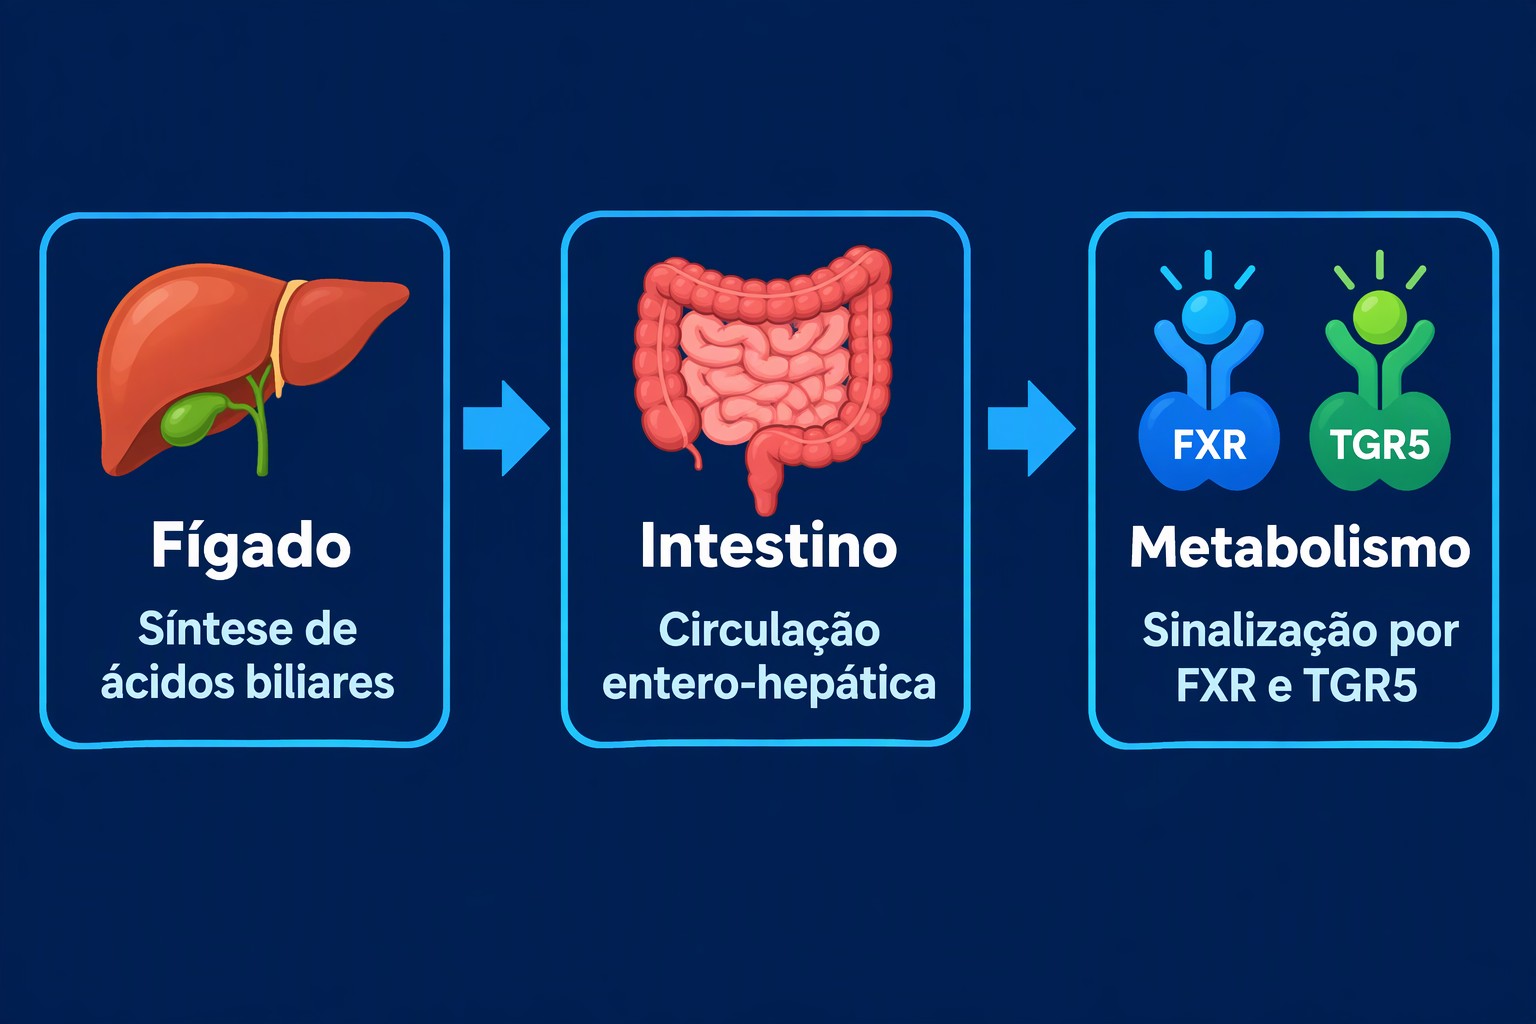
Através da ligação de alta afinidade com o receptor farnesoide X (FXR - Farnesoid X Receptor) no núcleo celular e com o receptor de membrana acoplado à proteína G (TGR5 / GPBAR1) na superfície celular, os ácidos biliares primários e secundários coordenam um sofisticado circuito de comunicação inter-órgãos denominado eixo fígado-intestino-microbiota. Neste artigo aprofundado, examinamos as vias de biossíntese hepática via citocromo P450, a circulação entero-hepática, a desconjugação e desidroxilação microbiana no cólon, a secreção do hormônio enterocítico FGF19 e o impacto terapêutico agonista em doenças metabólicas como o diabetes mellitus tipo 2 e a esteatose hepática metabólica.
1. A Biossíntese Hepática e a Circulação Entero-Hepática
A síntese de ácidos biliares representa a principal via quantitativa de eliminação e depuração de colesterol no organismo humano, consumindo cerca de 500 mg de colesterol diariamente no parênquima hepático. A produção divide-se em duas rotas bioquímicas primárias:
- A Via Clássica (Neutra): Responsável por aproximadamente 75% a 90% da síntese total de ácidos biliares em condições normais. Ocorre na matriz do retículo endoplasmático do hepatócito, tendo como enzima marca-passo limitante a colesterol 7alfa-hidroxilase (CYP7A1). Esta via culmina na síntese dos dois ácidos biliares primários humanos: o ácido cólico (CA) e o ácido quenodesoxicólico (CDCA);
- A Via Alternativa (Ácida): Iniciada nos macrófagos e em tecidos periféricos pela enzima esterol 27-hidroxilase (CYP27A1) e continuada no fígado pela oxiesterol 7alfa-hidroxilase (CYP7B1), gerando predominantemente ácido quenodesoxicólico.
Antes de serem ativamente secretados na bile canalicular através da bomba exportadora de sais biliares (BSEP / ABCB11), os ácidos biliares primários sofrem conjugação obrigatória com os aminoácidos glicina ou taurina (na proporção fisiológica de 3:1 em humanos), transformando-se em sais biliares anfipáticos hidrossolúveis.
Armazenados na vesícula biliar durante o período interdigestivo, os sais biliares são ejetados no duodeno sob estímulo do hormônio colecistoquinina (CCK) após a ingestão de lipídios. Ao alcançarem o íleo terminal, cerca de 95% de todo o pool de ácidos biliares é reabsorvido ativamente pelo transportador apical de sódio-ácidos biliares (ASBT / SLC10A2), retornando ao fígado via veia porta através do polipeptídeo cotransportador de sódio-taurocolato (NTCP / SLC10A1). Esse ciclo contínuo, denominado circulação entero-hepática, repete-se de 6 a 10 vezes ao dia com perda fecal residual de apenas 5%, a qual é reposta pela síntese hepática de novo.
Dinâmica da Circulação Entero-Hepática:
+ Síntese Hepática De Novo: 0,5 g/dia (Reposição exata da perda fecal). + Pool Total Circulante: 3 a 5 g de ácidos biliares reciclados continuamente. + Taxa de Eficiência no Íleo: 95% de reabsorção ativa via transportador ASBT. + Entrada no Fígado: Captação portal de alta afinidade via transportador NTCP.
2. A Modificação pela Microbiota: Ácidos Biliares Primários vs. Secundários
Os 5% de ácidos biliares que escapam da reabsorção ileal e ingressam no lúmen do ceco e do cólon são submetidos a um intenso processamento bioquímico catalisado por enzimas expressas exclusivamente pela microbiota intestinal anaeróbia:
- Desconjugação por Hidrolases (BSH): Bactérias comensais dos gêneros Bacteroides, Lactobacillus, Bifidobacterium e Clostridium expressam a enzima hidrolase de sais biliares (BSH), que cliva a ligação peptídica com a glicina ou taurina, liberando os ácidos biliares livres não conjugados;
- 7alfa-Desidroxilação Microbiana: Bactérias especializadas do filo Bacillota (notadamente Clostridium scindens) expressam o operon multienzimático Bai (bile acid inducible), que remove o grupo hidroxila da posição C-7:
- O ácido cólico (CA) é transformado em ácido desoxicólico (DCA);
- O ácido quenodesoxicólico (CDCA) é transformado em ácido litocólico (LCA).
Essa modificação microbiana altera dramaticamente as propriedades hidrofóbicas dos compostos: enquanto os ácidos biliares primários conjugados são hidrofílicos, os ácidos secundários (especialmente DCA e LCA) são acentuadamente hidrofóbicos e lipofílicos, alterando drasticamente sua seletividade e afinidade de ligação com os receptores celulares FXR e TGR5.
3. O Receptor Nuclear FXR e o Eixo Endócrino do FGF19
O Receptor Farnesoide X (FXR / NR1H4) é um receptor nuclear ativado por ligantes lipídicos, amplamente expresso nos hepatócitos e nos enterócitos do íleo terminal. O ácido quenodesoxicólico (CDCA) é o ligante agonista endógeno mais potente do FXR, seguido pelo ácido cólico, ácido desoxicólico e ácido litocólico.
Quando ativado nos enterócitos ileais pelos ácidos biliares reabsorvidos:
- Transativação do Hormônio FGF19: O FXR dimeriza-se com o receptor retinóide X (RXR) e liga-se a elementos de resposta a hormônios no promotor do gene Fgf19, estimulando a síntese e secreção maciça do fator de crescimento de fibroblastos 19 (FGF19) na circulação portal;
- Feedback Negativo no Fígado: O FGF19 atinge os sinusoides hepáticos e liga-se ao complexo receptor FGFR4/Beta-Klotho na membrana do hepatócito. Essa ligação deflagra uma cascata de fosforilação intracelular via ERK1/2 e JNK, que inibe fortemente a transcrição da enzima limitante CYP7A1;
- Mecanismo Hepatocitário Paralelo via SHP: Simultaneamente, o FXR ativado diretamente no fígado induz a expressão do repressor transcricional SHP (Small Heterodimer Partner), que se associa ao fator LRH-1 e bloqueia o promotor da CYP7A1.
Esse duplo circuito de retroalimentação negativa assegura que a concentração intra-hepática de ácidos biliares nunca atinja níveis citotóxicos que possam causar colestase, apoptose celular ou estresse oxidativo no parênquima hepático.
4. O Receptor de Membrana TGR5 e a Regulação Energética Sistêmica
Enquanto o FXR atua a montante no núcleo celular, o TGR5 (GPBAR1) opera como um sensor rápido na membrana plasmática acoplado à proteína G estimulatória (Gs). O agonista natural de maior afinidade para o TGR5 é o ácido biliar secundário litocólico (LCA), seguido de perto pelo ácido desoxicólico (DCA).
A ativação do TGR5 desencadeia efeitos metabólicos benéficos de longo alcance em múltiplos tecidos:
Efeitos Fisiológicos da Ativação do TGR5:
+ Células L do Íleo e Cólon: O influxo de cálcio e o acúmulo de AMPc estimulados pelo TGR5 deflagram a exocitose robusta do hormônio enteroglucagon GLP-1 (Glucagon-Like Peptide-1), potencializando a secreção pancreática de insulina glicose-dependente e promovendo saciedade hipotalâmica central. + Tecido Muscular e Gordura Marrom: O TGR5 induz a expressão da enzima desiodase tipo 2 (DIO2), que converte o hormônio tireoidiano inativo tiroxina (T4) na forma metabolicamente ativa tri-iodotironina (T3) localmente, elevando o consumo de oxigênio e a taxa metabólica basal de repouso. + Macrófagos Teciduais e Células de Kupffer: A sinalização por TGR5 inibe a fosforilação do fator nuclear NF-kB, bloqueando a transcrição de citocinas inflamatórias como TNF-alfa e IL-6, exercendo potente ação anti-inflamatória protetora contra a esteato-hepatite metabólica.
5. Matriz Comparativa: Ácidos Biliares Primários vs. Secundários
| Parâmetro Bioquímico | Ácidos Biliares Primários (CA e CDCA) | Ácidos Biliares Secundários (DCA e LCA) |
|---|---|---|
| Local de Síntese Primária | Fígado (Hepatócito via CYP7A1 e CYP27A1) | Lúmen do Cólon (Modificação bacteriana anaeróbia) |
| Enzimas Responsáveis | Enzimas do citocromo P450 humano | BSH (Hidrolase) e Bai (7alfa-desidroxilase microbiana) |
| Perfil Físico-Químico | Mais hidrofílicos e polares | Acentuadamente hidrofóbicos e lipofílicos |
| Afinidade Preferencial de Receptor | Agonistas potentes de FXR nuclear | Agonistas potentes de TGR5 de membrana |
| Função Metabólica Dominante | Digestão micelar de gorduras e controle CYP7A1 | Estímulo à secreção de GLP-1 e termogênese |
| Potencial de Citotoxicidade | Baixo em concentrações fisiológicas | Moderado/Alto se acumulados cronicamente no cólon |
6. Perguntas Frequentes (FAQ Técnico)
1. Como os ácidos biliares melhoram a sensibilidade à insulina em pacientes com obesidade?
A melhora da sensibilidade à insulina é mediada pela dupla ação FXR-TGR5. A ativação do receptor TGR5 nas células neuroendócrinas intestinais estimula a liberação contínua de GLP-1, que melhora a função secretora das ilhotas pancreáticas e reduz o esvaziamento gástrico. Paralelamente, o FXR hepático reprime a expressão de genes lipogênicos (como SREBP-1c), reduzindo o acúmulo de diacilgliceróis e ceramidas no fígado, revertendo a resistência hepática à insulina.
2. Por que o uso de sequestrantes de ácidos biliares reduz os níveis de colesterol sanguíneo?
Fármacos sequestrantes de ácidos biliares (como a colestiramina) são resinas não absorvíveis que se ligam aos ácidos biliares no lúmen intestinal, impedindo sua reabsorção pelo transportador ASBT no íleo e forçando sua eliminação nas fezes. A interrupção da circulação entero-hepática alivia a inibição por feedback sobre a CYP7A1, obrigando o fígado a converter grandes quantidades de colesterol circulante em novos ácidos biliares, o que aumenta a expressão de receptores de LDL e reduz o colesterol sérico.
3. Qual é o papel da cirurgia bariátrica na modulação do pool de ácidos biliares?
Procedimentos bariátricos (como o Bypass Gástrico em Y de Roux) redirecionam o fluxo digestivo, fazendo com que os ácidos biliares atinjam o íleo terminal muito mais precocemente e em concentrações mais elevadas. Essa exposição luminal acelerada provoca um pico transitório e maciço na secreção de FGF19 e GLP-1, explicando a rápida remissão clínica do diabetes tipo 2 observada em pacientes dias após a cirurgia, antes mesmo de ocorrer perda substancial de peso corporal.
4. A microbiota intestinal alterada por antibióticos afeta o metabolismo de gorduras?
Sim. O uso de antibióticos de amplo espectro reduz dramaticamente a população de bactérias anaeróbias responsáveis pela desconjugação e 7alfa-desidroxilação no cólon. Isso leva ao acúmulo de ácidos biliares primários conjugados e à escassez de ácidos secundários, diminuindo a ativação do receptor TGR5, reduzindo a secreção de GLP-1 e alterando a taxa metabólica sistêmica.
5. Ácidos biliares secundários hidrofóbicos podem ser prejudiciais à saúde do cólon?
Em concentrações fisiológicas normais, eles desempenham funções hormonais protetoras. No entanto, dietas hiperlipídicas prolongadas estimulam a superprodução de bile, gerando concentrações luminais excessivas de ácido desoxicólico (DCA) e ácido litocólico (LCA) no cólon. Em níveis suprafisiológicos crônicos, esses ácidos hidrofóbicos exercem efeito detergente sobre o epitélio intestinal, promovendo estresse oxidativo, dano ao DNA e inflamação crônica associada a pólipos e carcinogênese colorretal.
7. Referências Bibliográficas e Documentações Oficiais
- MAKISHIMA, Makoto et al. Identification of a nuclear receptor for bile acids. Science, v. 284, n. 5418, p. 1362-1365, 1999.
- THOMAS, Charles et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metabolism, v. 10, n. 3, p. 167-177, 2009.
- KAWAMATA, Yuji et al. A G protein-coupled receptor responsive to bile acids. Journal of Biological Chemistry, v. 278, n. 11, p. 9435-9440, 2003.
- INAGAKI, Tadashi et al. Fibroblast growth factor 15 functions as an enterohepatic signal to regulate bile acid homeostasis. Cell Metabolism, v. 2, n. 4, p. 217-225, 2005.
- RIDLON, Jason M.; KANG, Dong-Jin; HYLEMON, Phillip B. Bile salt biotransformations by human intestinal microbiota. Journal of Lipid Research, v. 47, n. 2, p. 241-259, 2006.
Carregando comentários…