Autofagia, Biogênese Mitocondrial e Jejum Intermitente: Sinalização Celular do Eixo AMPK-SIRT1-PGC-1α e Longevidade Saudável
Neste artigo
- 1. A Biologia da Autofagia e a Maquinaria do Autofagossomo
- 2. O Eixo Bioenergético da Longevidade: AMPK, SIRT1 e PGC-1α
- 3. O Antagonismo Recíproco: mTORC1 vs. Autofagia
- 4. Dinâmica Mitocondrial: O Ciclo de Fusão, Fissão e Mitofagia
- 5. Cronograma Temporal das Fases Metabólicas do Jejum
- 6. Aplicação Clínica: Protocolos de Jejum e Nutracêuticos Senolíticos
- 7. Perguntas Frequentes (FAQ)
- Referências Bibliográficas e Literatura Científica
O envelhecimento biológico e o desenvolvimento de doenças crônicas não transmissíveis (como diabetes mellitus tipo 2, esteatose hepática, doenças cardiovasculares e desordens neurodegenerativas) estão intimamente associados ao declínio da capacidade celular de controle de qualidade e renovação de organelas. Ao longo do ciclo de vida, as células acumulam agregados proteicos mal enovelados, fragmentos de retículo endoplasmático disfuncionais e, criticamente, mitocôndrias senescentes despolarizadas que produzem quantidades massivas de Espécies Reativas de Oxigênio (EROs / Radicais Livres).
Em 2016, a concessão do Prêmio Nobel de Fisiologia ou Medicina a Yoshinori Ohsumi consolidou o reconhecimento científico da Autofagia (do grego, “comer a si próprio”) como o principal mecanismo catabólico conservado pela evolução para a degradação, limpeza e reciclagem de componentes celulares danificados.
Dentre as intervenções comportamentais mais potentes para induzir a autofagia fisiológica e estimular a criação de novas organelas bioenergéticas (Biogênese Mitocondrial), o Jejum Intermitente (Restrição Alimentar Temporizada) destaca-se como a ferramenta mais estudada pela biologia molecular contemporânea.
Neste artigo aprofundado, dissecamos as cascatas de sinalização do eixo AMPK – SIRT1 – PGC-1α, o antagonismo recíproco entre o complexo mTORC1 e a autofagia, a mecânica da Mitofagia seletiva via PINK1/Parkin, o cronograma das fases metabólicas do jejum e a aplicação clínica de protocolos nutricionais para a promoção da longevidade saudável.
1. A Biologia da Autofagia e a Maquinaria do Autofagossomo
A autofagia macrocelular não é um processo destrutivo ou desordenado, mas sim um programa altamente orquestrado de rejuvenescimento citoplasmático.
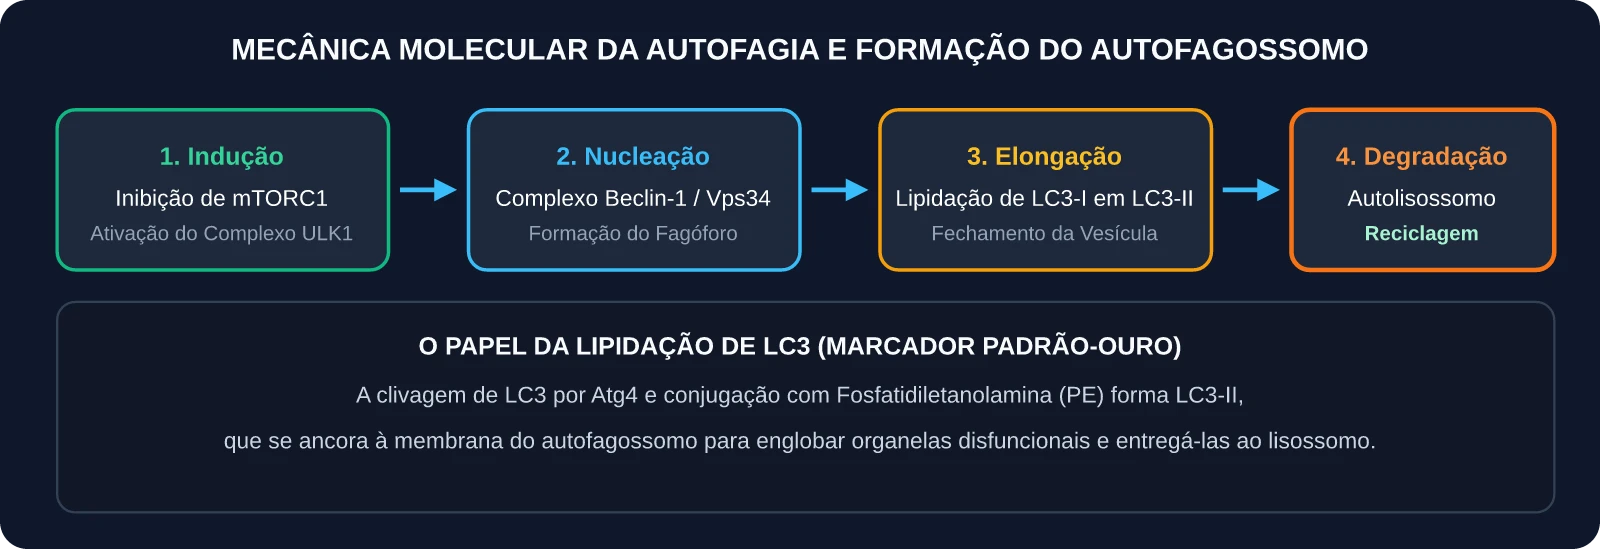
As Quatro Fases Moleculares da Autofagia:
- Indução e Desrepressão: Sob condições de abundância de nutrientes (insulina alta, glicose e aminoácidos de cadeia ramificada), o complexo mTORC1 fosforila e inativa a quinase ULK1 (no resíduo Ser757). Quando o aporte nutricional cessa durante o jejum, a AMPK desfosforila e ativa o Complexo ULK1 (ULK1-Atg13-FIP200-Atg101), deflagrando o início do processo de limpeza.
- Nucleação do Fagóforo: O complexo ULK1 recruta o complexo da PI3K Classe III (composto por Beclin-1, Vps34, Vps15 e Atg14L) para o retículo endoplasmático, gerando domínios enriquecidos em Fosfatidilinositol 3-Fosfato (PI3P) que formam uma membrana em formato de crescente denominada Fagóforo.
- Elongação e Lipidação de LC3 (Marcador Padrão-Ouro): A proteína citosólica solúvel LC3-I é clivada pela protease Atg4 e conjugada ao lipídio Fosfatidiletanolamina (PE) pelo sistema Atg7/Atg3, transformando-se em LC3-II. A forma lipidada LC3-II ancora-se firmemente às faces interna e externa da membrana, permitindo que a vesícula se feche em torno das organelas danificadas, formando o Autofagossomo.
- Fusão e Degradação Lisossômica: O autofagossomo maduro transloca-se ao longo dos microtúbulos e funde-se com o lisossomo (formando o Autolisossomo). As hidrolases ácidas lisossômicas degradam o conteúdo sequestrado, liberando aminoácidos livres, ácidos graxos e nucleotídeos de volta ao citosol para a síntese de novas proteínas e geração de ATP.
2. O Eixo Bioenergético da Longevidade: AMPK, SIRT1 e PGC-1α
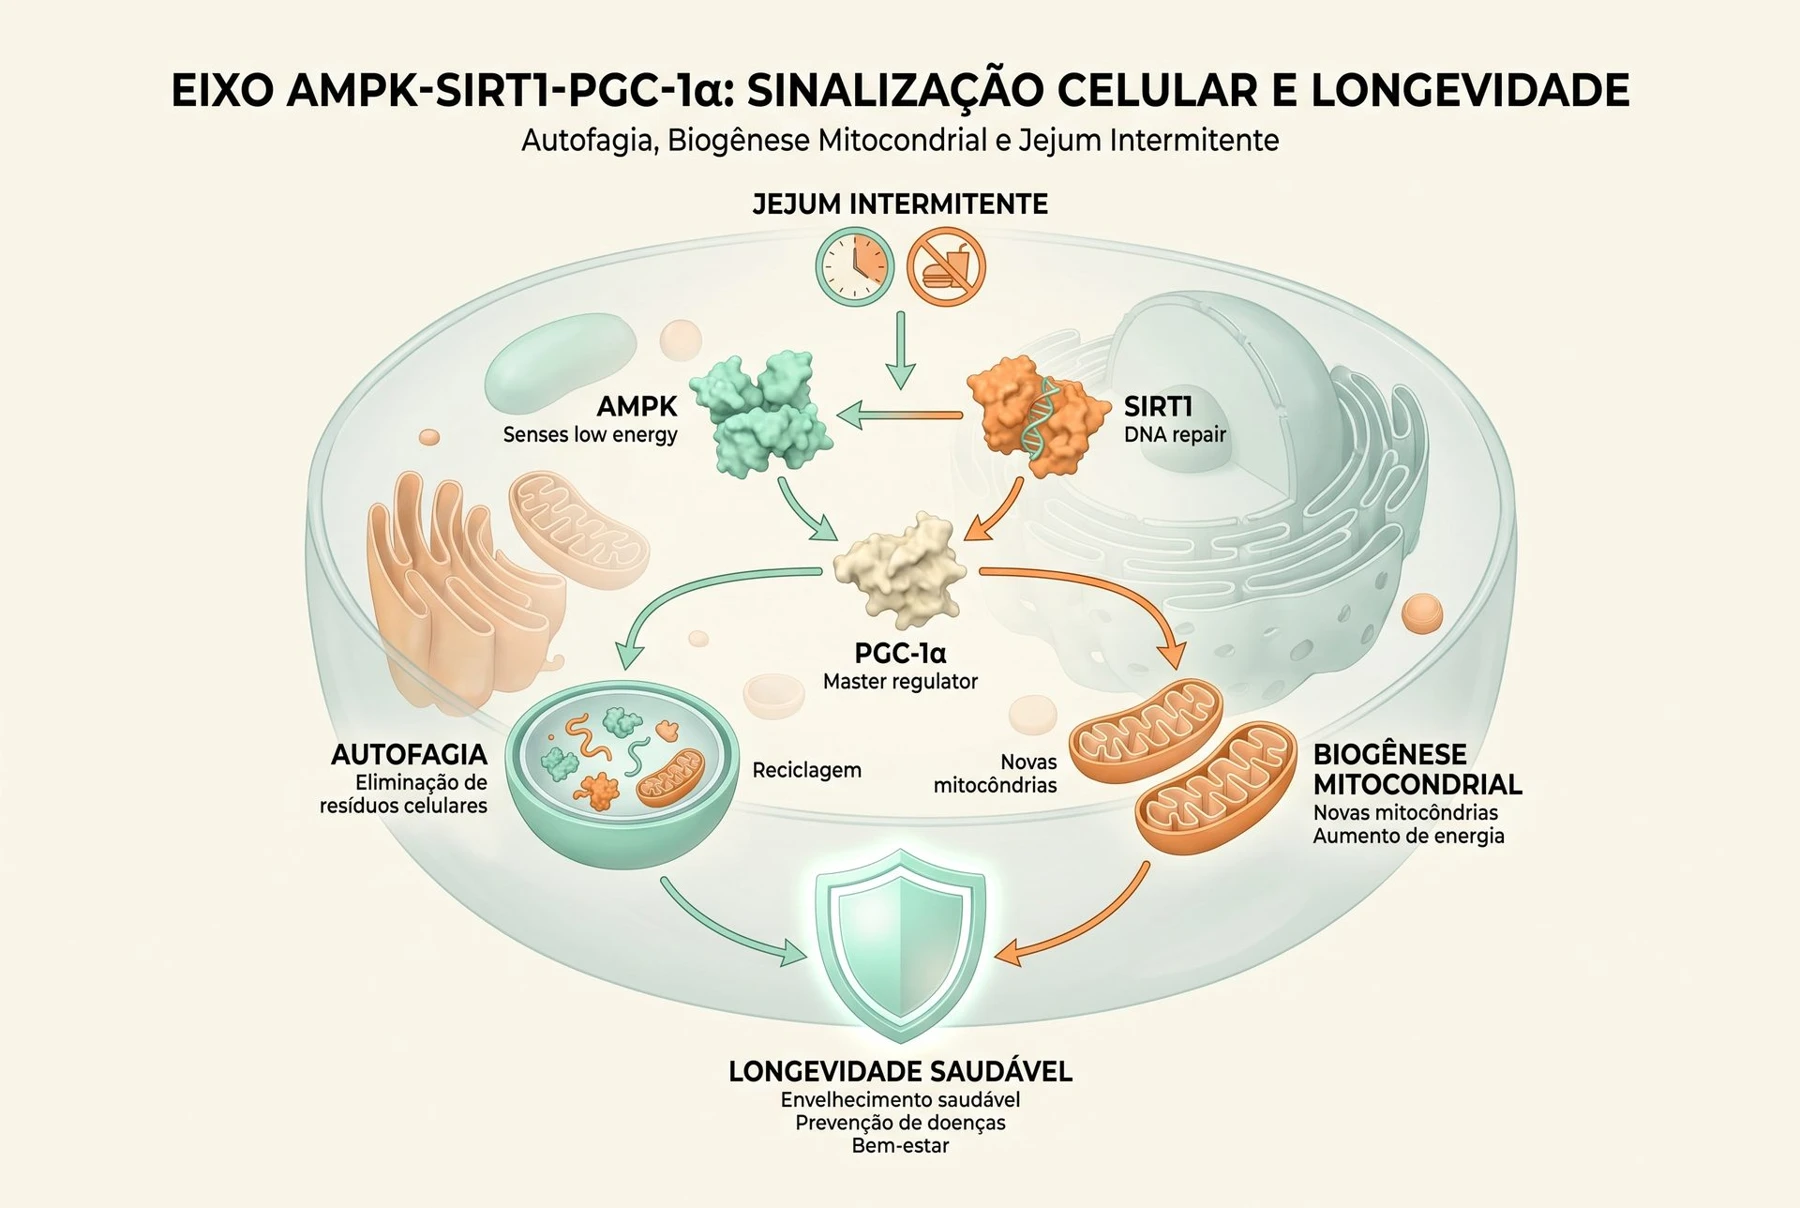
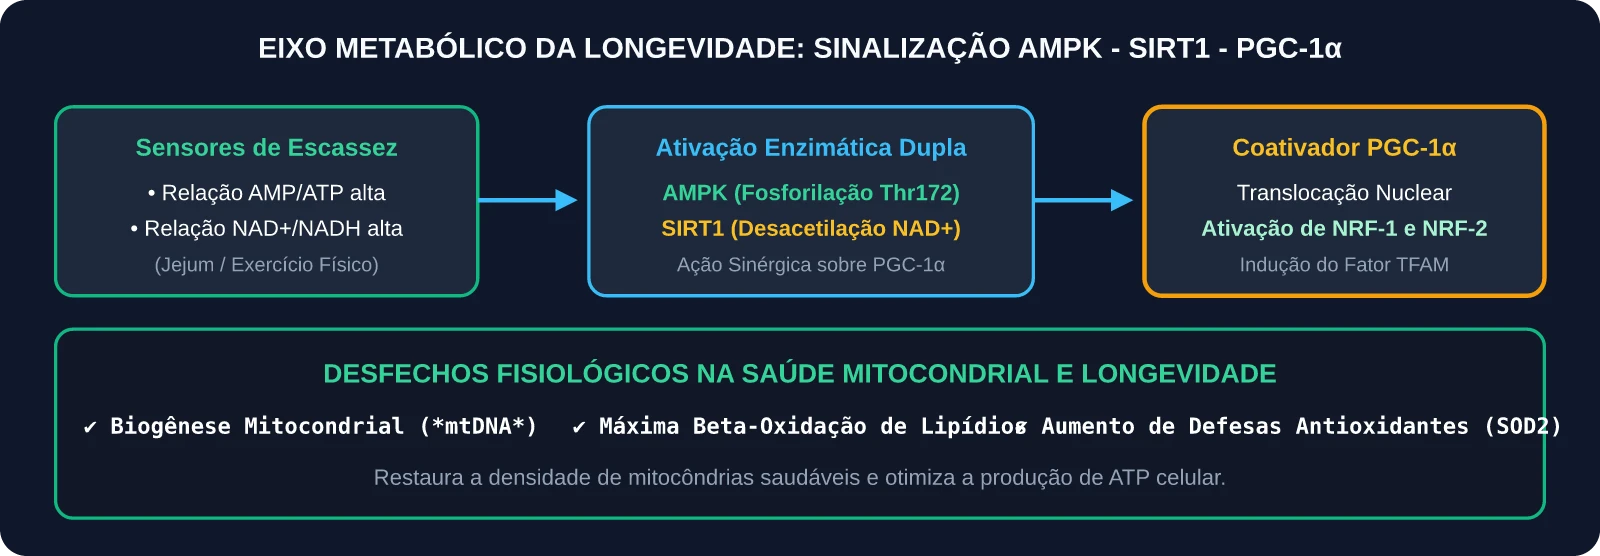
A transição entre o estado de armazenamento anabólico e o estado de reciclagem e biogênese energética é governada por uma tríade molecular que atua como o principal sensor de integridade metabólica da célula:
2.1. AMPK (AMP-Activated Protein Kinase) — O Sensor de Carga Energética
Quando os níveis de ATP caem em decorrência do jejum ou da contração muscular, a relação intracelular AMP/ATP e ADP/ATP eleva-se agudamente. O AMP liga-se à subunidade γ da AMPK, permitindo que a quinase upstream LKB1 fosforile a subunidade α catalítica no resíduo Thr172:
- Ativação da Autofagia: Fosforila diretamente a ULK1 (nos resíduos Ser317 e Ser777).
- Inibição de Vias Anabólicas: Fosforila a ACC (destravando a CPT-1 na mitocôndria) e inibe o complexo Raptor do mTORC1.
- Elevação de NAD+: Estimula a enzima Nampt (Nicotinamida Fosforribosiltransferase), aumentando a disponibilidade celular do cofator NAD+.
2.2. SIRT1 (Sirtuína 1) — A Deacetilase Dependente de NAD+
A SIRT1 é uma desacetilase de histonas e fatores de transcrição ativada exclusivamente por níveis elevados de NAD+:
- Desacetila e ativa os fatores de transcrição FoxO1 e FoxO3a, que aumentam a transcrição de genes essenciais da autofagia (como Atg5, Atg7 e Beclin-1).
- Desacetila múltiplos resíduos de lisina no coativador mestre PGC-1α, permitindo que ele atinja sua conformação de máxima atividade funcional.
2.3. PGC-1α (Peroxisome Proliferator-Activated Receptor-γ Coactivator-1α) — O Maestro da Biogênese
O PGC-1α é o regulador transcricional primário da biogênese mitocondrial. Após ser fosforilado pela AMPK e desacetilado pela SIRT1, o PGC-1α migra para o núcleo celular e coativa:
- NRF-1 e NRF-2 (Nuclear Respiratory Factors 1 e 2): Promovem a transcrição nuclear dos componentes proteicos da Cadeia de Transporte de Elétrons (Complexos I a V).
- TFAM (Mitochondrial Transcription Factor A): Proteína que transloca para o interior da mitocôndria e governa a replicação e transcrição direta do DNA Mitocondrial (mtDNA).
3. O Antagonismo Recíproco: mTORC1 vs. Autofagia
A regulação da autofagia opera como uma balança bioquímica de gangorra: é fisiologicamente impossível manter a ativação máxima da autofagia na presença concomitante de sinalização hiperativa de mTORC1.
Tabela 1: Matriz Bioquímica de Antagonismo entre as Vias mTORC1 e AMPK
| Parâmetro de Comparação | Via mTORC1 (Sensor de Abundância Nutricional) | Via AMPK / SIRT1 (Sensor de Escassez e Jejum) |
|---|---|---|
| Gatilhos Moleculares de Ativação | Insulina alta, Glicose sérica elevada, Aminoácidos (Leucina, Arginina) | Relação AMP/ATP alta, NAD+ elevado, depleção de glicogênio |
| Status da Autofagia | Fortemente Inibida (Fosforilação inibitória de ULK1 em Ser757) | Altamente Ativada (Fosforilação ativadora de ULK1 em Ser317/777) |
| Destino dos Agregados Proteicos | Acúmulo progressivo intracelular | Degradação e reciclagem nos autolisossomos |
| Síntese de Novas Proteínas | Ativada (Fosforilação de p70S6K e 4E-BP1) | Suprimida temporariamente para poupança energética |
| Oxidação de Ácidos Graxos | Bloqueada (Lipogênese estimulada via SREBP-1c) | Máxima (CPT-1 destravada e beta-oxidação acelerada) |
| Biogênese Mitocondrial | Baixa a moderada | Máxima (Coativação de PGC-1α, NRF-1 e TFAM) |
O erro biológico das sociedades industrializadas contemporâneas reside no estado pós-prandial contínuo: ao consumir alimentos a cada 2 ou 3 horas desde o acordar até antes de dormir, o complexo mTORC1 permanece ininterruptamente ativado, suprimindo o ciclo natural de limpeza da autofagia e acelerando o acúmulo de dano oxidativo mitocondrial.
4. Dinâmica Mitocondrial: O Ciclo de Fusão, Fissão e Mitofagia
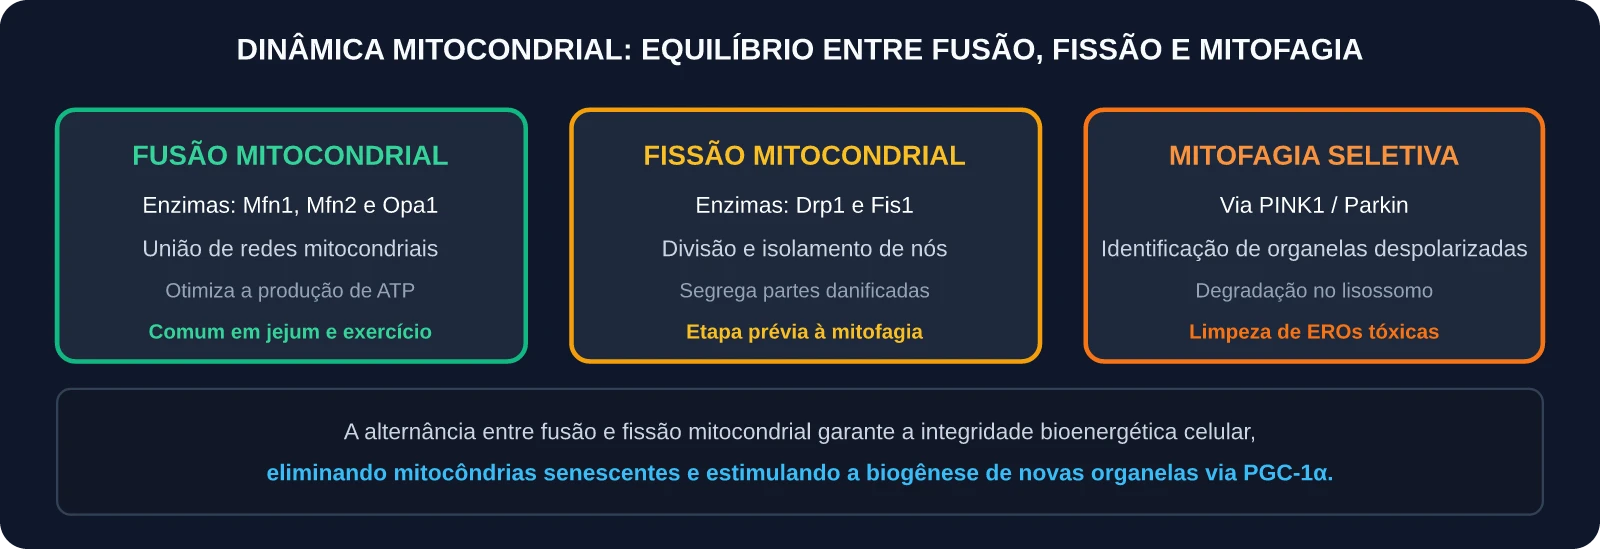
As mitocôndrias não são organelas estáticas e isoladas; elas operam como uma rede tubular dinâmica e interconectada em constante processo de remodelação.
4.1. Fusão Mitocondrial (Mfn1, Mfn2 e Opa1)
Em situações de alta demanda energética e estresse metabólico moderado (como durante o jejum ou exercício aeróbio prolongado), as mitocôndrias saudáveis fundem-se em redes tubulares gigantescas:
- Mitofusinas 1 e 2 (Mfn1/Mfn2): Promovem a fusão das membranas mitocondriais externas.
- Opa1 (Optic Atrophy 1): Coordena a fusão das membranas internas e a integridade das cristas mitocondriais.
- Benefício: Aumenta a eficiência da fosforilação oxidativa e permite o compartilhamento de proteínas funcionais e cópias intactas de mtDNA entre organelas.
4.2. Fissão Mitocondrial e Mitofagia (Drp1, Fis1 e Via PINK1/Parkin)
Quando uma porção da rede mitocondrial sofre dano oxidativo severo e perde seu potencial de membrana eletroquímico (ΔΨm), ela precisa ser isolada da rede para não contaminar as organelas saudáveis:
- Fissão mediada por Drp1: A proteína citosólica Drp1 (Dynamin-Related Protein 1) é recrutada para a membrana externa pela proteína adaptadora Fis1, estrangulando e dividindo a mitocôndria danificada.
- Acúmulo de PINK1: Na mitocôndria despolarizada, a quinase PINK1 não consegue ser clivada e acumula-se na membrana externa.
- Recrutamento de Parkin (E3 Ubiquitina Ligase): A PINK1 fosforila a ubiquitina e ativa a ligase Parkin, que cobre a mitocôndria com cadeias de poliubiquitina.
- Reconhecimento por Adaptadores (p62/SQSTM1): Proteínas adaptadoras ligam-se à ubiquitina e à proteína LC3-II do fagóforo, direcionando a mitocôndria fragmentada para a destruição seletiva no lisossomo (Mitofagia).
5. Cronograma Temporal das Fases Metabólicas do Jejum
Os efeitos fisiológicos do jejum intermitente evoluem de forma previsível conforme as reservas energéticas do organismo são mobilizadas:
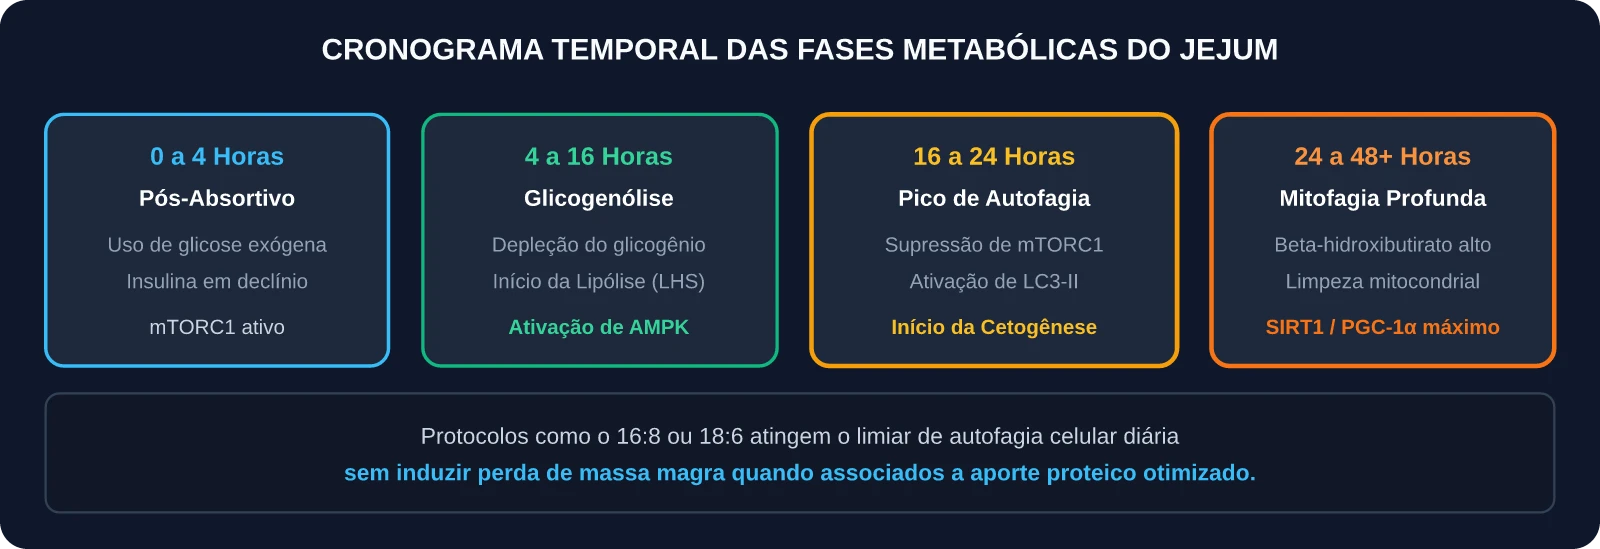
Tabela 2: Fases Temporais, Substratos Energéticos e Gatilhos Celulares do Jejum
| Janela de Tempo | Fase Metabólica Primária | Concentração de Insulina | Substrato Energético Predominante | Status da Autofagia e Mitocôndrias |
|---|---|---|---|---|
| 0 a 4 Horas | Estado Pós-Absortivo | Elevada a Moderada | Glicose exógena e aminoácidos alimentares | Inibida (mTORC1 altamente ativo) |
| 4 a 16 Horas | Glicogenólise Hepática | Níveis Basais em declínio | Glicogênio hepático e ácidos graxos livres | Início da Desrepressão (Ativação progressiva de AMPK) |
| 16 a 24 Horas | Pico de Autofagia Celular | Níveis Mínimos | Beta-oxidação lipídica e Gliconeogênese | Ativação Intensa (Inibição de mTORC1, pico de LC3-II) |
| 24 a 48+ Horas | Cetogênese Profunda e Mitofagia | Suprimida | Corpos Cetônicos (β-hidroxibutirato) e AGLs | Mitofagia Máxima e estimulação transcricional de PGC-1α |
6. Aplicação Clínica: Protocolos de Jejum e Nutracêuticos Senolíticos
Para obter os benefícios de renovação mitocondrial e autofagia sem comprometer a massa muscular esquelética ou a Taxa Metabólica Basal, a literatura clínica recomenda a estruturação de protocolos periódicos:
6.1. Protocolo 16:8 (Alimentação com Restrição de Tempo / TRE)
- Estrutura: Jejum de 16 horas com janela alimentar de 8 horas (ex.: 12:00 às 20:00).
- Indicação: Protocolo sustentável de base diária para melhora da sensibilidade à insulina e indução moderada de autofagia noturna.
6.2. Protocolo 20:4 ou “Warrior Diet” (1x a 2x por semana)
- Estrutura: Jejum de 20 horas com janela alimentar concentrada de 4 horas em dias de descanso do treinamento físico.
- Indicação: Atingimento profundo do pico de lipólise hepática, esvaziamento de glicogênio e renovação de macrófagos teciduais.
6.3. Compostos Bioativos Miméticos de Restrição Calórica (CRM)
Substâncias com comprovação experimental na amplificação das vias de autofagia mesmo em janelas alimentadas:
- Espermidina (1mg a 3mg/dia): Poliamina natural que inibe a acetiltransferase EP300, ativando diretamente a lipidação de LC3 e promovendo longevidade cardiovascular em ensaios populacionais.
- Resveratrol e Pterostilbeno (150mg a 250mg/dia): Potentes ativadores alostéricos da SIRT1, mimetizando a desacetilação de PGC-1α.
- Urolitina A (500mg a 1000mg/dia): Metabólito derivado de elagitaninos da romã pela microbiota intestinal, validado em ensaios clínicos humanos na ativação seletiva da mitofagia e aprimoramento da força muscular em idosos.
- Berberina e Quercetina: Ativadores de AMPK e senolíticos naturais que auxiliam na eliminação de células senescentes estéreis (SASP).
7. Perguntas Frequentes (FAQ)
1. O jejum intermitente causa perda de massa muscular (catabolismo proteico)?
Não, desde que o aporte total diário de proteínas seja adequado (1,6g a 2,2g/kg de peso) e o indivíduo pratique treinamento resistido com pesos. Durante as primeiras 24 horas de jejum, a secreção do Hormônio do Crescimento (GH) eleva-se em até 300% a 500%, atuando como um potente protetor contra a proteólise muscular e direcionando o consumo energético para a oxidação de ácidos graxos livres.
2. O café preto ou chá sem açúcar quebram a autofagia durante o jejum?
Não. Pelo contrário: compostos polifenólicos presentes no café (como o ácido clorogênico) e no chá verde (como o galato de epigalocatequina – EGCG) estimulam a fosforilação da AMPK e induzem a autofagia no fígado e no músculo esquelético, potencializando a limpeza celular sem fornecer calorias ou elevar a insulina.
3. Adoçantes artificiais (como sucralose ou aspartame) afetam a autofagia?
Embora não contenham calorias diretas, alguns adoçantes artificiais podem estimular receptores gustativos de doce no trato gastrointestinal (receptores T1R2/T1R3), deflagrando uma liberação cefálica de pequenas quantidades de insulina em indivíduos sensíveis. Para garantir a pureza máxima do sinal de autofagia, recomenda-se consumir apenas água, café puro e chás naturais durante a janela de jejum.
4. Como saber se a autofagia celular foi ativada na prática clínica?
Em humanos vivos, a autofagia em tecidos nobres (como cérebro e coração) não pode ser biopsiada rotineiramente. Contudo, utilizamos biomarcadores substitutos (surrogate markers): a queda da insulina de jejum para níveis inferiores a 5 μUI/mL, a elevação de corpos cetônicos séricos (β-hidroxibutirato ≥ 0,5 mmol/L) no sangue capilar e a redução da relação triglicerídeos/HDL correlacionam-se fortemente com a supressão de mTORC1 e ativação do eixo AMPK/SIRT1.
5. Mulheres devem seguir os mesmos protocolos de jejum intermitente que os homens?
Mulheres em idade fértil possuem maior sensibilidade hipotalâmica à disponibilidade energética mediada pelo neuropeptídeo Kisspeptina. Jejum prolongado excessivo (> 18h a 24h) associado a déficit calórico agressivo e alto estresse pode suprimir o eixo gonadotrófico (GnRH / LH / FSH), gerando irregularidades menstruais. Para mulheres, recomenda-se iniciar com protocolos mais suaves (14:10 ou 16:8 em dias alternados) e evitar jejuns longos na fase lútea tardia do ciclo menstrual.
Referências Bibliográficas e Literatura Científica
- OHSUMI, Yoshinori. Historical landmarks of autophagy research. Cell Research, v. 24, n. 1, p. 9-23, 2014. DOI: 10.1038/cr.2013.169.
- KABEYA, Yukiko et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. The EMBO Journal, v. 19, n. 21, p. 5720-5728, 2000. DOI: 10.1038/emboj/19.21.5720.
- CANTÓ, Carles; AUWERX, Johan. AMP-activated protein kinase and its downstream transcriptional pathways. Cellular and Molecular Life Sciences, v. 67, n. 20, p. 3407-3423, 2010. DOI: 10.1007/s00018-010-0454-z.
- DE CABO, Rafael; MATTSON, Mark P. Effects of Intermittent Fasting on Health, Aging, and Disease. The New England Journal of Medicine, v. 381, n. 26, p. 2541-2551, 2019. DOI: 10.1056/NEJMra1905136.
- YOULE, Richard J.; NARENDRA, Derek P. Mechanisms of mitophagy. Nature Reviews Molecular Cell Biology, v. 12, n. 1, p. 9-14, 2011. DOI: 10.1038/nrm3028.
- MADEIRA, Pedro et al. Spermidine in health and disease. Science, v. 359, n. 6374, p. eaan2788, 2018. DOI: 10.1126/science.aan2788.
- ANDREUX, P. A. et al. The mitophagy activator Urolithin A is safe and induces a molecular signature of improved mitochondrial and cellular health in humans. Nature Metabolism, v. 1, n. 6, p. 595-603, 2019. DOI: 10.1038/s42255-019-0073-4.
- HARDIE, D. Grahame. AMPK: positive and negative regulation, and its role in whole-body energy homeostasis. Current Opinion in Cell Biology, v. 33, p. 1-7, 2015. DOI: 10.1016/j.ceb.2014.09.004.
Carregando comentários…