Sarcopenia: síntese proteica, limiar de leucina e sinalização mTORC1
Neste artigo
- 1. O Balanço Proteico Líquido (NPB) e a Cinética de MPS e MPB
- 2. A Bioquímica Molecular da Ativação do Complexo mTORC1
- 3. A Fisiopatologia da Resistência Anabólica na Sarcopenia
- 4. O Músculo Esquelético como Órgão Endócrino e a Mecânica do GLUT4
- 5. Estratégias Nutricionais e Clínicas para Superar o Limiar de Leucina
- 6. O Papel do Treinamento Resistido como Fármaco Molecular
- 7. Perguntas Frequentes (FAQ Clínico)
- 8. Referências Clínicas e Bibliográficas
Durante décadas, o músculo esquelético foi compreendido na medicina convencional sob uma perspectiva quase exclusivamente biomecânica: uma estrutura contrátil passiva destinada à locomoção, sustentação postural e geração de força física. Sob essa ótica limitada, a perda progressiva de massa muscular associada à idade — formalmente classificada como Sarcopenia — era encarada como uma consequência cosmética inevitável da senescência, desprovida de maiores repercussões fisiopatológicas imediatas.
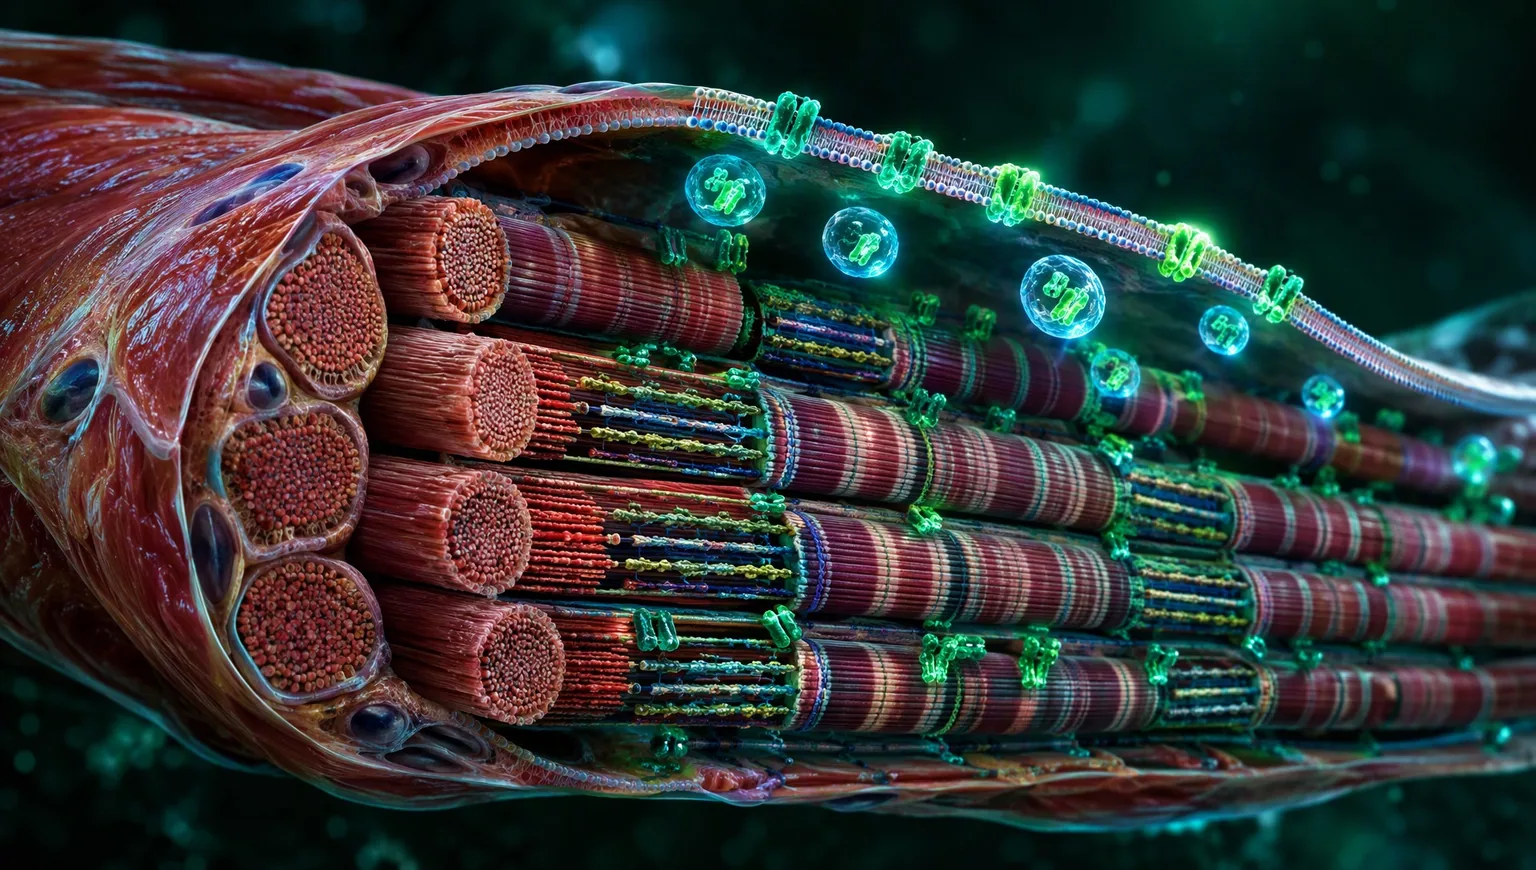
No entanto, as pesquisas contemporâneas em biologia molecular, endocrinologia celular e metabologia consolidaram uma revolução conceitual definitiva: o músculo esquelético é o maior e mais dinâmico órgão metabólico e endócrino do corpo humano. Responsável por mais de 75% a 80% de todo o clearance de glicose pós-prandial no organismo sadio e pelo principal reservatório sistêmico de aminoácidos essenciais, o tecido muscular determina a sensibilidade à insulina, a taxa metabólica basal, a capacidade de oxidação lipídica e a resiliência imunológica ao longo de toda a vida.
Quando a integridade muscular é comprometida pelo binômio da Resistência Anabólica (a incapacidade progressiva dos miócitos de responder aos estímulos fisiológicos normais de hiperaminoacidemia e contração mecânica) e da sarcopenia, desencadeia-se uma cascata catastrófica de disfunções sistêmicas: inflamação crônica de baixo grau (inflammaging), esteatose hepática metabólica (MASLD), desregulação glicêmica e vulnerabilidade a fraturas osteoporóticas.
Neste dossiê analítico do MetaboLeve, exploramos os mecanismos moleculares fundamentais da regulação muscular: a bioquímica da Síntese Proteica Muscular (MPS) e Degradação Proteica Muscular (MPB), o papel regulador do sensor intracelular de leucina (Sestrin2) na ativação do complexo mTORC1, as vias de translocação do transportador de glicose GLUT4 dependentes e independentes de insulina, a refratariedade pós-prandial do envelhecimento e estratégias nutricionais rigorosamente calibradas para superar o limiar anabólico.

1. O Balanço Proteico Líquido (NPB) e a Cinética de MPS e MPB
A massa muscular de um indivíduo é determinada pela equação dinâmica do Balanço Proteico Líquido (Net Protein Balance - NPB), que representa a diferença contínua entre a taxa fracionária de síntese de novas proteínas miofibrilares (Muscle Protein Synthesis - MPS) e a taxa de degradação proteica (Muscle Protein Breakdown - MPB):
NPB = MPS - MPB
- Quando MPS > MPB, o tecido encontra-se em anabolismo líquido, havendo acúmulo de proteínas contráteis de actina e miosina.
- Quando MPS < MPB, o tecido encontra-se em catabolismo líquido, com atrofia de fibras musculares.
1.1 O Ciclo Diário de Jejum e Alimentação
No estado de jejum noturno, a MPS opera em níveis basais mínimos (≈0,04% por hora), enquanto a MPB excede ligeiramente a síntese para fornecer aminoácidos livres (como glutamina e alanina) para a gliconeogênese hepática e suporte a tecidos vitais. Ao ingerir uma refeição rica em proteínas completas, a hiperaminoacidemia e a secreção insulínica revertem o balanço: a MPS dispara de 2 a 3 vezes acima do nível basal por uma janela de 2 a 3 horas, enquanto a MPB é suprimida em cerca de 40% a 50% (efeito anticatabólico mediado pela insulina).
1.2 O Conceito de "Muscle-Full Effect" (Saturação Anabólica)
Estudos clássicos com traçadores isotópicos estáveis de fenilalanina e leucina demonstraram que a estimulação da síntese proteica após uma refeição não é linear nem contínua. Mesmo que os níveis plasmáticos de aminoácidos essenciais (EAAs) permaneçam elevados por 4 a 6 horas após a digestão de uma fonte de proteína lenta, a taxa de MPS atinge um pico entre 60 e 90 minutos e retorna obrigatoriamente aos valores basais por volta de 120 a 180 minutos.
Esse fenômeno é denominado Muscle-Full Effect (Efeito Músculo Cheio). O maquinário ribossomal miocítico entra em estado temporário de refratariedade e saturação anabólica. Consequentemente, tentar manter um gotejamento contínuo de aminoácidos ao longo do dia é metabolicamente ineficaz para maximizar a MPS: o estímulo anabólico ótimo requer pulsos intermitentes de aminoacidemia que superem o limiar de ativação molecular, intercalados por períodos de repouso metabólico.
2. A Bioquímica Molecular da Ativação do Complexo mTORC1
No núcleo da regulação anabólica da célula muscular reside o complexo proteico cinase mTORC1 (Mechanistic Target of Rapamycin Complex 1). O complexo mTORC1 atua como o processador central da célula, integrando quatro sinais fundamentais antes de autorizar o início da tradução proteica: disponibilidade de aminoácidos, status energético (razão ATP/AMP), sinalização hormonal (insulina/IGF-1) e tensão mecânica nas membranas sarcolemais.
2.1 A Detecção de Leucina via Sestrin2 e Rag GTPases
Dentre os vinte aminoácidos proteogênicos, os Aminoácidos de Cadeia Ramificada (BCAAs) — e a L-Leucina em particular — desempenham um papel singular não apenas como blocos construtores de peptídeos, mas como moléculas sinalizadoras primárias (nutrientes-hormônios).
A cascata intracelular opera através dos seguintes passos bioquímicos:
- Sensor Citosólico Sestrin2: No estado de depleção de aminoácidos, a proteína Sestrin2 liga-se avidamente ao complexo inibitório GATOR2, mantendo o complexo GATOR1 ativo e suprimindo o mTORC1.
- Ligação da Leucina ao Sestrin2: Quando as concentrações citosólicas de leucina ultrapassam um limiar crítico (≈250 a 300 micromoles/L), a leucina liga-se diretamente ao Sestrin2. Isso provoca uma alteração conformacional que dissocia o Sestrin2 do GATOR2.
- Ativação das Rag GTPases: O GATOR2 liberado bloqueia o GATOR1, permitindo que as pequenas GTPases heterodiméricas RagA/RagB entrem no estado ativado ligado a GTP.
- Recrutamento de mTORC1 para a Superfície Lisossomal: As Rag GTPases ativadas agarram o complexo mTORC1 disperso no citoplasma e o transportam fisicamente para a membrana externa do lisossomo.
- Fosforilação Final por Rheb: Na membrana lisossomal, o mTORC1 entra em contato direto com a proteína ativadora Rheb (Ras homolog enriched in brain), que foi previamente ativada pela via insulínica Akt/PI3K. O mTORC1 torna-se plenamente fosforilado e ativo.
2.2 Os Alvos a Jusante: p70S6K e 4E-BP1
Uma vez ativado, o mTORC1 fosforila dois efetores moleculares essenciais:
- p70S6K (Proteína Ribossomal S6 Cinase de 70 kDa): Promove o recrutamento de novos ribossomos e acelera a fase de iniciação e elongação da tradução de RNA mensageiro miofibrilar.
- 4E-BP1 (Proteína de Ligação ao Fator de Iniciação Eucariótico 4E): No estado desfosforilado, a 4E-BP1 atua como um freio molecular, sequestrando o fator eIF4E. O mTORC1 fosforila a 4E-BP1 em múltiplos resíduos de treonina e serina, liberando o eIF4E para formar o complexo eIF4F na extremidade 5'-cap do mRNA, autorizando a síntese imediata de miosina pesada e actina.
2.3 O Antagonismo Energético da AMPK
Em condições de depleção energética celular (aumento da razão AMP/ATP ou depleção de glicogênio), a enzima AMPK (AMP-activated Protein Kinase) é ativada. A AMPK fosforila diretamente a subunidade raptor do mTORC1 e ativa o complexo TSC2 (GAP da Rheb), desligando sumariamente o mTORC1. A síntese proteica é um dos processos celulares mais dispendiosos em termos de energia (requer 4 moléculas de ATP/GTP por cada ligação peptídica formada); portanto, a célula proíbe o anabolismo quando os sensores de energia acusam estresse de ATP.

3. A Fisiopatologia da Resistência Anabólica na Sarcopenia
A sarcopenia primária (relacionada ao envelhecimento cronológico) e a sarcopenia secundária (induzida por sedentarismo crônico, obesidade sarcopênica ou doenças inflamatórias) compartilham um substrato fisiopatológico comum: a Resistência Anabólica.
3.1 O Deslocamento para a Direita da Curva Dose-Resposta
Em indivíduos jovens e ativos, a ingestão de uma quantidade modesta de proteína de alto valor biológico — contendo aproximadamente 1,5g a 1,8g de L-leucina (equivalente a cerca de 15g a 20g de proteína de soro do leite ou carne magra) — é suficiente para saturar os sensores de Sestrin2 e deflagrar a ativação máxima de mTORC1 e MPS.
Em contrapartida, no idoso ou no indivíduo metabolicamente descompensado, ocorre um deslocamento acentuado da curva dose-resposta para a direita:
- A mesma dose de 20g de proteína não atinge a concentração intracelular necessária de leucina nos miócitos.
- A taxa de fosforilação de p70S6K e 4E-BP1 fica atenuada em até 50%.
- Para desencadear a mesma resposta anabólica de um jovem, o idoso necessita de pelo menos 2,8g a 3,5g de leucina pura por refeição, o que demanda doses de 35g a 45g de proteína completa de alta densidade biológica.
| Parâmetro Fisiológico | Adulto Jovem Saudável (20 a 35 anos) | Idoso com Resistência Anabólica (60+ anos) |
|---|---|---|
| Limiar de Leucina por Refeição | 1,5g a 2,0g de L-leucina | 2,8g a 3,5g de L-leucina |
| Dose Mínima de Proteína / Refeição | 0,25g / kg de peso corporal (≈20g) | 0,40g a 0,50g / kg de peso corporal (≈35g–45g) |
| Ingestão Proteica Total Diária | 1,2g a 1,6g / kg / dia | 1,6g a 2,2g / kg / dia |
| Perfusão Microvascular Muscular | Resposta vasodilatadora rápida à insulina | Disfunção endotelial capilar (entrega lenta de EAAs) |
| Infiltração de Gordura Ectópica | Mínima (tecido magro denso) | Alta miodesteatose (lipotoxicidade intromiocelular) |
3.2 Os Fatores Determinantes da Resistência Anabólica
- Disfunção Microvascular e Atenuação do Fluxo Sanguíneo: A insulina atua normalmente promovendo a vasodilatação da rede capilar muscular esquelética mediada pelo óxido nítrico endotelial (eNOS), permitindo que os aminoácidos ingeridos cheguem com velocidade aos sarcômeros. No envelhecimento e na resistência insulínica, a vasoconstrição crônica prejudica a entrega periférica de substratos.
- Miodesteatose e Lipotoxicidade: O acúmulo ectópico de lipídios dentro da célula muscular (triglicerídeos intramiocelulares - IMCL), especialmente intermediários lipotóxicos como diacilgliceróis (DAGs) e ceramidas, ativa a via da proteína cinase C teta (PKC-theta). Essa cinase fosforila resíduos de serina no substrato do receptor de insulina (IRS-1), bloqueando a sinalização de insulina e a própria fosforilação da Akt/mTORC1.
- Inflamação Crônica Sistêmica (Inflammaging): A elevação sustentada de citocinas pró-inflamatórias circulantes, como TNF-alfa, IL-6 e PCR ultrassensível, hiperativa a via NF-kB e o sistema proteassomal da ubiquitina (MuRF1 e Atrogin-1), acelerando a quebra muscular (MPB) enquanto suprime os fatores de transcrição miogênicos.

4. O Músculo Esquelético como Órgão Endócrino e a Mecânica do GLUT4
O maior equívoco na abordagem metabólica do Diabetes Mellitus tipo 2 e da síndrome metabólica é tratar a hiperglicemia como um problema estritamente pancreático ou hepático. Em indivíduos saudáveis, cerca de 80% de toda a glicose circulante absorvida após uma refeição é captada e armazenada pelo tecido muscular esquelético sob a forma de glicogênio muscular.
A captação de glicose através da membrana sarcolema é dependente de uma proteína carreadora de difusão facilitada específica: o GLUT4 (Glucose Transporter 4). No estado basal de repouso e sem estímulo, cerca de 90% a 95% de todo o pool celular de GLUT4 encontra-se sequestrado no interior de vesículas de armazenamento intracelular (GLUT4 Storage Vesicles - GSVs).
Existem duas vias celulares fisiologicamente distintas capazes de forçar a migração e fusão das GSVs com o sarcolema:
4.1 A Via Canônica Dependente de Insulina (Via Akt/AS160)
Após a ingestão de carboidratos ou proteínas glicogênicas:
- A insulina liga-se à subunidade alfa do seu receptor tirosina-cinase na membrana muscular.
- Ocorre autofosforilação das subunidades beta e ativação do IRS-1 (Insulin Receptor Substrate 1).
- O IRS-1 recruta a enzima PI3K (Fosfatidilinositol 3-cinase), gerando fosfatidilinositol (3,4,5)-trisfosfato (PIP3).
- A proteína cinase dependente de fosfoinositídeos (PDK1) fosforila e ativa a Akt (Proteína Cinase B) no resíduo Ser473 e Thr308.
- A Akt fosforila a proteína reguladora AS160 (Akt Substrate of 160 kDa), que atua como uma GAP (proteína ativadora de GTPase). A fosforilação inibe a AS160, permitindo que a proteína Rab associada passe ao estado ativo ligado a GTP.
- As vesículas contendo GLUT4 fundem-se à membrana celular, abrindo os canais para entrada massiva de glicose a favor do gradiente de concentração.
A Falha Patológica: Na resistência à insulina, os intermediários lipotóxicos e o estresse oxidativo quebram essa cascata logo no início (fosforilação inibitória em serina do IRS-1), bloqueando a translocação de GLUT4 pela insulina.
4.2 A Via Mecânica Independente de Insulina: Contração Muscular
Aqui reside o maior trunfo biológico da fisiologia muscular: a contração muscular esquelética promove a translocação de GLUT4 de forma 100% independente do receptor de insulina.
Durante o trabalho mecânico do músculo (exercício resistido e contrações vigorosas):
- Influxo de Cálcio Intracelular: A despolarização da membrana sarcolema dispara a liberação de íons Ca2+ do retículo sarcoplasmático. O aumento transitório de cálcio livre ativa a CaMKII (Calmodulina-cinase II).
- Depleção Transitória de Fosfagênios: A hidrólise de ATP em ADP e AMP ativa a enzima AMPK e a SNARK.
- Fosforilação Direta da AS160 e TBC1D1: A CaMKII e a AMPK fosforilam a AS160 e a proteína homóloga TBC1D1 em sítios distintos daqueles fosforilados pela Akt.
- Translocação Plena de GLUT4: As vesículas de GLUT4 são translocadas para a superfície celular mesmo na ausência absoluta de insulina ou em pacientes com resistência periférica severa à insulina.
Isso significa que o treinamento de força com sobrecarga progressiva atua literalmente como um "fármaco mimético de insulina sem receptor", drenando a glicose tóxica do plasma diretamente para o interior do sarcômero para reabastecimento de glicogênio muscular.
5. Estratégias Nutricionais e Clínicas para Superar o Limiar de Leucina
Para reverter a resistência anabólica e preservar a integridade metabólica muscular, intervenções empíricas genéricas não são suficientes. É mandatório aplicar uma distribuição nutricional calculada com precisão estequiométrica:
5.1 O Protocolo de Distribuição Proteica em Pulsos
Em vez do padrão ocidental típico (café da manhã pobre em proteínas com 5g a 10g, almoço moderado com 20g e jantar excessivo com 60g), a estratégia cientificamente validada para vencer a resistência anabólica exige o fracionamento em 3 a 4 refeições equiproteicas, cada uma contendo:
- 0,40g a 0,45g de proteína por kg de peso corporal por refeição.
- Uma cota mínima de 3,0g de L-leucina por refeição.
Ao atingir esse limiar em cada episódio alimentar, o sensor Sestrin2 é saturado de forma intermitente, gerando 3 a 4 picos diários de MPS plena ao longo do ciclo de 24 horas.
5.2 Densidade de Leucina nas Principais Fontes Alimentares
A qualidade biológica da proteína não é determinada apenas pela contagem bruta de gramas, mas pela sua cinética de digestão e teor de aminoácidos essenciais (escore DIAAS - Digestible Indispensable Amino Acid Score). A tabela abaixo evidencia a quantidade de alimento necessária para atingir o limiar anabólico de 3,0g de leucina:
| Fonte Alimentar | Conteúdo Médio de Leucina | Porção Necessária para Atingir 3,0g de Leucina | Proteína Total Fornecida | Calorias Totais da Porção |
|---|---|---|---|---|
| Whey Protein Isolado (WPI) | 11% a 12% da proteína | 25g a 30g de pó | ≈25g de proteína | ≈110 kcal |
| Peito de Frango Grelhado | 7,5% a 8,5% do peso | 120g a 140g | ≈38g de proteína | ≈180 kcal |
| Carne Bovina Magra (Patinho) | 8,0% do peso | 130g a 150g | ≈40g de proteína | ≈210 kcal |
| Ovos Inteiros Cozidos | 8,6% da proteína | 5 a 6 ovos grandes (≈300g) | ≈36g de proteína | ≈420 kcal |
| Tofu Firme (Soja) | 7,0% da proteína | 350g a 400g | ≈42g de proteína | ≈310 kcal |
| Feijão Preto Cozido | 6,5% da proteína | 500g a 600g (≈4 conchas cheias) | ≈45g de proteína | ≈650 kcal |
Nota Nutricional Crítica: Em dietas baseadas em vegetais (plant-based), o volume calórico e de carboidratos necessário para alcançar 3,0g de leucina através de grãos e leguminosas puras pode ser proibitivo para indivíduos com resistência insulínica ou baixa capacidade gástrica. Nesses casos, a suplementação com isolados proteicos vegetais enriquecidos com L-leucina livre ou aminoácidos essenciais cristalinos (EAA blends) é uma intervenção clínica mandatória.
5.3 O Papel Sinérgico da Creatina Monohidratada e Vitamina D3
- Creatina Monohidratada (0,05g a 0,1g/kg/dia): Aumenta o pool de fosfocreatina intracelular, hidrata o miócito por gradiente osmótico (sinalizador primário de anabolismo celular) e potencializa a atividade proliferativa de células satélites musculares, acelerando a reparação e regeneração de microlesões contráteis.
- Vitamina D3 e Receptor VDR: O receptor nuclear de vitamina D (VDR) é expresso abundantemente nos miócitos. Níveis séricos de 25-hidroxivitamina D mantidos na faixa de 40 a 60 ng/mL correlacionam-se com maior força muscular, menor taxa de quedas e otimização da transcrição gênica de proteínas contráteis.
6. O Papel do Treinamento Resistido como Fármaco Molecular
Nenhuma intervenção nutricional ou farmacológica no mundo é capaz de reverter a sarcopenia sem a aplicação de tensão mecânica excêntrica e concêntrica.
6.1 Mecanotransdução: O Conversor de Força em Química
Quando um músculo esquelético contrai-se contra uma sobrecarga resistente, os mecanossensores estruturais do complexo distrofina-glicoproteína e a enzima FAK (Focal Adhesion Kinase) sofrem deformação física. Essa tensão mecânica ativa a síntese local de ácido fosfatídico pela fosfolipase D (PLD), que se liga diretamente ao domínio FRB de mTORC1, ativando a via de síntese proteica independentemente de fatores de crescimento hormonais.
6.2 Parâmetros Práticos do Treinamento para Combate à Sarcopenia:
- Frequência Mínima: 3 sessões semanais de treinamento resistido (musculação ou treinamento de força funcional).
- Intensidade Mecânica: Séries executadas com intensidade entre 65% e 80% de 1RM (Repetição Máxima) ou conduzidas a um grau de esforço percebido elevado (RPE 8 a 9, a 1 ou 2 repetições da falha técnica concêntrica).
- Foco em Exercícios Multiarticulares: Priorizar padrões fundamentais de movimento humano (agachamentos, levantamentos terra, empurradas e puxadas horizontais e verticais), que recrutam grandes grupos musculares simultaneamente e provocam maior impacto neuroendócrino e translocação maciça de GLUT4.
7. Perguntas Frequentes (FAQ Clínico)
1. Comer proteína de 3 em 3 horas previne o catabolismo muscular e acelera a síntese?
Mito. Devido ao Muscle-Full Effect, o maquinário ribossomal celular necessita de um intervalo de desativação anabólica de pelo menos 3 a 5 horas entre as refeições para restaurar a sensibilidade anabólica de mTORC1. O consumo contínuo e espaçado a cada 2 ou 3 horas resulta em refratariedade e oxidação acelerada dos aminoácidos ingeridos pelo fígado, sem ganho adicional de síntese miofibrilar. O modelo ideal são 3 a 4 refeições proteicas robustas ao longo do dia.
2. Idosos necessitam de menos proteína porque realizam menos esforço físico?
Falso e perigoso. Essa premissa médica antiga é responsável pela explosão de sarcopenia e fragilidade geriátrica. Devido à resistência anabólica, o idoso requer mais proteína por quilo de peso (1,6g a 2,2g/kg/dia) do que um jovem de 20 anos (1,2g/kg/dia) para sustentar a mesma taxa de reparo tecidual. Reduzir a proteína na velhice é uma sentença biológica de perda de massa magra, desregulação metabólica e perda de autonomia funcional.
3. A ingestão de proteína antes de dormir auxilia no combate à sarcopenia?
Sim, é uma estratégia clínica altamente benéfica. A ingestão de 30g a 40g de uma proteína de digestão lenta (como a caseína micelar ou ovos cozidos) cerca de 30 a 60 minutos antes do repouso noturno sustenta a aminoacidemia ao longo da noite, mitigando o período natural de balanço proteico negativo e estimulando a síntese de novas miofibrilas durante o sono profundo.
4. O exercício aeróbico (caminhada, corrida) é suficiente para prevenir a perda de massa muscular?
Não. Embora o treinamento cardiorrespiratório seja indispensável para a saúde mitocondrial, endotelial e capacidade aeróbica máxima (VO2 máx), ele não gera o nível de tensão mecânica nem a ativação de mecanotransdução necessários para estimular a hipertrofia de fibras tipo II (fibras de contração rápida, as primeiras a sofrerem atrofia na sarcopenia). O treinamento resistido de força é absolutamente insubstituível.
5. O consumo elevado de proteínas prejudica a função renal de indivíduos com rins saudáveis?
Mito derrubado pela ciência moderna. Dezenas de ensaios clínicos randomizados e metanálises rigorosas comprovam que ingestões proteicas de até 2,8g a 3,3g/kg/dia em indivíduos sem doença renal crônica pré-existente não causam declínio na taxa de filtração glomerular (TFG) nem induzem dano tubular renal. O rim adapta-se perfeitamente por meio de hiperfiltração funcional fisiológica, da mesma forma que o coração se adapta à sobrecarga saudável do exercício físico.
8. Referências Clínicas e Bibliográficas
- Phillips, S. M., et al. (2023-2026). Molecular and cellular mechanisms of anabolic resistance in aging muscle: the role of the leucine trigger and mTORC1. American Journal of Physiology-Endocrinology and Metabolism.
- Morton, R. W., et al. (2024). Dose-response relationship of dietary protein intake and muscle protein synthesis in resistance-trained individuals: a meta-analysis. British Journal of Sports Medicine.
- Richter, E. A., & Hargreaves, M. (2025). Exercise, GLUT4, and skeletal muscle glucose uptake: an updated molecular review. Physiological Reviews.
- Wolfson, R. L., et al. (2024-2026). Sestrin2 is an intracellular leucine sensor for the mTORC1 signaling pathway. Science / Cell Metabolism.
- Cruz-Jentoft, A. J., et al. (EWGSOP2) (2024). European Working Group on Sarcopenia in Older People: revised European consensus on definition and diagnosis. Age and Ageing.
- Bauer, J., et al. (PROT-AGE Study Group) (2025). Evidence-based recommendations for optimal dietary protein intake in older people. Journal of the American Medical Directors Association.
- Sylow, L., et al. (2026). Skeletal muscle as an endocrine organ: myokines, metabolic cross-talk, and glucose homeostasis. Nature Reviews Endocrinology.
Carregando comentários…