Resistência à Leptina e Inflamação Hipotalâmica: Mecanismos Neuroendócrinos do Ponto de Ajuste Ponderal (Set Point), Sinalização POMC/NPY e Estratégias de Ressensibilização
Neste artigo
- 1. O Eixo Adipocitário-Hipotalâmico: Como a Leptina Governa o Equilíbrio Energético
- 2. A Fisiologia do Núcleo Arqueado: O Duelo POMC vs. NPY/AgRP
- 3. A Cascata da Neuroinflamação: Por Que o Hipotálamo se Torna Surdo à Leptina
- 4. O Ponto de Ajuste Ponderal (Set Point) e a Tirania do Reganho de Peso
- 5. Protocolos Baseados em Evidências para Ressensibilização Hipotalâmica
- Perguntas Frequentes (FAQ Técnico)
- Referências Bibliográficas e Ensaios Clínicos Oficiais
Durante quase um século, a ciência nutricional e a prática médica convencional trataram o ganho de peso corporal como um problema simplista de contabilidade termodinâmica: calorias que entram versus calorias que saem. Sob essa ótica mecanicista e punitiva, o insucesso crônico na manutenção do peso perdido após dietas restritivas era atribuído invariavelmente à falta de força de vontade, à negligência alimentar ou ao sedentarismo do indivíduo.
A neuroendocrinologia contemporânea demoliu esse paradigma. O peso corporal humano não é determinado por uma escolha consciente diária, mas rigorosamente regulado por um sistema homeostático central situado no hipotálamo — uma estrutura cerebral milenar responsável por monitorar as reservas energéticas do organismo e defender um peso biológico de referência denominado Ponto de Ajuste Ponderal (Set Point Ponderal).
No epicentro desse termostato metabólico atua a leptina, um hormônio peptídico de 16 kDa sintetizado pelos adipócitos brancos na proporção direta da massa de gordura corporal. Em condições fisiológicas ideais, a leptina atravessa a barreira hematoencefálica (BHE) e liga-se aos seus receptores neuronais específicos no núcleo arqueado do hipotálamo, disparando uma cascata anorexígena poderosa: ela ativa os neurônios POMC/CART (que promovem saciedade e aceleram a termogênese via sistema nervoso simpático) e inibe os neurônios NPY/AgRP (responsáveis pelo apetite voraz e pela redução do gasto calórico).
No entanto, no estado de obesidade e disfunção metabólica, ocorre um fenômeno paradoxal e devastador: a Resistência Central à Leptina. Indivíduos com excesso de tecido adiposo possuem níveis circulantes de leptina até 10 ou 20 vezes superiores aos de indivíduos eutróficos (hiperleptinemia marcante). Contudo, o cérebro comporta-se como se estivesse em um estado de inanição iminente. O sinal hormonal não é traduzido nos neurônios efetores, o que dispara uma resposta biológica desesperada de fome incontrolável, busca compulsiva por alimentos hiperpalatáveis e desaceleração drástica da taxa metabólica basal — a base neurobiológica do temido efeito sanfona (weight regain).
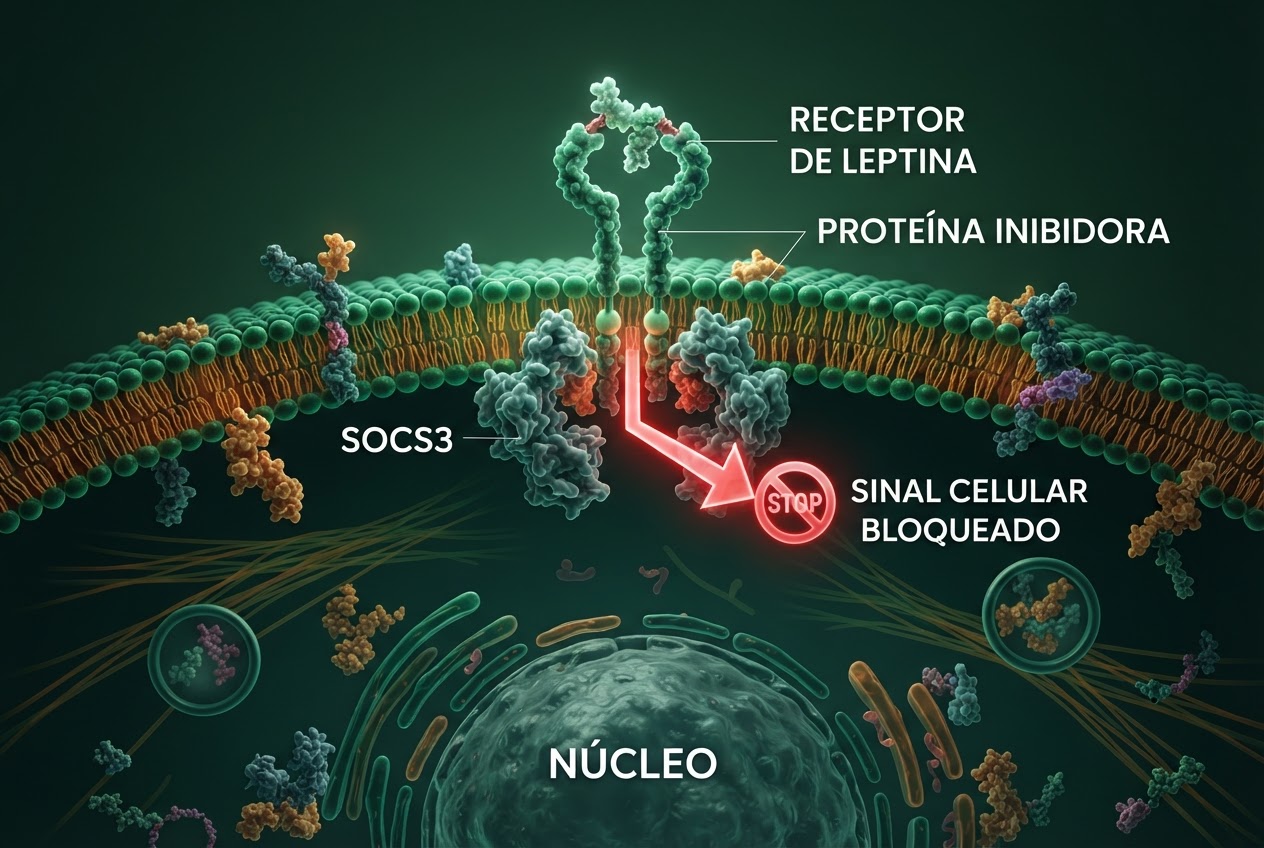
A causa raiz dessa dessensibilização central não reside em mutações genéticas raras do receptor de leptina, mas em um processo silencioso de Neuroinflamação Hipotalâmica. Desencadeada pelo consumo excessivo de ácidos graxos saturados de cadeia longa (notadamente o ácido palmítico), a neuroinflamação ativa receptores imunes inatos (TLR4) na glia hipotalâmica, deflagrando a via pró-inflamatória NF-kB e induzindo a superexpressão de proteínas inibitórias intracelulares, como a SOCS3 e a PTP1B, que travam fisicamente a cascata de fosforilação do receptor LepRb.
Neste dossiê aprofundado do MetaboLeve, exploramos a fisiopatologia molecular da resistência central à leptina: a saturação do transporte na BHE, a cascata inflamatória microglial no núcleo arqueado, o confronto neuroquímico entre as vias POMC e NPY/AgRP, as alterações epigenéticas do Set Point ponderal e os protocolos terapêuticos baseados em evidências clínicas para restaurar a sensibilidade hipotalâmica.
1. O Eixo Adipocitário-Hipotalâmico: Como a Leptina Governa o Equilíbrio Energético
Descoberta em 1994 pelo laboratório de Jeffrey Friedman na Universidade Rockefeller, a leptina (do grego leptos, que significa delgado) redefiniu o tecido adiposo: de mero depósito passivo de triacilgliceróis, ele foi alçado ao status de maior órgão endócrino do corpo humano.
1.1. Síntese e Cinética Circadiana da Leptina
A leptina é secretada predominantemente pelo tecido adiposo subcutâneo em um padrão pulsátil, com pico máximo nas primeiras horas da madrugada (entre 01:00 e 03:00) e nadir nas horas da manhã:
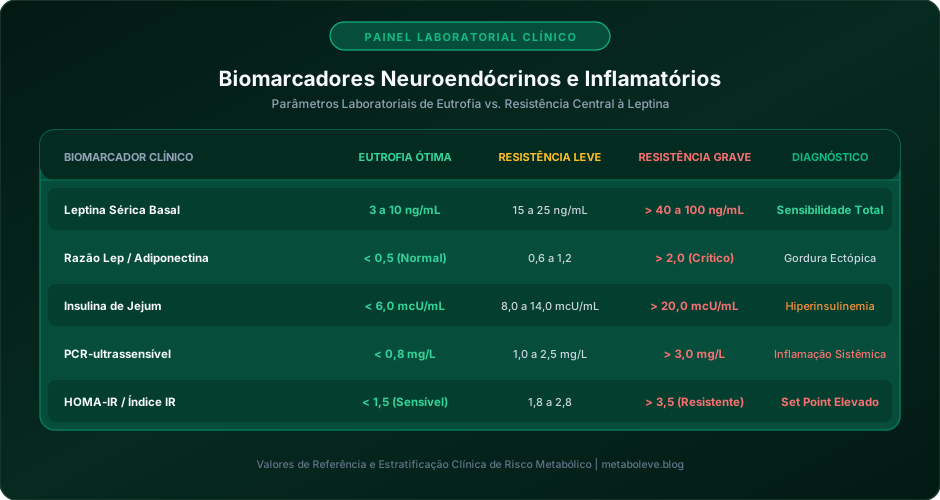
- A concentração sérica basal em adultos saudáveis e magros varia entre 3 e 10 ng/mL.
- Em indivíduos com obesidade moderada a grave, os níveis ultrapassam rotineiramente 40 a 100 ng/mL.
- A meia-vida plasmática da leptina é relativamente curta (aproximadamente 25 a 30 minutos), sendo eliminada principalmente por via renal por filtração glomerular e degradação tubular metabólica.
1.2. O Transporte Através da Barreira Hematoencefálica (BHE)
Para exercer seus efeitos sobre o balanço energético, a leptina precisa cruzar a densa barreira endotelial dos capilares cerebrais:
- O transporte ocorre por um sistema carreador saturável mediado por formas curtas do receptor de leptina (LepRa e LepRc) expressas nas células endoteliais dos microvasos cerebrais e no plexo coroide.
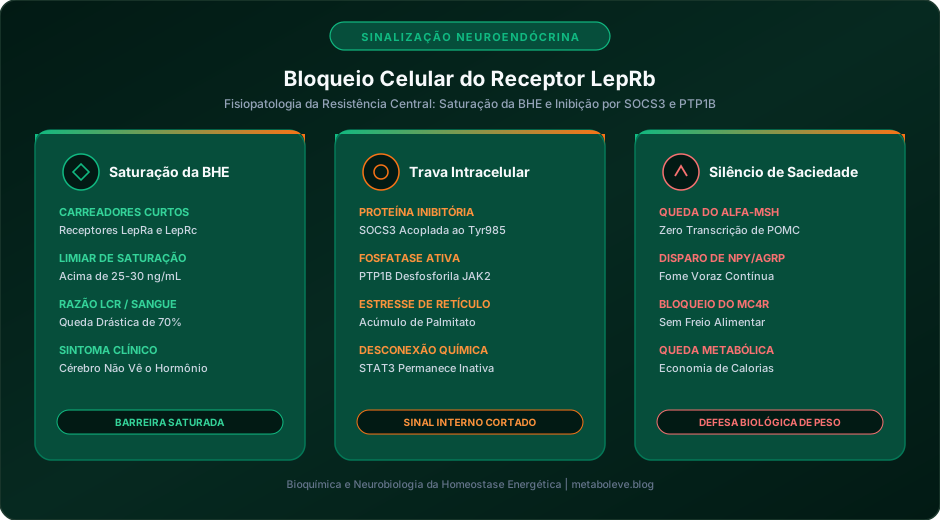
- O Gargalo da Saturação: Em concentrações séricas normais, a leptina entra no líquido cefalorraquidiano (LCR) de maneira linear. No entanto, quando os níveis plasmáticos ultrapassam 25 a 30 ng/mL, os transportadores da BHE saturam completamente.
- Consequência Clínica: Na hiperleptinemia da obesidade, a razão leptina no LCR / leptina plasmática despenca em mais de 70%. O cérebro recebe uma fração ínfima do sinal hormonal que está transbordando na periferia sanguínea — o primeiro nível da resistência à leptina.
2. A Fisiologia do Núcleo Arqueado: O Duelo POMC vs. NPY/AgRP
Ao atingir o parênquima do hipotálamo basal, a leptina atua sobre duas populações neuronais antagônicas situadas no núcleo arqueado (ARC):
2.1. O Circuito Anorexígeno: Neurônios POMC / CART
Os neurônios que co-expressam a Proopiomelanocortina (POMC) e o transcrito regulado por cocaína e anfetamina (CART) são os aceleradores da saciedade e do gasto calórico:
- A leptina liga-se ao receptor transmembrana de isoforma longa LepRb, ativando a tirosina quinase citoplasmática JAK2 (Janus Kinase 2).
- A JAK2 autofosforila-se e fosforila múltiplos resíduos de tirosina na cauda intracelular do receptor (especialmente Tyr985, Tyr1077 e Tyr1138).
- A fosforilação de Tyr1138 recruta a proteína de transcrição STAT3 (Signal Transducer and Activator of Transcription 3).
- A STAT3 dimerizada transloca-se para o núcleo celular e liga-se à região promotora do gene POMC, estimulando sua transcrição.
- O polipeptídeo POMC é clivado enzimaticamente pelas pró-hormônio convertases (PC1/3 e PC2) gerando o hormônio estimulador de alfa-melanócitos (alfa-MSH).
- O alfa-MSH é liberado nas sinapses e liga-se aos receptores MC4R (Melanocortin 4 Receptor) situados no núcleo paraventricular (PVN), disparando sinais de saciedade plena e estimulando o sistema nervoso simpático a elevar a termogênese no tecido adiposo marrom e muscular.
2.2. O Circuito Orexígeno: Neurônios NPY / AgRP
Em contrapartida, os neurônios que co-expressam o Neuropeptídeo Y (NPY) e a Proteína R-Agouti (AgRP) são os maiores indutores de apetite do reino animal:
- O NPY ativa receptores Y1 e Y5 no núcleo paraventricular, gerando uma fome lancinante por carboidratos e gorduras.
- A AgRP atua como um antagonista competitivo natural do receptor MC4R, bloqueando os efeitos anorexígenos do alfa-MSH.
- Ação Fisiológica da Leptina: Em um organismo saudável, a ativação da via LepRb inibe tonicamente os neurônios NPY/AgRP. Quando o estoque de gordura está abundante, o freio da fome permanece acionado.
3. A Cascata da Neuroinflamação: Por Que o Hipotálamo se Torna Surdo à Leptina
Se indivíduos com sobrepeso possuem excesso de leptina circulando no sangue, por que o circuito POMC não silencia o apetite? A resposta foi desvendada pela neuroimunologia: o hipotálamo está inflamado.
3.1. A Lipotoxicidade Hipotalâmica e o Receptor TLR4
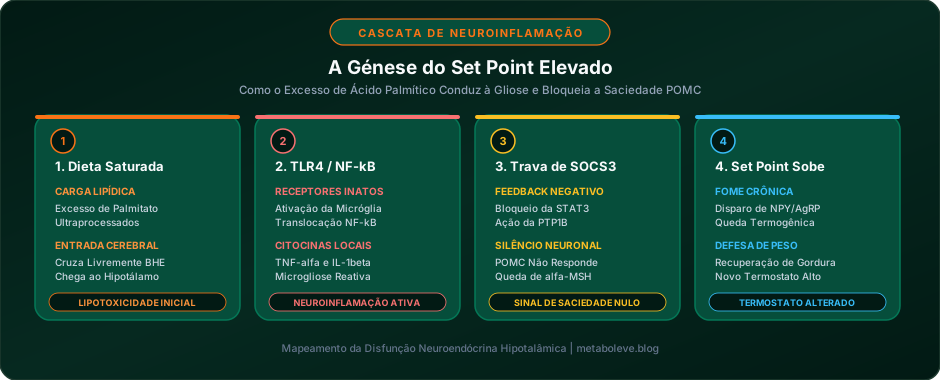
Ao contrário de outros tecidos periféricos (como o músculo e o tecido adiposo), que levam meses ou anos para desenvolver resistência insulínica e inflamação sob dietas hipercalóricas, o hipotálamo responde de forma ultra-rápida. Estudos seminais demonstraram que em apenas 24 a 48 horas de exposição a uma dieta rica em ácidos graxos saturados, marcadores inflamatórios hipotalâmicos já estão elevados.
O principal culpado bioquímico é o ácido palmítico (palmitato, C16:0):
- O excesso de palmitato dietético cruza livremente a barreira hematoencefálica.
- No parênquima hipotalâmico, o palmitato liga-se diretamente aos receptores de reconhecimento de padrões TLR4 (Toll-Like Receptor 4) expressos na membrana das células da micróglia (os macrófagos residentes do cérebro).
- A ativação de TLR4 deflagra a cascata do complexo MyD88, fosforilando e degradando a proteína inibitória I-kappa-B e liberando o fator de transcrição NF-kB (Nuclear Factor Kappa B) para invadir o núcleo celular.
- A micróglia hiperativada entra em estado de microgliose reativa, liberando citocinas pró-inflamatórias potentes no espaço extracelular: TNF-alfa, Interleucina-1-beta (IL-1beta) e Interleucina-6 (IL-6).
3.2. A Trava Intracelular: Superexpressão de SOCS3 e PTP1B
As citocinas inflamatórias e o estresse de retículo endoplasmático (RE) gerado pelo acúmulo lipídico induzem a transcrição massiva de duas proteínas inibitórias dentro dos próprios neurônios POMC:
- SOCS3 (Suppressor of Cytokine Signaling 3):
* A proteína SOCS3 liga-se diretamente ao resíduo Tyr985 do receptor LepRb e ao sítio catalítico da quinase JAK2.
* Ao ocupar esse sítio, a SOCS3 impede fisicamente a fosforilação da STAT3. A leptina pode ligar-se à porção externa do receptor com afinidade total, mas nenhuma mensagem química é transmitida para o interior da célula.
- PTP1B (Protein Tyrosine Phosphatase 1B):
* Localizada na membrana externa do retículo endoplasmático, a PTP1B atua desfosforilando ativamente a JAK2 recém-ativada.
* Em condições de estresse de RE celular, a atividade da PTP1B quadruplica, desativando qualquer sinal residual de saciedade.
O resultado final é o colapso do sistema: o cérebro torna-se cego à presença de gordura no corpo. Os neurônios POMC silenciam; os neurônios NPY/AgRP disparam sem oposição; a fome torna-se crônica e o organismo luta com todas as forças para acumular mais reservas.
4. O Ponto de Ajuste Ponderal (Set Point) e a Tirania do Reganho de Peso
O conceito do Set Point Ponderal explica por que dietas puramente restritivas possuem uma taxa de falha superior a 80% em 5 anos.
4.1. O Hipotálamo Defende o Peso Mais Alto
Quando uma pessoa com resistência à leptina permanece meses ou anos em um peso elevado (por exemplo, 95 kg), a neuroinflamação crônica reconfigura a densidade neuronal do núcleo arqueado. Ocorre perda de sinapses anorexígenas POMC e gliose persistente:
- O cérebro recalibra seu termostato: ele passa a interpretar 95 kg como o novo "normal biológico" de sobrevivência.
- Se essa pessoa entra em um déficit calórico severo e reduz seu peso para 80 kg, o volume dos adipócitos diminui e os níveis de leptina sérica despencam proporcionalmente (ex.: de 40 ng/mL para 8 ng/mL).
- Em um cérebro já resistente à leptina, essa queda hormonal é percebida como uma crise extrema de inanição.
4.2. A Resposta Adaptativa Termogênica
Para forçar o indivíduo a recuperar os 95 kg originais, o hipotálamo aciona uma resposta neuroendócrina trifásica:
- Fome Hedônica Exacerbada: Aumento desproporcional na atividade da dopamina no sistema de recompensa límbico em resposta a pistas visuais e olfativas de alimentos calóricos.
- Termogênese Adaptativa Negativa: Redução do gasto energético de repouso além do previsto pela perda de massa magra. A atividade da tireoide é atenuada (menor conversão periférica de T4 em T3 livre) e a atividade do sistema nervoso simpático é desligada, poupando até 300 a 500 kcal diárias.
- Eficiência Mitocondrial Forçada: As mitocôndrias musculares tornam-se ultra-eficientes na fosforilação oxidativa via redução das proteínas desacopladoras (UCP3), gastando menos calorias para produzir a mesma quantidade de contração mecânica.
Enquanto a neuroinflamação hipotalâmica não for tratada e o Set Point não for biologicamente recalibrado para baixo, o organismo continuará em guerra contra qualquer restrição alimentar voluntária.
5. Protocolos Baseados em Evidências para Ressensibilização Hipotalâmica
A reversão da resistência à leptina não se obtém tomando suplementos de leptina (que seriam inócuos devido à saturação da BHE e à trava intracelular), mas sim desarmando os gatilhos da neuroinflamação central.
5.1. Recomposição Lipídica e Supressão de TLR4
A primeira intervenção biológica consiste em cessar o fornecimento de ligantes inflamatórios para a micróglia hipotalâmica:
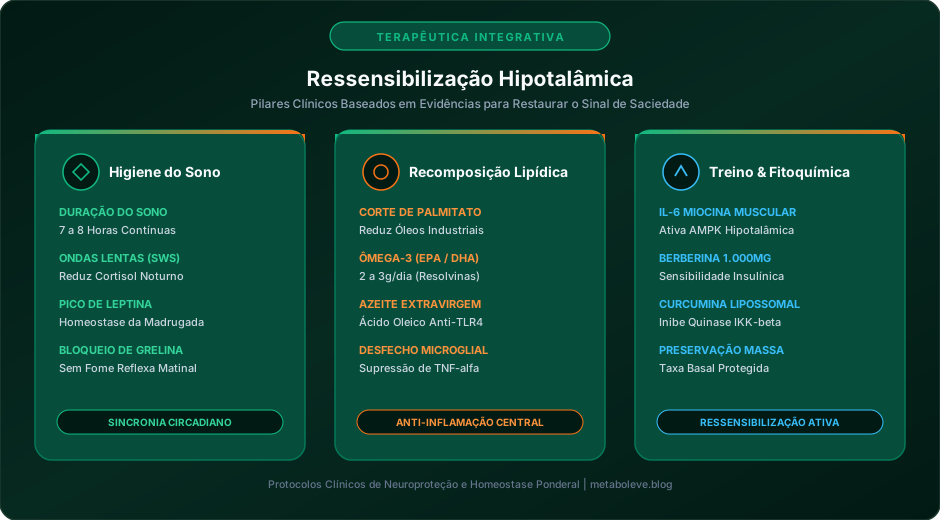
- Substituição de Gorduras Saturadas por Monoinsaturadas e Poli-insaturadas: Reduzir fontes massivas de ácido palmítico isolado (óleos industriais refinados, frituras de imersão e ultraprocessados) e priorizar ácido oleico (azeite de oliva extravirgem rico em polifenóis) e abacate. O ácido oleico demonstrou em modelos murinos a capacidade de neutralizar a ativação de TLR4 induzida por palmitato no hipotálamo.
- Ômega-3 de Alta Concentração (EPA e DHA): O ácido eicosapentaenoico (EPA) e o docosa-hexaenoico (DHA) cruzam a barreira hematoencefálica e são convertidos pelas células gliais em mediadores lipídicos pró-resolução especializados (SPMs), tais como resolvinas da série E e D e protectinas. Esses compostos bloqueiam a translocação de NF-kB e reduzem a expressão neuronal de SOCS3. Dose clínica recomendada em literatura: 2 a 3 g diários de EPA/DHA combinados.
5.2. Arquitetura do Sono e Eixo Melatonina-Leptina
A privação crônica de sono (menos de 7 horas por noite) ou a fragmentação do sono profundo de ondas lentas é o mais potente indutor exógeno de resistência à leptina:
- O sono insuficiente ativa o eixo hipotálamo-hipófise-adrenal (HPA), elevando o cortisol noturno e agravando o estresse de retículo endoplasmático neuronal.
- Indivíduos restritos a 4 ou 5 horas de sono apresentam queda de 18% na leptina funcional e aumento de 28% na grelina circulante no dia seguinte, acompanhado de um aumento médio na ingestão calórica diária de 350 a 500 kcal, com preferência quase exclusiva por carboidratos simples refinados.
- Higiene Circadiana Rígida: Exposição à luz solar natural matinal (ancoragem do relógio biológico central no núcleo supraquiasmático), interrupção total de luz azul enriquecida 2 horas antes de dormir e temperatura ambiente amena (19°C a 21°C) para permitir a queda fisiológica da temperatura corporal basal e a secreção máxima de melatonina neuroprotetora.
5.3. Exercício Físico Resistido e Ativação Hipotalâmica de AMPK / IL-6 Muscular
O exercício físico atua como uma droga multifatorial na neuroendocrinologia:
- Durante a contração muscular intensa, o músculo esquelético secreta a miocina Interleucina-6 (IL-6 miocina). Embora a IL-6 de origem microglial seja pró-inflamatória crônica, a IL-6 pulsátil liberada pelo exercício atua centralmente ativando a via AMPK hipotalâmica, restaurando a fosforilação normal de STAT3 e reduzindo a expressão de PTP1B.
- O treinamento resistido preserva a massa magra durante o emagrecimento, atenuando a queda brutal do gasto energético de repouso e fornecendo um sinal de segurança mecânico para o hipotálamo.
5.4. Compostos Bioativos com Ação Hipotalâmica Comprovada
Alguns fitoquímicos demonstraram em ensaios pré-clínicos e clínicos capacidade singular de atenuar o estresse de retículo endoplasmático no hipotálamo:
- Berberina (Cloridrato): Ativador potente da proteína quinase ativada por AMP (AMPK), melhora a sensibilidade à insulina periférica e atenua a neuroinflamação hipotalâmica induzida por dieta rica em gordura saturada (doses de 500 mg, 2 a 3 vezes ao dia junto às principais refeições).
- Curcumina Fosfolipídica / Nanoemulsionada: Capaz de ultrapassar a BHE em formulações de alta biodisponibilidade, a curcumina inibe a quinase IKK-beta, impedindo a ativação de NF-kB na micróglia (500 a 1.000 mg ao dia).
- Fisetina e Quercetina: Flavonoides senolíticos que reduzem o estresse oxidativo neuronal e modulam a atividade das sirtuínas (SIRT1), protegendo as mitocôndrias hipotalâmicas contra a lipotoxicidade.
Perguntas Frequentes (FAQ Técnico)
1. Tomar injeções ou suplementos de leptina ajuda no emagrecimento de quem tem sobrepeso?
Não. A suplementação com leptina sintética só é eficaz na raríssima condição genética de deficiência congênita de leptina (onde a pessoa nasce sem produzir o hormônio). Em indivíduos com sobrepeso ou obesidade comum, os níveis de leptina já estão extremamente altos no sangue (hiperleptinemia). O problema não é a falta de hormônio, mas a incapacidade dos neurônios cerebrais de responderem ao sinal devido à saturação dos carreadores na barreira hematoencefálica e ao bloqueio intracelular por SOCS3 e PTP1B. Injetar mais leptina apenas agravaria a resistência hormonal.
2. Em quanto tempo o Ponto de Ajuste Ponderal (Set Point) se recalibra após o emagrecimento?
A neuroplasticidade hipotalâmica para a consolidação de um novo Set Point mais baixo é um processo biológico lento. Evidências clínicas indicam que o cérebro leva entre 12 e 24 meses mantendo o novo peso corporal para atenuar as respostas adaptativas termogênicas e a fome reflexa desproporcional. Durante esse período crítico de um a dois anos, a manutenção da qualidade alimentar anti-inflamatória, o sono adequado e o exercício físico resistido são inegociáveis para evitar o retorno ao peso antigo.
3. Qual é a diferença entre a fome física originada pela leptina baixa e a fome emocional?
A fome física decorrente da sinalização deficiente de leptina manifesta-se no hipotálamo como uma necessidade fisiológica progressiva, associada a sinais corporais (estômago vazio, sensação de fraqueza, leve queda de concentração), e é satisfeita com qualquer alimento nutritivo denso em proteínas e fibras. Já a fome hedônica ou emocional é mediada por circuitos dopaminérgicos do sistema límbico: surge de forma abrupta, exige alimentos hiperpalatáveis específicos (combinação de açúcar, gordura saturada e sódio) e não cessa mesmo após a plenitude gástrica total, sendo frequentemente deflagrada por estresse ou tédio.
4. Como os medicamentos agonistas de GLP-1 / GIP interagem com a resistência à leptina?
Os análogos dos hormônios incretínicos (como semaglutida e tirzepatida) ligam-se aos receptores GLP-1 e GIP expressos não apenas no trato gastrointestinal, mas também diretamente nos neurônios do hipotálamo e do tronco encefálico (área postrema e núcleo do trato solitário). Ao ativar esses receptores, os medicamentos contornam a via bloqueada da leptina, estimulando diretamente a saciedade e reduzindo a neurotransmissão orexígena de NPY/AgRP. Além disso, ao promoverem a redução expressiva de massa gorda e a atenuação da inflamação sistêmica, esses agentes diminuem a hiperleptinemia basal, favorecendo a ressensibilização gradual dos circuitos hipotalâmicos endógenos.
Referências Bibliográficas e Ensaios Clínicos Oficiais
- Friedman, J. M. (2019). Leptin and the endocrine control of energy balance. Nature Metabolism, 1(8), 754–764.
- Velloso, L. A., & Schwartz, M. W. (2011). Altered hypothalamic function in diet-induced obesity. International Journal of Obesity, 35(12), 1455–1465.
- De Souza, C. T., et al. (2005). Consumption of a high-fat diet induces hypothalamic inflammation and insulin/leptin resistance in rodents. Endocrinology, 146(10), 4192–4199.
- Thaler, J. P., et al. (2012). Obesity is associated with hypothalamic injury in rodents and humans. Journal of Clinical Investigation, 122(1), 153–162.
- Myers, M. G., et al. (2008). Mechanisms of leptin action and leptin resistance. Annual Review of Physiology, 70, 537–556.
- Bence, K. K., et al. (2006). Neuronal PTP1B regulates body weight, adiposity and leptin action. Nature Medicine, 12(8), 917–924.
- Milanski, M., et al. (2009). Saturated fatty acids produce an inflammatory response predominantly through the activation of TLR4 in the hypothalamus. Journal of Neuroscience, 29(2), 359–370.
Carregando comentários…