Flexibilidade Metabólica e Cargas Mitocondriais: A Troca entre Glicose e Ácidos Graxos, Quociente Respiratório (RER) e Eficiência Bioenergética
Neste artigo
- 1. A Bioquímica do "Switch": O Ciclo de Randle e a Competição de Substratos
- 2. A Inflexibilidade Metabólica: O Engarrafamento Energético Mitocondrial
- 3. O Quociente Respiratório (RER): A Janela Clínica da Oxidação Metabólica
- 4. O Treinamento em Zona 2: O Estimulador Mestre da Biogênese Mitocondrial
- 5. Estratégias Nutricionais e Suplementação Mitocondrial
- Perguntas Frequentes (FAQ Clínico)
- Referências Científicas e Fisiológicas
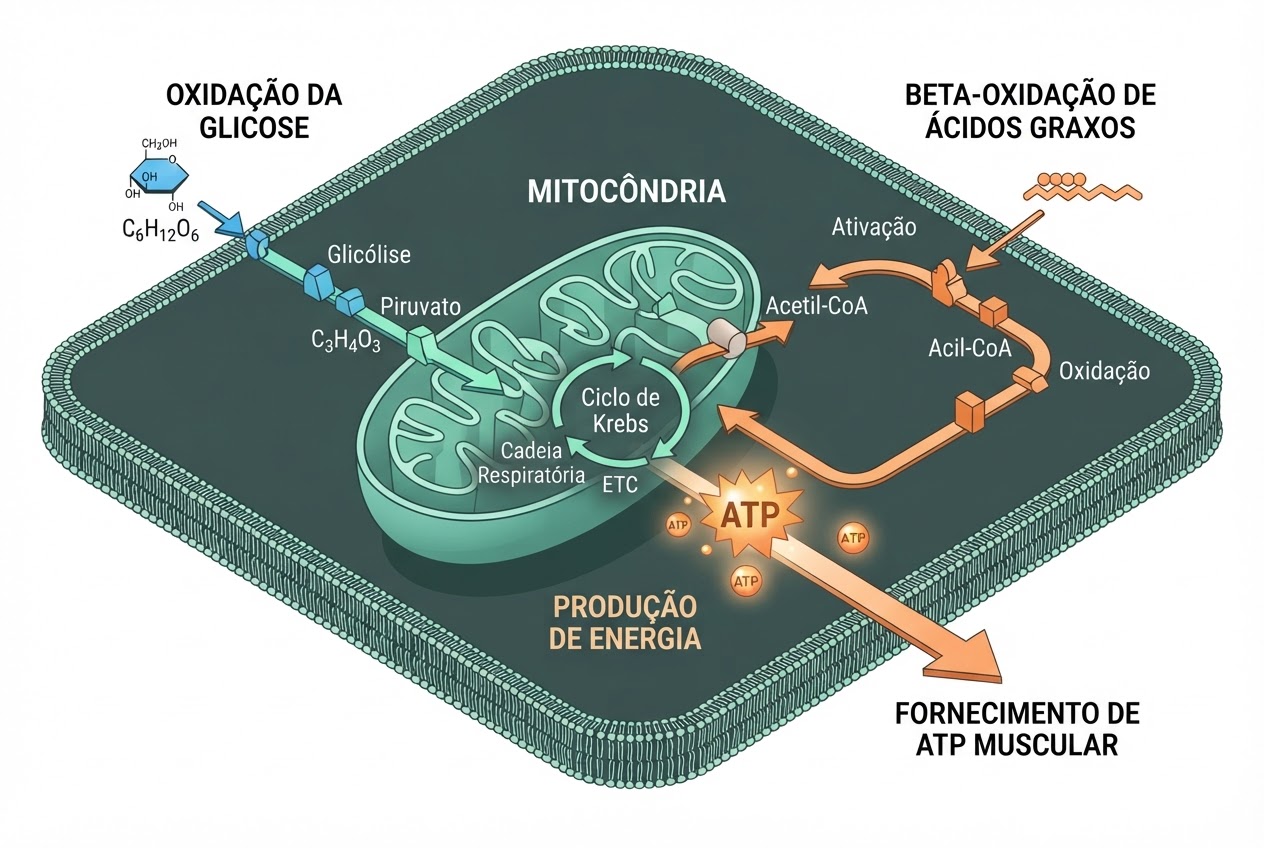
Nas ciências biomédicas e na endocrinologia contemporânea, o conceito de saúde transcendeu definitivamente a mera ausência de patologias diagnosticáveis ou a contagem calórica simplista. O marcador mais sensível, abrangente e preditivo da vitalidade biológica, da longevidade celular e da prevenção de desordens cardiometabólicas reside na Flexibilidade Metabólica. Descrita originalmente na literatura fisiológica como a capacidade intrínseca do organismo de adaptar a oxidação de substratos energéticos à sua disponibilidade e à demanda circadiana, essa competência bioquímica define a facilidade com que as células humanas transitam entre a queima de carboidratos (glicose) e a queima de lipídios (ácidos graxos livres).
Em um indivíduo metabolicamente saudável, o estado pós-prandial (após uma refeição) é marcado pela secreção fisiológica de insulina, que estimula a captação de glicose muscular e hepática, ativa a via glicolítica e inibe temporariamente a lipólise. Por outro lado, durante o jejum noturno, o descanso ou o exercício físico de baixa a moderada intensidade, os níveis de insulina declinam rapidamente, o fluxo de ácidos graxos derivados do tecido adiposo se eleva e as mitocôndrias chaveiam suavemente para a beta-oxidação, poupando o glicogênio e preservando a homeostase glicêmica.
Contudo, o estilo de vida sedentário, a hiperalimentação crônica e o consumo ininterrupto de ultraprocessados induziram uma epidemia silenciosa: a Inflexibilidade Metabólica. Caracterizada pelo emperramento dos motores celulares, essa condição faz com que os tecidos percam a capacidade de queimar gordura durante o repouso e, simultaneamente, desenvolvam resistência à insulina durante a sobrecarga de glicose. No núcleo dessa disfunção reside a sobrecarga e o dano mitocondrial — a incapacidade da cadeia de transporte de elétrons de processar o influxo excessivo de nutrientes sem produzir espécies reativas de oxigênio (ROS) em escala citotóxica.
Neste dossiê científico abrangente do MetaboLeve, exploramos a fisiologia profunda da flexibilidade metabólica. Analisamos a regulação alostérica entre o Complexo Piruvato Desidrogenase (PDH) e a Carnitina Palmitoiltransferase-1 (CPT-1), detalhamos a interpretação clínica do Quociente Respiratório (RER) na calorimetria indireta, exploramos os mecanismos moleculares da biogênese mitocondrial induzida pelo treinamento em Zona 2 e apresentamos intervenções nutricionais baseadas em evidências para regenerar a bioenergética celular.
1. A Bioquímica do "Switch": O Ciclo de Randle e a Competição de Substratos
A alternância entre a queima de açúcar e gordura não ocorre ao acaso; ela é governada por uma sofisticada malha de sensores moleculares descrita historicamente por Philip Randle em 1963 e refinada pela biologia molecular moderna como o Ciclo Glicose-Ácidos Graxos.
1.1. O Estado Alimentado: Supressão da Beta-Oxidação por Malonil-CoA
Quando ingerimos uma refeição rica em carboidratos, a elevação da glicemia desencadeia a liberação de insulina pelas células beta pancreáticas:
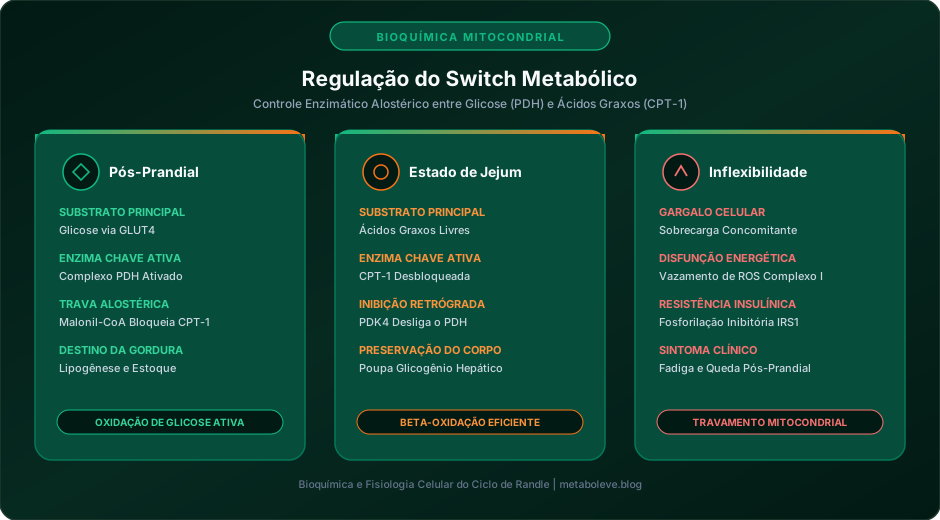
- Ativação da Glicólise: A insulina promove a translocação dos transportadores GLUT4 para a membrana celular do miócito e do adipócito. A glicose entra na célula, sofre fosforilação e é convertida em piruvato.
- Desfosforilação do Complexo PDH: O piruvato ingressa na mitocôndria através do transportador mitocondrial de piruvato (MPC) e é descarboxilado em Acetil-CoA pelo complexo enzimático Piruvato Desidrogenase (PDH), abastecendo o Ciclo de Krebs.
- Bloqueio Alostérico via Malonil-CoA: O excesso de citrato mitocondrial é exportado para o citosol e clivado em Acetil-CoA, que é então convertido em Malonil-CoA pela enzima Acetil-CoA Carboxilase (ACC). O Malonil-CoA atua como o mais potente inibidor alostérico da CPT-1 (Carnitina Palmitoiltransferase-1) — a enzima que ancora e transporta os ácidos graxos de cadeia longa através da membrana mitocondrial interna.
- Resultado Fisiológico: A mitocôndria "fecha os portões" para a queima de gordura e foca exclusivamente na metabolização do excesso de glicose.
1.2. O Estado de Jejum: O Chaveamento para a Beta-Oxidação
Durante o jejum prolongado ou o repouso com baixos níveis de glicose circulante:
- Redução da Insulina e Elevação do Glucagon: A lipólise no tecido adiposo é desinibida pela Lipase Hormônio-Sensível (HSL) e pela Triglicerídeo Lipase Adiposa (ATGL). Ácidos graxos livres inundam a corrente sanguínea ligados à albumina.
- Queda do Malonil-CoA: A queda nos níveis de glicose e a ativação da AMPK fosforilam e inativam a ACC, despencando as concentrações de Malonil-CoA citosólico.
- Desbloqueio da CPT-1: A CPT-1 é plenamente ativada, transesterificando acil-graxos para acilcarnitinas, que cruzam a membrana mitocondrial via translocase de carnitina/acilcarnitina (CACT). No interior da matriz mitocondrial, a beta-oxidação fragmenta os lipídios em Acetil-CoA, FADH2 e NADH.
- Inibição Retrógrada da Glicólise: O acúmulo de Acetil-CoA derivado de lipídios e a alta razão NADH/NAD+ ativam a quinase da PDH (PDK4), que fosforila e desliga o complexo PDH. A célula cessa a queima de glicose e preserva os estoques escassos de carboidratos corporais.
2. A Inflexibilidade Metabólica: O Engarrafamento Energético Mitocondrial
A patologia da inflexibilidade metabólica instala-se quando o organismo é submetido à sobrecarga crônica de nutrientes concomitantes — a combinação hipercalórica de gorduras saturadas e carboidratos refinados associada ao sedentarismo.
2.1. O "Engarrafamento" da Cadeia de Transporte de Elétrons
Nas células musculares de um indivíduo metabolicamente inflexível, a abundância constante de glicose e ácidos graxos força ambos os substratos a entrarem simultaneamente na mitocôndria:
- Conflito Enzimático: O excesso de Acetil-CoA atinge o teto de saturação do Ciclo de Krebs. A cadeia de transporte de elétrons (Complexos I, II, III e IV) é inundada por equivalentes redutores (NADH e FADH2).
- Vazamento de Elétrons e Estresse Oxidativo: O potencial de membrana mitocondrial torna-se hiperpolarizado. Incapazes de transferir elétrons para o oxigênio no Complexo IV com velocidade suficiente, elétrons individuais vazam nos Complexos I e III, reagindo com o oxigênio para formar radicais superóxido (O2 ullet-).
- Fosforilação Inibitória do IRS-1: O estresse oxidativo e o acúmulo de intermediários lipídicos tóxicos citosólicos — como diacilglicerol (DAG) e ceramidas — ativam quinases de estresse (PKC-theta, JNK, IKK-beta). Essas quinases fosforilam o Substrato do Receptor de Insulina-1 (IRS-1) em resíduos de serina/treonina, bloqueando a cascata da fosfatidilinositol 3-quinase (PI3K/Akt).
- O Paradoxo Celular: A célula muscular torna-se incapaz de captar glicose (resistência à insulina) e, simultaneamente, suas mitocôndrias danificadas perdem a capacidade de oxidar gordura eficientemente, gerando fadiga crônica, névoa mental e deposição ectópica de gordura visceral.
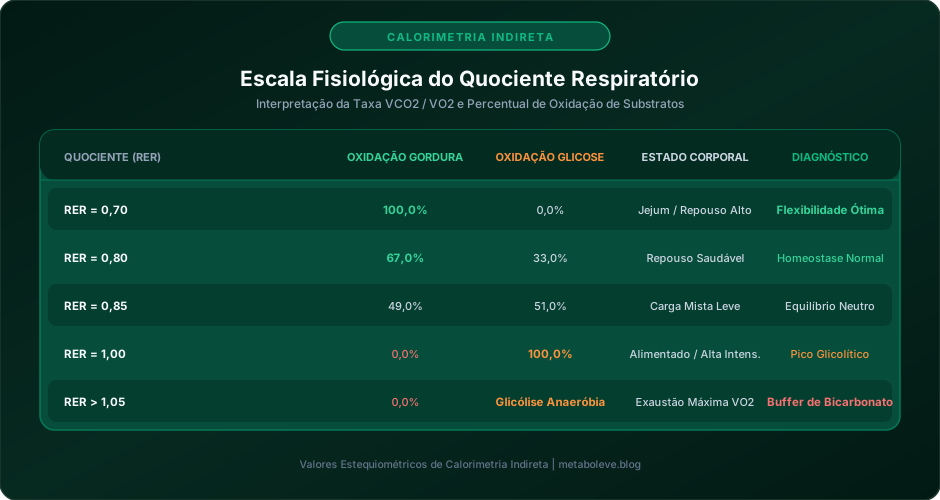
3. O Quociente Respiratório (RER): A Janela Clínica da Oxidação Metabólica
Na medicina do esporte e na fisiologia metabólica, a ferramenta padrão-ouro para quantificar a flexibilidade metabólica in vivo é a Calorimetria Indireta, que afere as trocas gasosas respiratórias.
3.1. A Equação do RER: A Razão entre CO2 Produzido e O2 Consumido
O Quociente Respiratório (Respiratory Exchange Ratio - RER) é definido pela razão estequiométrica:
A matemática da oxidação de cada macronutriente determina o valor do RER:
- Oxidação Pura de Glicose (RER = 1,00):
Para cada 6 moléculas de oxigênio consumidas, 6 moléculas de dióxido de carbono são produzidas (6 / 6 = 1,00).
- Oxidação Pura de Ácidos Graxos (Palmitato) (RER = 0,70):
São consumidas 23 moléculas de oxigênio para produzir 16 moléculas de CO2 (16 / 23 ∝ 0,70).
- Metabolismo Misto de Repouso (RER ∝ 0,80 - 0,85): Indica uma queima equilibrada de aproximadamente 50% de gordura e 50% de carboidratos.
3.2. O Diagnóstico Fisiológico da Inflexibilidade
Durante um teste de calorimetria indireta em jejum de 12 horas:
- Indivíduo Flexível: Apresenta RER de repouso entre 0,72 e 0,78, demonstrando que mais de 75% da sua energia basal é derivada da oxidação de gorduras. Quando submetido a uma infusão ou refeição de glicose, seu RER salta rapidamente para 0,95 a 1,00.
- Indivíduo Inflexível: Mesmo após 14 horas de jejum absoluto, seu RER de repouso permanece anormalmente alto (0,88 a 0,94). Suas mitocôndrias continuam queimando glicose e dependendo de glicogenólise muscular/hepática porque a via de oxidação de gorduras está bloqueada pela hiperinsulinemia basal e pela disfunção da CPT-1.
4. O Treinamento em Zona 2: O Estimulador Mestre da Biogênese Mitocondrial
A intervenção fisiológica mais poderosa e respaldada pela literatura científica para resgatar a flexibilidade metabólica é o Treinamento Aeróbio em Zona 2 (Zone 2 Training).
4.1. A Zona 2 Definida pela Fisiologia do Lactato
Clinicamente, a Zona 2 é a intensidade de esforço contínuo na qual a concentração de lactato sanguíneo se mantém no limiar entre 1,5 e 2,0 mmol/L.
- Nessa faixa de intensidade, a demanda de ATP é suprida quase com exclusividade pelas fibras musculares de contração lenta (Tipo I), que possuem a mais alta densidade mitocondrial do corpo humano.
- É a zona exata de Taxa Máxima de Oxidação Lipídica (FatMax). Se a intensidade do exercício sobe ligeiramente para a Zona 3, as fibras do Tipo IIa são recrutadas, o lactato se eleva, e o próprio acúmulo de lactato atua inibindo alostericamente a CPT-1 via receptor GPR81, forçando o corpo a voltar a queimar glicose.
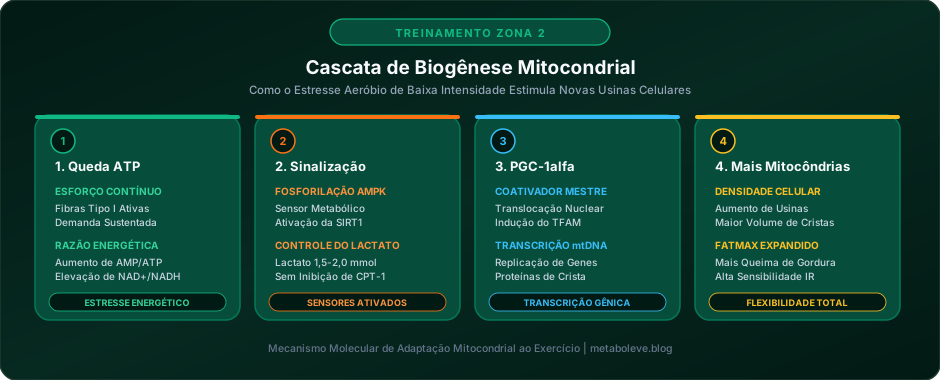
4.2. A Cascata de Transcrição: AMPK, SIRT1 e PGC-1alfa
O estresse bioenergético sustentado da Zona 2 desencadeia uma cascata epigenética incomparável:
- Sensoriamento de AMP/ATP pela AMPK: A contração muscular continuada esgota o ATP, elevando as razões intracelulares de AMP/ATP e ADP/ATP. A proteína quinase ativada por AMP (AMPK) é ativada por fosforilação.
- Ativação da Sirtuína-1 (SIRT1): O aumento da razão NAD+/NADH ativa a enzima desacetilase SIRT1.
- Indução do PGC-1alfa: A AMPK e a SIRT1 convergem ativando o Coativador-1alfa do Receptor Ativado por Proliferador de Peroxissoma (PGC-1alfa) — o regulador mestre transcricional da biogênese mitocondrial.
- Expressão do Fator de Transcrição Mitocondrial A (TFAM): O PGC-1alfa transloca-se para o núcleo e para a mitocôndria, estimulando a replicação do DNA mitocondrial (mtDNA), aumentando o número, a densidade de cristas e a capacidade oxidativa total do tecido muscular em semanas.
5. Estratégias Nutricionais e Suplementação Mitocondrial
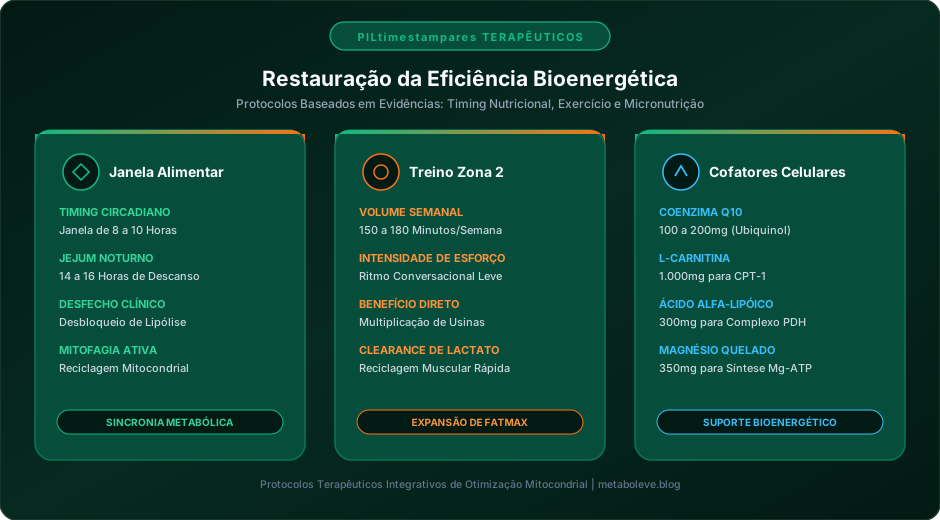
A restauração da flexibilidade metabólica exige uma sinergia entre o timing nutricional e o aporte de cofatores bioenergéticos essenciais:
5.1. Restrição de Tempo Alimentar (Time-Restricted Eating - TRE)
A concentração de todas as refeições do dia em uma janela temporal consistente de 8 a 10 horas (permitindo 14 a 16 horas de jejum intermitente fisiológico) sincroniza os relógios circadianos periféricos do fígado e do pâncreas.
- O jejum noturno estendido força a depleção moderada do glicogênio hepático, derruba a insulina basal para patamares sub-5 uIU/mL e reativa os ciclos diários da CPT-1 e da autofagia mitocondrial (mitofagia), permitindo a eliminação de mitocôndrias senescentes.
5.2. Periodização Inteligente de Carboidratos (Carb Cycling)
A flexibilidade metabólica não é alcançada através da demonização eterna dos carboidratos (como na dieta cetogênica irrestrita por anos a fio, que frequentemente induz inflexibilidade fisiológica reversa — onde o corpo perde a capacidade de metabolizar glicose).
- A abordagem ideal consiste em periodizar: manter dietas baixas em carboidratos nos dias sedentários ou de descanso (otimizando a beta-oxidação) e inserir carboidratos complexos de baixo índice glicêmico estrategicamente ao redor de treinos intensificados de força ou glicolíticos.
5.3. Suplementação de Cofatores Mitocondriais
As enzimas da cadeia respiratória dependem de cofatores químicos específicos frequentemente deficientes em populações modernas:
- Coenzima Q10 (Ubiquinol - 100 a 200 mg/dia): Transportador móvel de elétrons essencial entre os Complexos I, II e III da cadeia de fosforilação oxidativa. Reduz o estresse oxidativo mitocondrial.
- L-Carnitina (Tartarato ou Acetil - 1.000 a 2.000 mg/dia): Substrato indispensável para a ação da CPT-1 no transporte transmembrana de ácidos graxos de cadeia longa.
- Ácido Alfa-Lipóico (ALA - 300 a 600 mg/dia): Cofator mitocondrial obrigatório do complexo piruvato desidrogenase (PDH) e potente regenerador de glutationa intracelular.
- Bisglicinato de Magnésio (300 a 400 mg/dia de magnésio elementar): Cada molécula de ATP sintetizada pela mitocôndria só se torna biologicamente ativa na forma do complexo quelado Mg-ATP.
Perguntas Frequentes (FAQ Clínico)
1. Como saber se sou metabolicamente inflexível sem fazer a calorimetria indireta?
Sinais clínicos comuns incluem sonolência extrema e névoa mental após refeições ricas em carboidratos (pico e queda glicêmica), incapacidade de tolerar 4 a 5 horas de jejum sem apresentar irritabilidade, tremores ou fome intensa (hipoglicemia reativa), gordura visceral aumentada (circunferência abdominal > 88 cm em mulheres ou > 102 cm em homens), triglicerídeos elevados (> 150 mg/dL) com HDL baixo (< 40-50 mg/dL) e insulina de jejum acima de 8-10 uIU/mL.
2. A dieta cetogênica melhora ou piora a flexibilidade metabólica?
No curto a médio prazo (8 a 16 semanas), a dieta cetogênica é uma ferramenta terapêutica fantástica para "destravar" a maquinaria de beta-oxidação e restaurar a sensibilidade à insulina em indivíduos resistentes. Contudo, mantida de forma ininterrupta por períodos prolongados sem reintrodução estratégica de carboidratos, ela pode induzir resistência periférica fisiológica à insulina e desregulação da PDH, tornando o indivíduo "hiper-adaptado a gordura", mas inflexível para queimar glicose.
3. Qual é o tempo semanal mínimo de exercício em Zona 2 para estimular a biogênese mitocondrial?
A literatura sugere que um volume cumulativo de 150 a 180 minutos por semana, fracionados em 3 a 4 sessões de 45 a 60 minutos em ritmo conversacional (intensidade onde se consegue falar frases completas sem perder o fôlego, mas não se consegue cantar), é o patamar ótimo para induzir aumentos mensuráveis na densidade mitocondrial e na capacidade de FatMax.
4. O jejum intermitente pode causar queima de massa muscular em pessoas sedentárias?
Se praticado dentro dos limites fisiológicos de 14 a 16 horas e acompanhado por um aporte proteico diário adequado (1,6 a 2,2 g/kg de peso corporal) nas refeições da janela de alimentação, o jejum não induz perda muscular clinicamente significativa. A quebra de aminoácidos musculares é prevenida pela secreção fisiológica de hormônio do crescimento (GH) e pela transição precoce para a oxidação de ácidos graxos livres e corpos cetônicos.
Referências Científicas e Fisiológicas
- Goodpaster, B. H., & Sparks, L. M. (2017). Metabolic Flexibility in Health and Disease. Cell Metabolism, 25(5), 1027–1036.
- Kelley, D. E., & Mandarino, L. J. (2000). Fuel Selection in Human Skeletal Muscle: Impairments of Metabolic Flexibility in Obesity and Type 2 Diabetes. Diabetes, 49(5), 677–683.
- San-Millán, I., & Brooks, G. A. (2018). Assessment of Metabolic Flexibility and Skeletal Muscle Mitochondrial Oxidation in Endurance Athletes, Moderately Active Individuals and Patients with Type 2 Diabetes. Sports Medicine, 48(2), 467–479.
- Randle, P. J., Garland, P. B., Hales, C. N., & Newsholme, E. A. (1963). The Glucose Fatty-Acid Cycle: Its Role in Insulin Sensitivity and the Metabolic Disturbances of Diabetes Mellitus. The Lancet, 281(7285), 785–789.
- Muoio, D. M. (2014). Metabolic Inflexibility: When Mitochondrial Fuel Selection Falters. Nature Reviews Molecular Cell Biology, 15(11), 740–749.
Carregando comentários…